


 nueva página del texto (beta)
 Español (pdf)
 Artículo en XML
 Referencias del artículo

 Traducción automática
 Enviar artículo por email
 Citado por SciELO
 Similares en
SciELO

 Permalink

Declaración de relevancia
Nuestros hallazgos avalan informes previos que confirman la implicación del GPR55 en el sistema nervioso central en las acciones reforzadoras de la nicotina y proponen al GPR55 en el hipocampo dorsal como uno de los posibles sitios de acción.
Introducción
La preferencia de lugar condicionado (PLC) es un paradigma clásico para evaluar el potencial de las drogas para fomentar conductas inducidas por recompensa a través de la experiencia en 2 contextos sensoriales distintos, uno de ellos asociado al fármaco y el otro a su vehículo1. Estudios previos han analizado y concluido que el hipocampo dorsal (una región clave del cerebro implicada en las memorias contextuales y el reconocimiento espacial) participa en el establecimiento de la PLC2,3. Por ello, el hipocampo dorsal (particularmente la estructura CA1) representa un área cerebral asociativa interesante cuya fisiología podría permitir comprender los circuitos neuronales implicados en los fenómenos de búsqueda y consumo de drogas4-6. Además, el hipocampo, la amígdala y el estriado ventral reciben dopamina de la región tegmental ventral; este circuito constituye el sistema mesolímbico, cuyas funciones incluyen la recompensa cerebral, la motivación, la conducta alimentaria, el control del flujo sanguíneo, entre otras7-9. La función del sistema mesolímbico está fuertemente modulada por el sistema endocannabinoide10.
Las funciones hipocampales se modulan mediante (i) mediadores clásicos tales como las catecolaminas11 y (ii) mediadores no clásicos tales como los opioides y los cannabinoides12,13. Entre los mediadores no clásicos, los cannabinoides actúan sobre el receptor acoplado a la proteína G 55 (GPR55), cuya farmacología es compleja e incluye agonismo sesgado por lisofosfolípidos (p. ej., LPI) y cannabinoides14,15. Además de en varios tejidos periféricos, el GPR55 se expresa abundantemente en el sistema nervioso central y se ha asociado al dolor, la ansiedad, la memoria y la recompensa cerebral16-21. Interesantemente, este receptor podría desempeñar un papel funcional clave en ciertas regiones cerebrales, tales como el estriado22 y el hipocampo19. Avalando lo anterior, en un modelo preclínico de Parkinson inducido por 6-hidroxidopamina, tanto el LPI (agonista endógeno de GPR55) como el ML193 (antagonista sintético) fueron capaces de mejorar la locomoción22. Asimismo, las inyecciones de LPI y CID1602046, pero no de su vehículo, deterioraron la memoria espacial en el laberinto de Barnes19. En un estudio previo, se informó que tanto el ML184 (agonista de GPR55) como el ML193 (antagonista de GPR55), administrados por vía intracerebroventricular, evitaron la PLC mediada por nicotina21. Otro estudio independiente concluyó que el GPR55 en el estriado ventral podría explicar parcialmente las acciones preventivas del O-1602 (agonista de GPR55) frente a la PLC inducida por nicotina23. No obstante, dichas acciones preventivas de O-1602 persistieron tras el silenciamiento del receptor GPR55 en el estriado ventral mediante shRNA lentiviral selectivo23, lo cual sugiere la participación de otras regiones cerebrales. En este sentido, el presente estudio se diseñó para investigar las acciones farmacológicas de los fármacos sintéticos asociados a GPR55, ML-184 (agonista) y CID16020046 (antagonista), administrados en el hipocampo dorsal, sobre la PLC inducida por nicotina en ratas.
Materiales y métodos
Animales
Se obtuvieron 34 ratas macho Wistar (250-300 g) de un bioterio de la Universidad Autónoma de Aguascalientes. Los animales fueron alojados para habituación durante 3 días a una temperatura constante de 23 ± 1 °C, humedad del 2835 % y un ciclo luz/oscuridad de 12 horas, iniciando la luz a las 10:00 AM. Agua y alimento se ofrecieron ad libitum. Todos los procedimientos experimentales fueron aprobados por el Comité Institucional de Ética (CEADI-UAA) y realizados de conformidad con la Norma Oficial Mexicana NOM-062-ZOO-1999, Especificaciones técnicas para la producción, cuidado y uso de los animales de laboratorio”. Nuestro estudio se realizó de conformidad con las guías ARRIVE sobre investigación preclínica con animales, la Guía para el Cuidado y Uso de Animales de Laboratorio en EE.UU.24 y la Directiva 2010/63/UE del Parlamento y Consejo Europeos del 22 de septiembre del 2010 sobre la protección de animales utilizados para fines científicos (disponible en: http://eur-lex.europa.eu/LexUriServ/LexUriServ.do?uri=OJ: L:2010:276:0033:0079:en: PD).
Fármacos
El CID16020046 (ácido 4-[4-(3-hidroxifenil)-3-(4-metilfenil)-6-oxo-1,4-dihidropirrolo[3,4-d]pirazol-5-il] benzoico”), ML184 (CID2440433, 3-[4-(2,3-dimetilfenil) piperazina-1-carbonil]-N,N-dimetil-4-(pirrolidin-1-il)benceno-1-sulfonamida”) y la nicotina se obtuvieron de Sigma-Aldrich®. La nicotina (0,6 mg/kg) se preparó en una solución salina (0.9% p/v NaCl) y administró por vía subcutánea en un volumen de 0.3 ml. ML184 (0.425 nmol; cada lado, 1 μl) y el CID16020046 (1.16 nmol; cada lado, 1 μl) se diluyeron en dimetilsulfóxido al 10% y en una solución salina (0.9% p/v). Las concentraciones mencionadas corresponden a su base libre. Las soluciones se prepararon frescas cada día experimental.
Cirugía estereotáxica
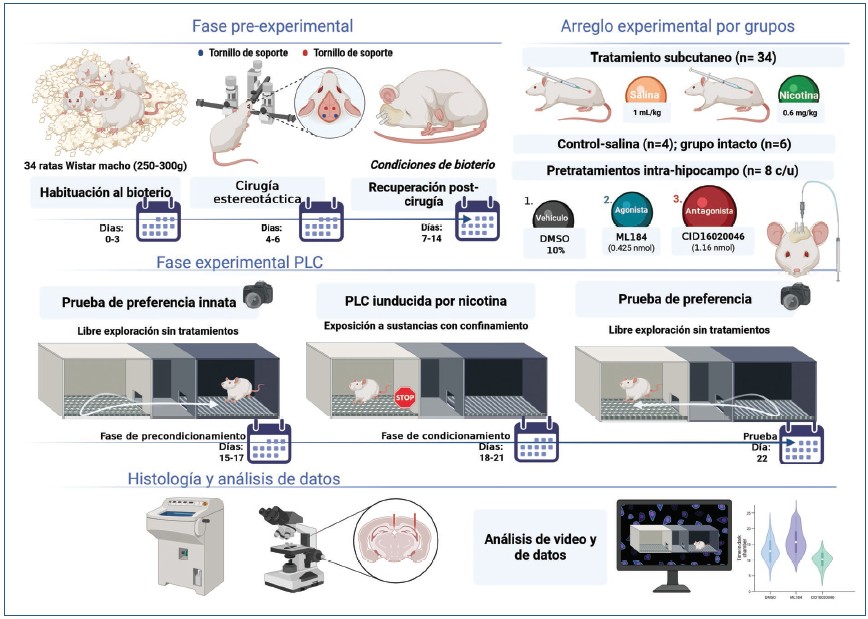
Las ratas fueron anestesiadas con una combinación de Zoletil® 50 (tiletamina 125 mg + zolazepam 125 mg) y xilazina (35 mg/kg + 8 mg/kg, respectivamente) en un volumen de 1 ml/kg por vía intraperitoneal. Bajo anestesia profunda, las ratas fueron colocadas en un marco estereotáxico y se procedió a implantar bilateralmente 2 cánulas (22G × 10 mm) en el hipocampo dorsal donde fueron inyectados los compuestos. Las coordenadas de canulación intrahipocampal fueron: anteroposterior 3.24 mm, mediolateral ± 1.6 mm y dorsoventral 2.8 mm25. Se emplearon 2 tornillos de acero inoxidable fijados al cráneo y 1 capa de acrílico dental solidificado para asegurar las cánulas durante el experimento. Tras la cirugía, los animales se alojaron individualmente y se dejaron recuperarse durante 7 días bajo las condiciones ya descritas. Además, recibieron un ungüento de neomicina (Brosín®) y ketoprofeno 2.5 mg/kg por vía subcutánea durante 3 días con posterioridad a la cirugía (Fig. 1).
Administración intradorsal-hipocampal de los fármacos
Se insertó un inyector (30G × 11 mm) conectado mediante tubería Tygon® (0.25 × 150 mm) a una jeringa Hamilton® de 10 μL suavemente en la cánula, administrándose 1 μl de cada pretratamiento bilateralmente (0.018 μl/s) durante 1 min mediante una bomba de jeringa modelo 35 s (Sage Instruments™).
Grupos experimentales
Para analizar la PLC inducida por nicotina, las 34 ratas fueron distribuidas aleatoriamente en los siguientes grupos: (i) ratas intactas (recibieron tratamiento con 0.6 mg/kg de nicotina durante la fase de acondicionamiento; n = 6); (ii) grupo control (pretratamiento intradorsal-hipocampal con dimetilsulfóxido al 10%; n = 4); (iii) grupo nicotina (pretratamiento intradorsal-hipocampal con dimetilsulfóxido al 10% y tratamiento con 0.6 mg/kg de nicotina; n = 8); (iv) grupo agonista de GPR55 (pretratamiento intradorsal-hipocampal con 0.48 nmol de ML-184 y tratamiento con 0.6 mg/kg de nicotina; n = 8); (v) grupo antagonista de GPR55 (pretratamiento intradorsal-hipocampal con 1.16 nmol de CID16020046 y tratamiento con 0.6 mg/kg de nicotina; n = 8). Todos los grupos siguieron procedimientos experimentales sincrónicos en el tiempo26.
Parámetro de preferencia de lugar condicionado (PLC)
APARATO DE PLC
El paradigma de PLC de elección no forzada consta de 2 compartimentos acrílicos (30 × 30 × 45 cm) conectados por una cámara intermedia estrecha (14.5 × 13 × 30 cm) con 2 compuertas verticales tipo guillotina que permiten o bloquean el acceso a los compartimentos externos (Fig. 1). Los compartimentos difieren en señales visuales y táctiles, de modo que uno resulta más confortable para el animal. El compartimento izquierdo tenía paredes blancas y suelo liso y el derecho, 2 paredes con líneas verticales en blanco y negro y las otras 2, líneas diagonales en blanco y negro. La sala de PLC se mantuvo con iluminación a base de luz roja y mínimo estímulo sonoro.
Fase de preacondicionamiento
El protocolo de PLC se realizó tal y como se describió previamente21. En la etapa de preacondicionamiento, la rata fue colocada en el compartimento central y se le permitió explorar libremente el aparato durante 15 minutos durante 3 días consecutivos (Fig. 1). Las sesiones fueron videograbadas con una cámara web (Logitech mod. C922PRO) de 1.280 × 720 píxeles y 30 fps. El tiempo en cada compartimento se midió en los 3 días calculándose la media para determinar la preferencia natural de cada animal por una cámara específica.
Fase de acondicionamiento
Los animales fueron expuestos a los entornos de PLC en un esquema contraequilibrado. Teniendo siempre en cuenta la preferencia natural, se les inyectó aleatoriamente una solución salina o nicotina por la mañana (10:00 h), siendo confinados durante 30 minutos en (i) la cámara preferida (asociada a salina) o (ii) la no preferida (asociada a nicotina). Seis horas después, se aplicó el tratamiento opuesto y se confinó al animal en la cámara contraria. Este procedimiento se repitió durante 4 días consecutivos (Fig. 1), alternando el orden para evitar sesgos: los animales que recibieron solución salina por la mañana el día anterior, fueron los primeros en recibir nicotina al día siguiente, y viceversa.
Prueba de PLC
La prueba se realizó el día 22 (Fig. 1) sin administración de tratamientos ni pretratamientos. Cada rata se colocó en el compartimento central y se le permitió desplazarse libremente entre las cámaras durante 15 minutos. Se consideró como efecto reforzador un aumento significativo en el tiempo en la cámara asociada a nicotina durante la prueba frente a la fase de preacondicionamiento. Después, se evaluó la influencia de ML-184 y CID16020046 sobre dicho efecto reforzador.
Histología
Se aplicó la tinción de Nissl para confirmar la colocación correcta de las cánulas (Fig. 2). Los cerebros se extrajeron tras perfusión con solución salina y paraformaldehído al 4% p/v, se refrigeraron una semana a 4 °C y luego se mantuvieron otra semana en sacarosa al 20% p/v. Los cerebros se seccionaron en sentido coronal, se colocaron en el criostato para cortes de 70 μm, se montaron en un portaobjetos para la tinción de Nissl y, finalmente, las posiciones de las cánulas se corroboraron mediante microscopía (Fig. 2) y se compararon según lo descrito25.
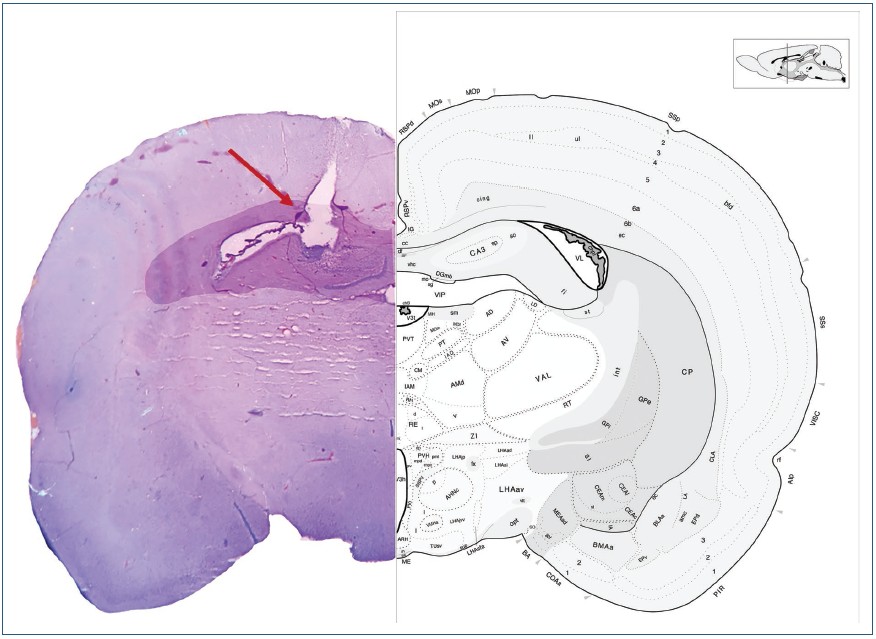
Figura 2 Fotomicrografía representativa del sitio de infusión en el hipocampo dorsal. La flecha indica el sitio de la inyección.
Limitaciones experimentales
Al tratarse de un estudio preliminar, los autores reconocen ciertas limitaciones: (i) se inyectaron volúmenes intracerebrales elevados (1 μl) debido a limitaciones de solubilidad de los compuestos; (ii) fue necesario utilizar dimetilsulfóxido al 10% como disolvente; y (iii) solo se empleó una única dosis de cada fármaco, sin analizar curvas dosis-respuesta.
Análisis estadístico
Los datos se analizaron con Sigma Plot 12.0 (Systat Software Inc., San José, CA, EE.UU.). Para cada variable cuantitativa del paradigma PLC se aplicó la prueba t pareada. Aunque no fue posible el cegado de los operadores debido al esquema contraequilibrado, el análisis de datos lo realizaron a ciegas autores distintos de aquellos que fueron los que realizaron los experimentos. En todas las pruebas, la medida de tendencia central fue la media, y la dispersión, el error estándar de la media. Se consideró significación estadística un valor de p < 0.05.
Resultados
La figura 3A muestra que las inyecciones intradorsales en el hipocampo del vehículo (dimetilsulfóxido al 10%) no produjeron cambios (t3 = 0.268, p > 0.05) en el tiempo pasado en la cámara asociada a la solución salina el día de la prueba frente a los valores basales. Además, la nicotina (0.6 mg/kg, s.c.) aumentó el tiempo en la cámara asociada tras la fase de acondicionamiento frente a los valores basales (t5 = 2.626, p < 0.05) en ratas intactas (Fig. 3B).
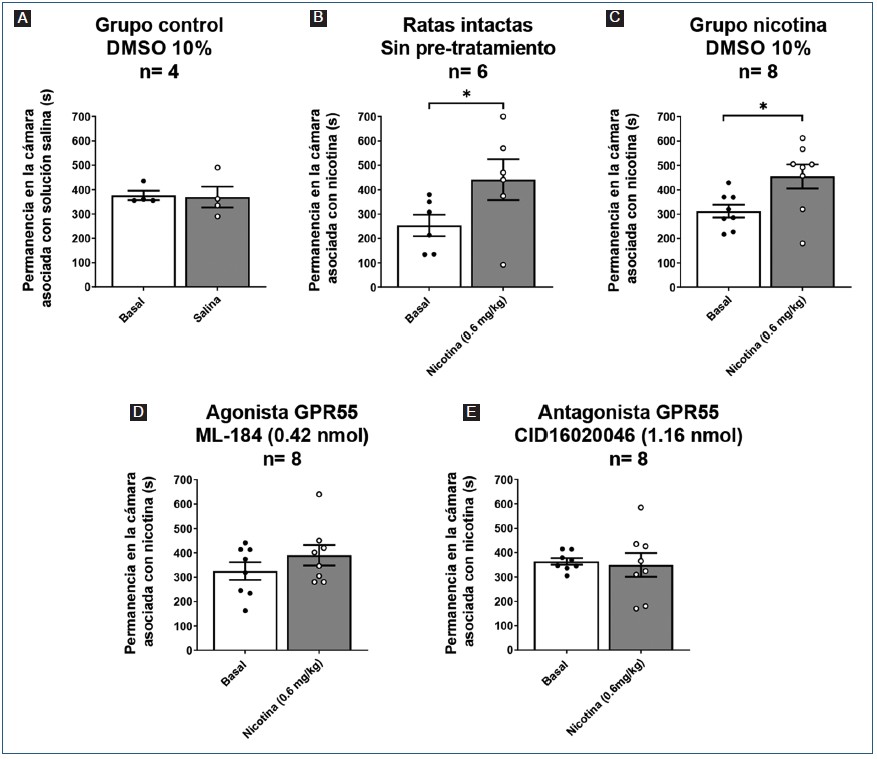
Figura 3 Efecto de las inyecciones intradorsales de hipocampo de dimetilsulfóxido (DMSO) al 10% (n = 4); A: sobre el tiempo pasado en la cámara asociada a solución salina (1 mL/kg) o en ratas intactas sin pretratamiento (n = 6); B: vehículo DMSO al 10% (n = 8); C: ML-184 (0.42 nmol; n = 8); D: o CID16020046 (1.16 nmol; n = 8); E: sobre la PLC inducida por nicotina (0.03 mg/kg, s.c.), *p < 0.05 frente a la línea basal correspondiente. Los datos expresan la media ± error estándar de la media y se analizaron mediante prueba t pareada.
Los animales que recibieron un pretratamiento intradorsal con vehículo durante la fase de acondicionamiento incrementaron su preferencia por la cámara asociada a nicotina frente a los valores basales (t7 = 2.898, p < 0.05; Fig. 3C). En cambio, tanto ML-184 (0.48 nmol; agonista de GPR55) como CID16020046 (1.16 nmol; antagonista de GPR55) evitaron el cambio de preferencia inducido por nicotina, ya que el tiempo registrado en la línea basal no varió del observado en la prueba (t7 = 1.106, p > 0.05 y t7 = 0.387, p > 0.05, respectivamente; Fig. 3D y 3E).
Discusión
Liu et al.23 informaron que: (i) la inyección sistémica de un agonista de GPR55 (O-1602) evitó la PLC mediada por nicotina; (ii) 0.5 mg/kg de nicotina incrementaron los niveles séricos de dopamina efecto prevenido por O-1602 pero no modificaron los niveles en el núcleo accumbens y (iii) la reducción selectiva de GPR55 en núcleo accumbens no alteró los efectos preventivos de O-1602 sobre la PLC mediada por nicotina, lo cual sugiere la participación de otras regiones cerebrales. En trabajos previos, nuestro grupo confirmó que varios fármacos asociados a GPR55 administrados por vía intracerebroventricular evitaron la PLC mediada por nicotina en ratas21. El hallazgo principal del presente estudio es la posible participación del hipocampo dorsal como sitio de acción de fármacos dirigidos a GPR55 para prevenir la PLC inducida por nicotina.
Como GPR55 se expresa funcionalmente en el hipocampo de la rata, donde parece intervenir en el aprendizaje y la memoria espacial19, quizás su actividad basal sea necesaria para un funcionamiento correcto del conectoma hipocampal. De hecho, tanto la estimulación como el bloqueo de GPR55 en hipocampo dorsal han mostrado ser capaces de disminuir la memoria de lugar en ratas19. Desde un punto de vista neuroanatómico, el hipocampo dorsal parece modificar la adquisición de memorias contextuales en roedores expuestos a cocaína, interfiriendo en la recuperación y extinción de la preferencia de lugar en el paradigma de PLC tras la estimulación farmacológica de receptores GABAAA hipocampales dorsales2. Asimismo, el comportamiento de recompensa contextual se asocia a la fuerza de las sinapsis entre el hipocampo y el núcleo accumbens27. El refuerzo está directamente vinculado a la actividad dopaminérgica mesolímbica, principalmente en la región tegmental ventral y el núcleo accumbens, donde el GPR55 hipocampal parece aumentar la descarga de neuronas dopaminérgicas mesolímbicas28. En este sentido, el GPR55 hipocampal surge como una posible diana farmacológica para modular las acciones reforzadoras de la nicotina en el paradigma de PLC.
El hecho de que un agonista y un antagonista del mismo receptor (GPR55) produzcan un efecto funcional similar no es intuitivo. No obstante, esta misma observación se ha descrito en el cuerpo estriado por otro grupo independiente22 que propuso que el GPR55 podría controlar un mecanismo clave cuyo desequilibrio, en cualquier dirección, interrumpe el procesamiento correcto. Otra explicación, igualmente especulativa, es la participación de múltiples receptores o mecanismos. Cabe admitir que una limitación de nuestros resultados preliminares es la ausencia de una curva dosis-respuesta que analice varias concentraciones de diferentes agonistas y antagonistas del GPR55.
Finalmente, se debe mencionar que el GPR55 participa en múltiples funciones fisiológicas y fisiopatológicas centrales y periféricas, incluida la regulación del flujo sanguíneo, patologías proliferativas y cancerosas, procesos metabólicos y dolor15-21,29-33. Cualquier aplicación clínica potencial que implique al GPR55 debe manejarse con suma cautela.
Conclusiones
Nuestros hallazgos sugieren que: (i) el hipocampo dorsal podría participar en la PLC inducida por nicotina, y (ii) el GPR55 hipocampal dorsal es capaz modular farmacológicamente (previniendo) la PLC inducida por nicotina.
Contribución de los autores
B.A. Marichal-Cancino tuvo la idea original y los protocolos experimentales. O.A. Colis-Arenas, A. Muñoz-Pelayo y J. Chávez-Reyes realizaron los experimentos y recopilaron la base de datos. B.A. Marichal-Cancino y C.H. López-Lariz analizaron los datos, elaboraron las figuras y redactaron el manuscrito. O.A. Colis-Arenas, A. Muñoz-Pelayo y J. Chávez-Reyes revisaron y corrigieron el manuscrito. Todos los autores aprobaron la versión final del manuscrito.

