


 nueva página del texto (beta)
 Español (pdf)
 Artículo en XML
 Referencias del artículo

 Traducción automática
 Enviar artículo por email
 Citado por SciELO
 Similares en
SciELO

 Permalink

1. Introducción
La diversidad genética de una especie representa la variación heredable dentro y entre sus poblaciones, en las especies cultivadas tiene trascendencia, debido a que operan los procesos de selección que aplican los agricultores y fitomejoradores; por ello es necesario caracterizarla, a fin de plantear esquemas más eficientes para su aprovechamiento y conservación (Montes-Hernández et al., 2014).
México es el centro de origen de una gran diversidad de cultivos, de interés agrícola, entre los cuales el maíz es el de mayor importancia a escala nacional y mundial, tanto por la superficie sembrada como por el volumen de producción y su diversidad de usos (Rocandio-Rodríguez et al., 2014). México destaca por tener la mayor diversidad de maíz del mundo, es centro de origen y evolución, preservando maíces nativos, teocintles y otro conjunto de gramíneas relacionadas, especies del género Tripsacum (maicillos), se han reportado 64 razas, 59 se pueden considerar nativas y cinco que fueron descritas inicialmente en otras regiones, pero que también se han colectado o reportado en el país (CONABIO, 2020a). Las razas de maíz de México se agruparon con base en caracteres morfológicos, de adaptación y genéticos (isoenzimas) en siete grupos o complejos raciales (CONABIO, 2020b).
En el estado de Nayarit se reportaron 16 razas (Serratos-Hernández, 2009). La raza Jala se considera una de las más importantes en México por sus características morfológicas únicas como la longitud de mazorca, altura de planta y ciclo de vida tardío (López-Guzmán et al., 2017), constituye un elemento esencial para la reproducción sociocultural, así como para la alimentación básica de la población nayarita, particularmente de los habitantes de la región de Jala, además encarna un símbolo cultural para sus habitantes (Madera-Pacheco y Vázquez-Quezada, 2018).
Los marcadores moleculares son utilizados en análisis de diversidad como una herramienta complementaria a la caracterización realizada con datos morfológicos (Bonamico et al., 2004), apoyando en el mejoramiento, conservación, etiquetado de genes, introgresión asistida de alelos favorables y protección de variedades vegetales (Gill-Langarica y Mayek-Pérez 2008). Un marcador molecular es un segmento de ADN que puede localizarse físicamente dentro del genoma de un organismo, y puede encontrarse cerca de un gen que codifica una característica de interés (Rocha, 2003). Son indispensables ya que gracias a ellos se pueden localizar y aislar genes de interés que posteriormente pueden emplearse en programas de mejoramiento genético. Existen diferentes tipos como: Polimorfismo de Longitud de Fragmentos Amplificados (AFLP), Polimorfismo Amplificado al azar (RAPD), Secuencias Simples Repetidas (SSR) e Inter Secuencias Simples Repetidas (ISSR) y se distinguen por su capacidad de detectar polimorfismos en loci únicos o múltiples (Barrera-Guzmán, 2017). Los ISSR usan cebadores compuestos de repeticiones de di, tri, tetra o pentanucleótidos, que se hibridan a la región de microsatélites genómicos, razón por la cual no es necesario tener información del genoma. Las secuencias diana de los cebadores ISSR son abundantes en todo el genoma eucariota y evolucionan rápidamente, conllevando a presentar gran cantidad de loci polimórficos que otros marcadores (Quijano-Jara y Lara 2020). Los ISSR permiten cuantificar la diversidad y estructura genética de plantas y su relación con el ciclo de vida, distribución geográfica, estrategias reproductivas, así como identificar poblaciones o taxa genéticamente únicos cuya conservación es prioritaria (Hernández-López et al., 2024). Sharma et al., (2014), describen el análisis ISSR como el sistema de marcadores más eficaz debido a su capacidad para proporcionar muchos loci informativos dentro de una única reacción de amplificación, razón por la cual se han estandarizado y empleado con éxito en diferentes estudios de diversidad genética en plantas (Shahlaei et al., 2014, Campos-Múzquiz et al., 2023, Cruz-Larios et al., 2024, Castañeda-Cardona et al., 2021) y en maíz (Lenka et al., 2015, Erum-Feroz et al., 2022, Hernández-Ramos et al., 2017, Ramakrishnan et al., 2014).
El objetivo de este estudio fue caracterizar muestras representativas de maíz raza Jala provenientes de sitios diferentes y muestras de maíz híbrido mediante marcadores moleculares ISSR, que ayuden a inferir relaciones genéticas vinculadas a su origen, aspectos eco-geográficos, distribución y usos, contribuyendo a una clasificación integral de los recursos fitogenéticos de maíz raza Jala.
2. Materiales y métodos
2.1 Recolección de muestras
La colecta de maíz raza Jala se realizó en los meses de agosto y septiembre cuando las plantas estaban en etapa fenológica “Vn” (es visible el cuello del número definitivo de hojas que tendrá la planta), los sitios de colecta fueron: Jala la vieja, El Llano, El Tiltón y Jomulco. Se utilizó maíz híbrido como control, obtenido en Los metates, ubicado en Tepic, Nayarit (Tabla 1). En cada sitio se seleccionaron 15 genotipos al azar, a excepción de los sitios El Tiltón y Jomulco donde debido al tamaño de la población se colectaron cinco genotipos. Se tomaron al azar dos hojas por planta, las cuales se cortaron manualmente y se colocaron en bolsos herméticos rotulados, se resguardaron en hielera con hielo para evitar su marchitamiento y se trasladaron al laboratorio de Biotecnología de la Unidad Académica de Agricultura de la Universidad Autónoma de Nayarit (UAN).
Tabla 1 Localización e identificación de genotipos colectados.
| SITIO | CORDENADAS | ALTURA | N | IDENTIFICACIÓN |
|---|---|---|---|---|
| Jala la vieja | 2108’09.4”N, 10427’24.7”W | 1174 | 15 | 1, 2, 3, 4, 5, 6, 7, 9, 10, 11, 12, 13, 14, 15 |
| El Llano | 2109’10.8”N, 10426’48.9”W | 1159 | 15 | 16, 17, 18, 19, 20, 21, 22, 23, 24, 25, 26, 27, 28, 29, 30 |
| El Tiltón | 2108’38.2”N, 10427’39.7”W | 1246 | 5 | 31, 32, 33, 34, 35 |
| Jomulco | 2105’09.2”N, 10425’17.6”W | 1057 | 5 | 36, 37, 38, 39, 40 |
| Los metates | 2130’40.1”N, 10452’32.8”W | 920 | 15 | 41, 42, 43, 44, 45, 46, 47, 48, 49, 50, 51, 52, 53, 54, 55 |
N: número de genotipos colectados, ALTURA: Metros sobre el nivel del mar.
2.2 Extracción de ADN
Previo a la extracción de ADN se lavaron las hojas con agua destilada y se secaron con papel estéril. La extracción se realizó mediante el método Saghai-Maroof et al., (1984) con algunas modificaciones: se pesaron 50 mg de muestra, se colocó en mortero de porcelana estéril y se agregaron 1.5 mL de solución amortiguadora de extracción (H2O, 1mM Tris, 5 M NaCl, 0.5 M EDTA, pH 8, CTAB 3%, PvP 3%) previamente incubada a 65 °C durante tres min, la muestra fue macerada en su totalidad y el resultado fue vertido en tubos de 2 mL, que se incubaron a 65 °C durante 60 min homogenizando por inversión cada 10 min durante 15 s. Pasado el tiempo se dejó enfriar la muestra durante 5 min a temperatura ambiente retirando la tapa. Después se agregaron 700 μL de solución cloroformo:octanol (24:1), se mezcló 15 min por inversión y se centrifugó durante 15 min a 14,000 rpm. Se recuperó el sobrenadante en un tubo nuevo de 2 mL, se agregaron 700 μL de solución cloroformo:octanol (24:1), se mezcló por 10 min por inversión y se centrifugó durante 15 min a 14,000 rpm. El sobrenadante fue transferido a un tubo de 2 ml, se agregaron 700 μL de isopropanol frío y se mezcló por inversión suavemente hasta lograr la formación de la pastilla, se centrifugó a 14,000 rpm durante 10 min y el sobrenadante se decantó con cuidado para no perder la pastilla. Se agregó 1 mL de etanol al 75% y la pastilla se lavó por 5 min mezclando suavemente por inversión, se centrifugó durante 10 min a 10,000 rpm y se decantó el sobrenadante. Se agregó 1 mL de etanol al 90% y la pastilla se lavó por 5 min mezclando suavemente por inversión, se centrifugó durante 10 min a 10,000 rpm, el sobrenadante fue decantado y se dejó secar la pastilla completamente, una vez seca se suspendió en 70 μL de TE (Tris-HCl 0.2 M, EDTA 20 mM, pH 7.5) y se almacenó en congelación a -20 °C hasta su posterior uso.
2.3 Cuantificación y presencia de ADN
La concentración y pureza del ADN se realizó por medio de la cuantificación en espectrofotómetro NanoDrop GENOVA NANO (JENWAY, UK) longitud de onda 260/280 nm, se utilizó 1μL de muestra; para comprobar la integridad del ADN, se realizó electroforesis en una cámara Thermo Scientific, Mini Gel Owl B1 EasyCast, B1, en gel de agarosa al 1% en solución TAE (Tris-acetato 0.04 M, EDTA 1mM, pH 8) 1X a 85 V durante 40 min, para la tinción de gel se utilizó el indicador GelRed 10000X a concentración de 1X. Los geles se visualizaron y foto-documentaron en un transiluminador Visiblue Mod. VB-26V (DAIGGER, USA).
2.4 Marcadores utilizados
Se utilizaron ocho marcadores ISSR (Tabla 2) con las secuencias obtenidas por Hernández-Ramos et al., (2017), los cuales se seleccionaron debido a los elevados niveles de polimorfismos que presentaron.
Tabla 2 Marcadores ISSR utilizados.
| MARCADOR | SECUENCIA | TEMPERATURA DE HIBRIDACIÓN (ºC) |
|---|---|---|
| UBC811 | 5' GAGAGAGAGAGAGAGAC 3' | 49 |
| UBC827 | 5' ACACACACACACACACG 3' | 48 |
| UBC834 | 5' AGAGAGAGAGAGAGAGYT 3' | 55 |
| UBC835 | 5' AGAGAGAGAGAGAGAGYC 3' | 48 |
| UBC841 | 5' GAGAGAGAGAGAGAGAYC 3' | 43 |
| UBC857 | 5' ACACACACACACACACYG 3' | 55 |
| UBC868 | 5' GAAGAAGAAGAAGAAGAA 3' | 53 |
| UBC873 | 5' GACAGACAGACAGACA 3' | 46 |
Fuente: Hernández-Ramos et al., (2017).
2.5 Amplificación de ADN mediante PCR
La mezcla de PCR utilizada para amplificar el ADN de maíz contenía los siguientes componentes: 6 μL mezcla maestra Dream Taq green PCR (2X) Thermo Scientific™ (ADN polimerasa DreamTaq, tampón DreamTaq Green optimizado MgCl2 y desoxinucleótidos (dNTP)), 2 μL Water nuclease free Thermo Scientific™, 1μL cebador y 1μL ADN en concentración 50 ng/ml.
El programa utilizado fue el siguiente: 95 °C durante 3 min para el proceso de desnaturalización, seguido de 35 ciclos de 95 °C durante 30 s, las temperaturas de los alineamientos fueron diferentes y se muestran en la Tabla 2, para la extensión 72 °C durante 30 s, seguido por una extensión final de 72 °C durante 5 min. Los productos de PCR fueron evaluados mediante electroforesis en una cámara Thermo Scientific (Mini Gel Owl B1 EasyCast, B1) en un gel de agarosa al 1.5% en solución TAE 1X a 85 V durante 120 min. Para la tinción de gel se utilizó el indicador GelRed 10000X a concentración de 1X, se utilizó marcador de peso molecular 100 pb invitrogen™. Los geles se observaron y foto-documentaron en un transiluminador Visiblue Mod. VB-26V (DAIGGER, USA).
2.6 Análisis de polimorfismos producto de PCR
El análisis de los datos se basó en el número de bandas amplificadas en los geles de agarosa (presencia o ausencia), posteriormente se realizó una matriz de datos (Excel).
2.7 Análisis estadístico
La matriz de datos generada fue procesada en el programa estadístico Rstudio utilizando las librerías dplyr, adegenet, NAM, dendextend, circlize, snow, doSNOW, paralle y ggplot2 y el comando dend para la generación del dendrograma.
Los parámetros de diversidad genética poblacional: porcentaje de polimorfismos, heterocigosis esperada (He), número de alelos efectivos (Ne), número de alelos diferentes (Na) y Análisis Molecular de Varianza (AMOVA) fueron determinados con en el software GenAlEx 6.5.
3. Resultados y discusión
3.1 Calidad de ADN
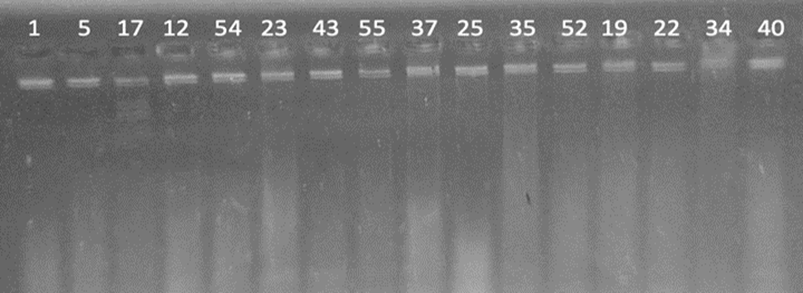
Con la metodología empleada se obtuvo ADN genómico de buena calidad con valores de 1.805 a 2.003 y en concentración suficiente para la amplificación con los marcadores tipo ISSR entre 427 a 753 ng/µL (Figura 1). Rojas-Pantoja (2015), reportó valores de 1.37 a 2.05 y concentración entre 271.1 a 2045.6 ng/µL al extraer ADN de hojas de maíz. Múltiples factores pueden afectar la integridad del ADN durante el proceso de extracción desde la fragmentación del ADN por el calor que genera la fricción hasta la falta de pericia en el procesamiento de las muestras (Demeke y Jenkins, 2009).
3.2 Amplificación y polimorfismos de ISSR
3.2.1 Parámetros de diversidad por marcador molecular
De los ocho marcadores evaluados, uno amplificó hasta 10 bandas diferentes (UBC834) (Figura 2), cinco amplificaron nueve bandas (UBC841, UBC811, UBC835, UBC827 y UBC868) uno amplificó ocho bandas (UBC857) y uno siete bandas (UBC873) en todas las muestras, en promedio 8.75, valor similar a lo reportado por Muhammad et al., (2017), quienes reportaron en promedio 9.5 bandas al caracterizar la diversidad genética de genotipos de maíz basándose en repeticiones de secuencias intersimples. Los pesos moleculares oscilaron entre 200 y 2000 pb. Dichos resultados difieren con lo reportado por Amoon y Abdul-Hamed (2020), quienes reportaron bandas entre 100 a 1700 pb al determinar de la diversidad genética de líneas endogámicas e híbridos de maíz utilizando la técnica ISSR, mientras que Rodas-Solano (2021), encontró bandas que oscilaron entre 100 a 10,000 pb al evaluar 79 accesiones de maíz recolectadas en la Provincia de El Oro, Ecuador.
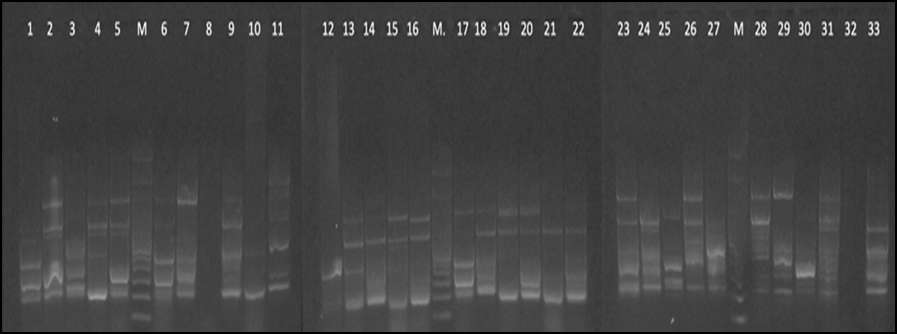
Figura 2 PCR obtenido con el marcador UBC834. 1-33= Número de muestra, M=Marcador de peso molecular.
Los marcadores detectaron entre 147 y 285 alelos, en promedio 202 alelos por marcador. En un estudio similar, Barrera-Guzmán et al., (2020), reportaron 76 alelos, al determinar las relaciones genéticas en muestras de razas mexicanas de maíz, mientras El-Hosary y El-Akkad (2015), reportaron 96 bandas al evaluar la diversidad genética de líneas endogámicas de maíz utilizando marcadores ISSR.
El valor de Heterocigosis esperada (He) osciló entre 0.162 y 0.282, con un promedio de 0.205. Este valor es considerado bajo en comparación con Andueza-Noh et al., (2023), quienes reportaron un He de 0.40 al medir la diversidad genética de variedades locales de maíz cultivados en sistemas tradicionales de cultivo; mientras que, Merino-Díaz (2014), reportó una He de 0.3010. Los valores bajos pueden indicar que las poblaciones en estudio están más aisladas y reciben poco flujo de genes de origen externo o en algunos casos por la autopolinización (Jiménez-Cardona, 2014).
En este estudio el 95.66% de las bandas resultaron polimórficas, valor similar a lo consignado por Uslan y Jannah (2020), quienes reportaron un 100% de bandas polimórficas en su estudio sobre diversidad genética de cultivares locales de maíz del sur de Amarasi, Indonesia, mediante marcador de repeticiones de inter secuencia simple. Por otro lado, Zeyad et al., (2023), encontró un 89% al determinar el comportamiento de genotipos de maíz bajo déficit hídrico mediante el índice molecular ISSR. Estos valores indican que existe una gran variabilidad entre los genotipos evaluados. En promedio, el porcentaje de polimorfismos detectado fue de 67.30% similar a lo encontrado por Pérez-Valenciano (2019), quien encontró un porcentaje de 63.75 pero bajo al compararlo con Soliman et al., (2021), quienes encontraron 89.59% al evaluar la diversidad genética de una colección global de recursos genéticos de maíz. En general, valores mayores a 50% se consideran muy informativos para estimar la diversidad genética, lo que indica que los marcadores utilizados son eficaces para el estudio de la diversidad genética del maíz raza Jala (Jiménez-Cardona, 2014).
Con respecto al número de alelos efectivos (Ne), el promedio obtenido en el estudio fue de 1.343, mientras el número de alelos diferentes (Na) obtenidos en promedio fue de 1.347. En un estudio similar Filiz et al., (2024), reportaron valores de Ne de 1.447 y Na de 1.760 (Tabla 3). Estos valores pueden estar relacionados a la selección de especímenes por parte de los agricultores para su cultivo, lo cual puede provocar un aumento en la posibilidad de que los alelos se trasmitan de una generación a otra, haciendo que se conserven alelos a través del tiempo (Martínez-Chartuny, 2021).
Tabla 3 Análisis de diversidad genética de 40 genotipos de maíz raza Jala y 15 genotipos de maíz híbrido.
| MARCADOR | BD | AE | BP % | P % | RANGO | He | Ne | Na |
|---|---|---|---|---|---|---|---|---|
| 841 | 9 | 147 | 100 | 69.23 | 300-1200 | 0.162 | 1.236 | 1.385 |
| 811 | 9 | 285 | 100 | 69.23 | 500-2000 | 0.282 | 1.517 | 1.385 |
| 835 | 9 | 214 | 100 | 69.23 | 300-1500 | 0.211 | 1.349 | 1.385 |
| 873 | 7 | 157 | 100 | 53.85 | 600-1500 | 0.186 | 1.298 | 1.077 |
| 834 | 10 | 235 | 100 | 76.92 | 200-1500 | 0.244 | 1.406 | 1.548 |
| 827 | 9 | 208 | 88.89 | 69.23 | 400-1500 | 0.164 | 1.258 | 1.385 |
| 857 | 8 | 199 | 87.5 | 61.54 | 300-2000 | 0.2 | 1.367 | 1.231 |
| 868 | 9 | 171 | 88.89 | 69.23 | 500-2000 | 0.194 | 1.318 | 1.385 |
BD: Bandas detectadas en todas las muestras, AE: Alelos encontrados BP: Bandas polimórficas, P%: Polimorfismos, RANGO: tamaño de bandas en pares de bases, He: Heterocigosis esperada, Ne: Número alelos efectivos, Na: Número alelos diferentes.
3.2.2 Parámetros de diversidad por sitio de muestreo
Los sitios con mayor porcentaje de polimorfismos fueron El Llano (52.88%), Tepic (50%) y Jala la vieja (45.19%); en estos sitios se colectó mayor cantidad de muestras; al respecto, Sánchez-Vega et al., (2019), mencionan que los valores de estimación de diversidad genética pueden verse afectados por el número de genotipos en cada población.
La He osciló entre 0.105 (Jomulco) y 0.167 (El Llano). Estos valores son considerados bajos al compararlos con lo reportado por Andueza-Noh et al., (2023), quienes al evaluar variedades locales de maíz por sitios encontraron un He que osciló entre 0.32 y 0.35. Esta baja diversidad en el maíz raza Jala se reportó por Vega-Álvarez et al., (2017), quienes evaluaron la diversidad genética y estructura del maíz nativo de razas del noroeste de México, encontrando que de las razas evaluadas, la raza Jala presentó la menor He. Sánchez et al., (2000), mencionan que valores bajos de He se asocian a diversas cuestiones como siembras en campos pequeños y aislados, la selección de semilla para el siguiente ciclo proviene de un pequeño número de mazorcas y en algunos casos autopolinización.
El valor más bajo de Ne se presentó en el sitio Jomulco (1.187) mientras que el más alto se encontró en el Llano (1.287), los valores de Na oscilaron entre 0.673 (El Tiltón) y 1.096 (El Llano), valores que son bajos al compararlos con el hallazgo Mbuya et al., (2012), quienes reportaron valores de Ne que oscilaron entre 1.364 y 1.455, y valores de Na entre 1.740 y 1.802 (Tabla 4).
Tabla 4 Análisis de diversidad genética por sitio de muestreo de 40 genotipos de maíz raza Jala y 15 genotipos de maíz híbrido.
| SITIO | MUESTRAS | AE | P% | RANGO | He | Ne | Na |
|---|---|---|---|---|---|---|---|
| Jala la vieja | 15 | 447 | 45.19 | 200-2000 | 0.148 | 1.25 | 0.971 |
| El Llano | 15 | 442 | 52.88 | 200-2000 | 0.167 | 1.287 | 1.096 |
| El Tiltón | 5 | 140 | 36.54 | 200-2000 | 0.13 | 1.219 | 0.837 |
| Jomulco | 5 | 154 | 25.96 | 300-2000 | 0.105 | 1.187 | 0.673 |
| Tepic | 15 | 433 | 50 | 300-2000 | 0.16 | 1.28 | 1.04 |
AE: Alelos encontrados, P%: Polimorfismos, RANGO: tamaño de bandas en pares de bases, He: Heterocigosis esperada, Ne: Número alelos efectivos, Na: Número alelos diferentes.
3.2.3 AMOVA
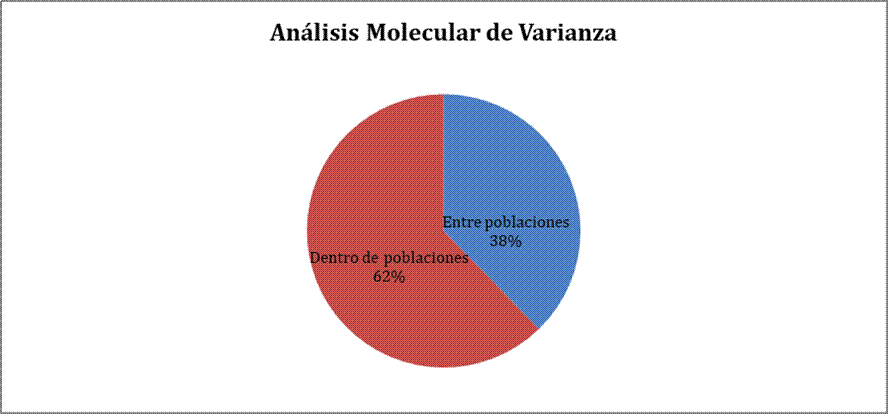
El Análisis Molecular de Varianza (AMOVA) (Figura 3) mostró mayores porcentajes (62%) en la variación dentro de poblaciones, similar a lo reportado por Dar et al., (2018), quienes encontraron una variación dentro de las poblaciones de 67% al realizar una caracterización comparativa de germoplasma de maíz en la región de Rajouri de Pir Panjal Himalaya, basada en marcadores morfológicos e ISSR. Ghafari-Azar et al., (2019), reportaron mayor variación entre poblaciones (91%) al evaluar la diversidad genética y agrupamiento de líneas de maíz mediante marcadores ISSR Al respecto, Vega-Álvarez (2015), menciona que un bajo nivel de variación entre poblaciones de la raza Jala puede deberse a su adaptación tan específica, delimitada principalmente al Valle de Jala, lo que ha provocado mayores índices de endogamia.
3.2.4 Análisis de conglomerados y caracterización de grupos
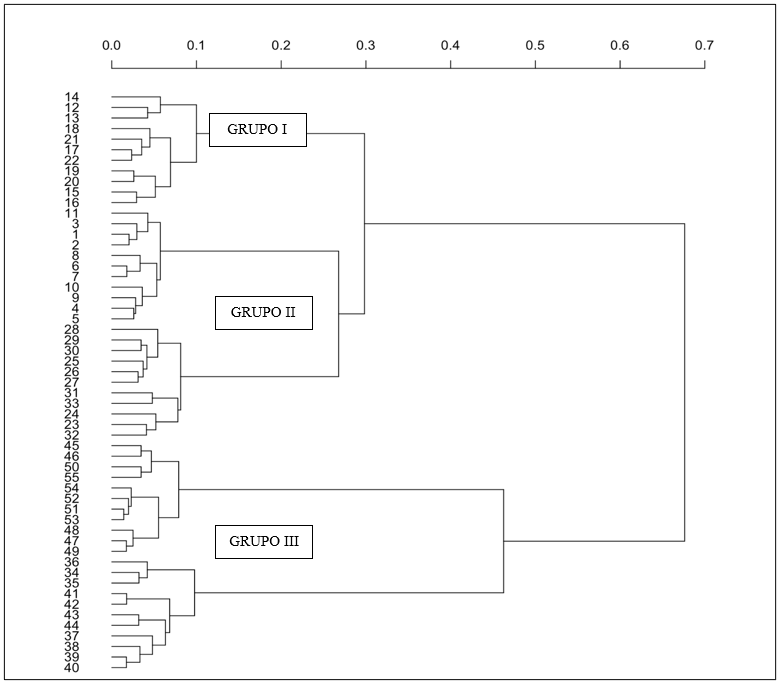
El análisis de agrupamiento determinó tres grupos. Grupo I, incluyó 11 genotipos de los sitios El Llano y Jala la vieja; Grupo II, incluyó 22 genotipos pertenecientes en su mayoría a Jala la vieja y el Tiltón; Grupo III, Incluyó 22 genotipos principalmente de Tepic y Jomulco. Saengprajak et al., (2024), encontraron un agrupamiento similar al evaluar morfológica y genéticamente poblaciones locales de maíz para forraje y grano. La dispersión de las poblaciones nativas a través de los tres grupos confirma la existencia de altos niveles de variación en los caracteres evaluados, lo que era de esperarse por el origen distinto de los genotipos evaluados.
4. Conclusiones
Se demostró que los marcadores moleculares fueron eficientes en discriminar entre y dentro de los materiales genéticos evaluados y corroboró la variabilidad genética existente en el cultivo de maíz raza Jala. Los valores de diversidad genética encontrados fueron relativamente bajos, en los parámetros de Heterocigosis esperada, número de alelos efectivos y número de alelos diferentes, mientras el porcentaje de polimorfismos es alto, probablemente esto se deba a factores como la selección, endogamia, reducción de superficie de siembra y pérdida de hábitats naturales, lo que limitan la posibilidad de cruzamiento entre poblaciones. Por ello se sugiere emprender acciones dentro de programas de conservación y mejoramiento que permitan asegurar los recursos genéticos y mantener las características únicas de esta raza.

