


 nova página do texto(beta)
 Espanhol (pdf)
 Artigo em XML
 Referências do artigo

 Tradução automática
 Enviar este artigo por email
 Citado por SciELO
 Similares em
SciELO

 Permalink


Introducción
El grupo animal más diverso del planeta es el de los insectos (Hailay-Gebremariam 2024). En él se incluyen los insectos escama (Hemiptera: Sternorrhyncha: Coccoidea), un grupo cosmopolita de insectos que se hospedan en una amplia variedad de plantas y se alimentan de diversas estructuras vegetales, como hojas, tallos y raíces (Ross y Shuker 2009). Se alimentan con sus estiletes, succionando la savia del floema o las células del parénquima (Branco et al. 2021). Los insectos escama desempeñan un papel crucial en los ecosistemas naturales al ser parte de la red trófica. Además, muchas de sus especies tienen importancia económica: algunas son plagas agrícolas, mientras que otras proporcionan beneficios como colorantes, cera, resinas, aditivos farmacéuticos, control biológico de malezas y alimento para humanos, aves, abejas y otros insectos (Kondo y Gullan 2022).
Las familias Diaspididae, Pseudococcidae y Coccidae tienen la mayor diversidad de especies de insectos escama, conocidas comúnmente como escamas armadas, cochinillas harinosas y cochinillas blandas, respectivamente (Kondo et al. 2008). Pseudococcidae y Coccidae producen mielecilla (Kunkel 1997), una sustancia azucarada, rica en nutrientes (Delabie 2001), también llamada miel de rocío (Ramos y Serna 2004). Las especies de estas familias suelen establecer relaciones mutualistas con hormigas fenómeno denominado trofobiosis (Delabie 2001). En estas interacciones, las hormigas consumen la mielecilla y protegen a los insectos escama de sus enemigos naturales (Sodano et al. 2023), además de favorecer su dispersión (Ramos y Serna 2004). Por otro lado, las interacciones entre Diaspididae y hormigas son menos comunes (Delabie 2001). Esta familia no produce mielecilla (Delabie 2001). Sin embargo, algunos artículos documentan relaciones de escamas armadas con hormigas del género Melissotarsus en África, donde se especula que las hormigas podrían recibir como alimento cera, secreciones o el propio cuerpo del insecto (Schneider et al. 2013).
La hormiga escamolera, Liometopum apiculatum (Mayr, 1870; Hymenoptera: Formicidae,), es una de las especies que interactúa con insectos de las familias Pseudococcidae, Coccidae y Diaspididae (Velasco-Corona et al. 2007). En las zonas rurales de México, L. apiculatum es importante socioeconómicamente (Cruz-Labana et al. 2014), puesto que las pupas de las castas reproductoras, comúnmente llamadas “escamoles”, se aprovechan como alimento desde tiempos prehispánicos (Lara et al. 2015). Asimismo, su importancia ecológica se infiere a través de sus interacciones en el ecosistema. Por ejemplo, en el matorral xerófilo, algunas de las plantas que la hormiga escamolera utiliza como sitios de anidación y forrajeo son las palmas (Yucca spp.) (Rafael-Valdez et al. 2017). En ellas, los nectarios extraflorales también pueden ser aprovechados por la hormiga (Lara et al. 2015). Además, las palmas utilizadas como sustratos de forrajeo, próximas a los nidos pueden hospedar insectos escama (Rafael-Valdez et al. 2017). Aunado a esto, si los insectos escama excretan mielecilla, pueden establecer trofobiosis con las hormigas (Lara et al. 2015).
En la región del Altiplano Potosino-Zacatecano, en particular, en matorral xerófilo en el municipio de Villa González Ortega, Zacatecas, L. apiculatum coexiste con plantas de Yucca spp. e insectos escama (Rafael-Valdez et al 2017). Aquí, las familias Pseudococcidae, Coccidae y Diaspididae, hospedadas en follaje de Yucca spp., parecen jugar un papel importante en una potencial interacción mutualista con L. apiculatum, además de soportar cadenas tróficas superiores. En la zona, L. apiculatum es importante ecológica (Hernández-Roldan et al. 2017) y socioeconómicamente, por el aprovechamiento de escamoles (Rafael-Valdez et al. 2017). Por lo anterior, la asociación evidente de insectos escama con el follaje de la palma (Yucca spp.) representa manejo sustentable del hábitat, para los habitantes de Villa González Ortega, Zacatecas. A pesar de la importancia ecológica de las familias Pseudococcidae, Coccidae y Diaspididae, los estudios sobre su ecología en follaje de Yucca spp. en el Altiplano Potosino-Zacatecano son inexistentes. Tampoco se han realizado estudios sobre su distribución vertical en esta especie. Además, el conocimiento de las posibles interacciones bióticas entre los insectos escama y su hábitat ha sido escasamente estudiado en este tipo de ecosistemas. Por lo tanto, el objetivo de este trabajo fue determinar los patrones de distribución vertical de insectos escama (Coccoidae) sobre el follaje de Yucca spp. Además, identificar algunas variables del hábitat que determinan la presencia de estos insectos escama.
Materiales y métodos
Área de estudio y diseño de muestreo
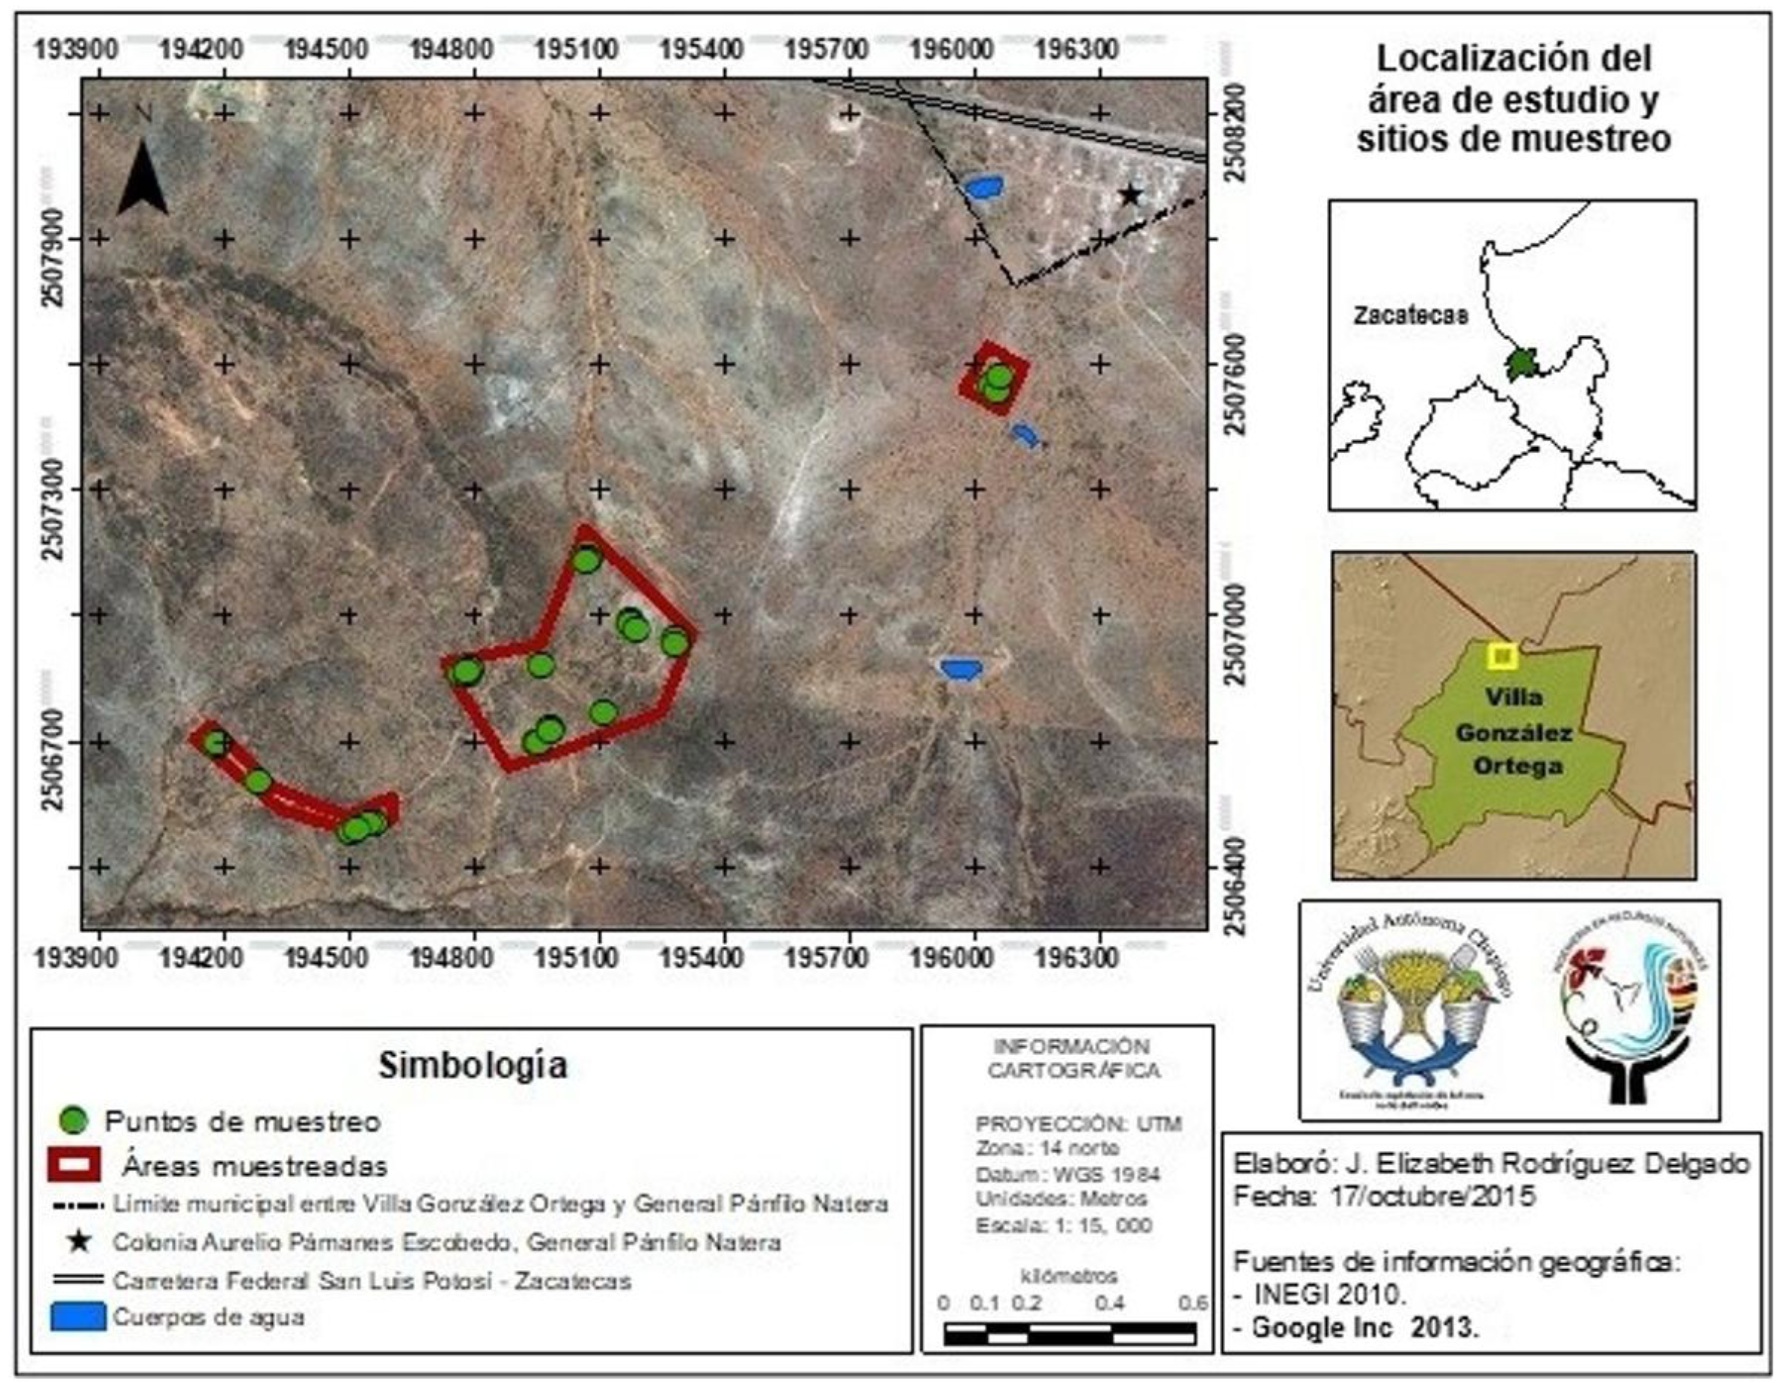
El área de estudio se localizó en el noroeste del municipio de Villa González Ortega, Zacatecas, en la zona UTM 14 LN, entre las coordenadas máximas 2507652.986 LN, 196124.991 LE y mínimas 2506460.378 LN, 194122.040 LE, a una altitud entre los 2 170 y 2 220 msnm. En la zona, el clima es de tipo BS1kw, semiseco templado con lluvias en verano (INEGI 2020) y hay dos tipos de vegetación: matorral crasicaule y matorral desértico micrófilo (INEGI 2018).
Mediante un muestreo dirigido se seleccionaron tres parcelas con una superficie de alrededor de 19.86 ha en conjunto. En estas parcelas se seleccionaron 32 sitios distribuidos de manera diferencial. En cada sitio se seleccionó una palma (Yucca spp.) con follaje infestado por insectos escama, mismos que fueron registrados y evaluados en cada estrato (superior, medio e inferior) del follaje (roseta); así como las variables del hábitat y cobertura del suelo (Figura 1).
Trabajo de campo y laboratorio
Durante el periodo de junio a agosto de 2014 se evaluaron 32 palmas (Yucca spp.) con presencia de insectos escama en el follaje, al mismo tiempo se evaluaron variables del hábitat y cobertura del suelo. Las variables registradas en cada planta fueron: altura, diámetro a la altura normal (DAN; 1.30 m), número de ramas y número de rosetas de follaje. Además, las variables para evaluar la cobertura del suelo (porcentajes de plantas arbustivas y gramíneas, material leñoso muerto y suelo desnudo) se cuantificaron con dos líneas de Canfield de 20 m (Canfield 1941), en cada sitio. Partiendo de la palma evaluada, la primera línea se colocó a 10 m al sur y a 10 m al norte; la segunda línea se colocó a 10 m al este y 10 m al oeste. De manera adicional, en cada sitio también se registraron las variables de altitud y pendiente.
La identificación de las palmas (Yucca spp.) no se realizó a nivel de especie debido a que, durante el periodo de muestreo, las plantas no tenían inflorescencias (panículas), estructuras esenciales para su correcta determinación taxonómica. No obstante, según los registros de Matuda y Piña (1980), las especies Yucca decipiens (Trel., 1907) y Yucca filifera (Chabaud, 1976) (comúnmente conocidas como Palma China o Izote) se distribuyen en algunos municipios de Zacatecas y San Luis Potosí. Aunque los autores no reportan estas especies explícitamente para el municipio de estudio, éstas son componentes típicos del Matorral Desértico Micrófilo y Matorral Crasicaule en algunas partes del Altiplano Potosino-Zacatecano (Rzedowski 1957). Además, investigaciones recientes documentaron la presencia de estas especies en la región. Por ejemplo, Rebolledo-Hernández et al. (2024) y Martínez-Betancourt et al. (2025) reportaron a Y. decipiens en una zona próxima al área de estudio. Por su parte, Sánchez-González et al. (2018) registraron a Y. filifera en la región fronteriza entre Zacatecas y San Luis Potosí, también dentro del Altiplano. Debido a las limitaciones en la identificación específica, en este trabajo se empleó sólo el género Yucca spp. para referirse a las palmas muestreadas.
La evaluación de insectos escama se realizó eligiendo una roseta de follaje infestada por cada palma muestreada. En cada roseta, el muestreo se realizó de forma sistemática, dividiendo el follaje en tres estratos: 1) superior, 2) medio e 3) inferior. De cada estrato se seleccionó una hoja infestada, así se obtuvieron tres hojas por roseta por planta. En las hojas seleccionadas se registraron las variables de orientación y altura de la hoja (respecto al suelo), orientación de la roseta, temperatura de la hoja y hora del muestreo. La recolecta de este tipo de insectos se efectuó mediante la metodología de corte de hojas seleccionadas (Schowalter 1994) y, su preservación en frascos con alcohol al 70%, para posteriormente contar el número de ellos en laboratorio.
La identificación taxonómica de dichas muestras fue realizada en el Centro Nacional de Referencia Fitosanitaria del Servicio Nacional de Sanidad, Inocuidad y Calidad Agroalimentaria (SENASICA; orden de servicio 87520, claves internas: 15P0056991 - Pseudococcidae; 15P0056990 - Coccidae; 15P0056987 - Diaspididae de fecha 13 de octubre de 2015), en Tecámac, Estado de México.
La colecta de insectos y el registro de las variables del hábitat y cobertura del suelo se realizaron entre las 09:00 y 19:00 h. El conteo y clasificación de insectos por familia se realizó en el Laboratorio de Agua, Suelo y Planta del Campus San Luis Potosí, Colegio de Postgraduados, utilizando un microscopio estereoscópico marca Leica con resolución 10x/23, cajas Petri y pinzas entomológicas.
Análisis estadístico
La información del total de individuos de cada familia de insecto escama por estrato se analizó con Frecuencia de Observación (FO; Curts 1993). Los análisis fueron: 1) FO general por familia (Pseudococcidae, Coccidae y Diaspididae), 2) FO de insectos escama por estrato (superior, medio e inferior), 3) Fo de insectos de cada familia (Pseudococcidae, Coccidae y Diaspididae) por estrato y 4) FO por familia en los diferentes estratos (superior, medio e inferior). Todos los análisis fueron realizados en Excel® (Microsoft Corporation 2013) y se calcularon a partir de la siguiente ecuación, adaptada según el caso:
Para evaluar diferencias significativas en las cantidades de individuos de insectos escama en los estratos se realizaron pruebas de Kruskal-Wallis (Zar 1999), debido a que los datos no cumplieron con los supuestos de normalidad (Shapiro y Wilk 1965) ni homogeneidad de varianzas (Bartlett 1937). Los datos comparados fueron: (1) individuos por familia (Pseudococcidae, Coccidae y Diaspididae) en cada estrato, (2) individuos por familia entre estratos (superior, medio e inferior) y (3) insectos escama en general entre estratos. Todos los análisis se realizaron con un nivel de significancia de α = 0.05, utilizando el software JMP®, versión 8.0 (SAS 2008).
Así mismo, la probabilidad de ocurrencia de las familias Pseudococcidae, Coccidae y Diaspididae (variable respuesta) se evaluó en los diferentes estratos verticales: superior, medio e inferior (variable independiente). Para ello, se utilizó un Modelo de Regresión Logística Multinomial (Hosmer y Lemeshow 2000). El análisis se realizó utilizando el software R versión 3.2.2 (R Core Team 2015).
Finalmente, para evaluar la asociación entre el número de individuos de las familias Pseudococcidae, Coccidae y Diaspididae presentes en los estratos superior, medio e inferior (variable dependiente, Y), y las variables del hábitat y cobertura del suelo (variables independientes, Xi), se desarrollaron Modelos de Regresión Poisson (Agresti 2013). El modelo utilizó una función de vínculo logarítmica para relacionar las variables independientes con las de respuesta (McCullagh y Nelder 1989, Agresti 2013). Los análisis se desarrollaron en tres etapas aplicando: 1) un Modelo Lineal Generalizado con distribución Poisson (McCullagh y Nelder 1989, Agresti 2013), 2) un procedimiento de selección de variables por pasos (Stepwise; Agresti 2013) y 3) un criterio de selección del ajuste del mejor modelo a través del Criterio de Información de Akaike (AIC; Akaike 1969, Burnham y Anderson 2002). Todos los análisis se realizaron en R versión 3.2.2 (R Core Team 2015). En todos los casos se utilizó un nivel de significancia de α = 0.05 (nivel de confianza del 95%).
Resultados
En este estudio se registraron 17 882 individuos de insectos escama (de las tres familias taxonómicas) en el follaje de Yucca spp. Del total, el 73.4% (n = 13,128) correspondió a la familia Pseudococcidae - Pseudococcus sp., el 23.7% (n = 4.238) a Coccidae - Coccus hesperidum (L., 1758), y solo el 2.9% (n = 516) a Diaspididae - Lindingaspis rossi (Maskell, 1892). El estrato superior exhibió la mayor cantidad de individuos (42.9%), seguido del estrato inferior (30.3%) y el medio (26.8%). Pseudococcidae fue la familia más común en los tres estratos, mientras que Diaspididae fue la menos frecuente. En cuanto a su distribución vertical, Pseudococcidae tuvo mayor representación en el estrato superior (Figura 2), mientras que Coccidae y Diaspididae se concentraron principalmente en el estrato inferior (Tabla 1).
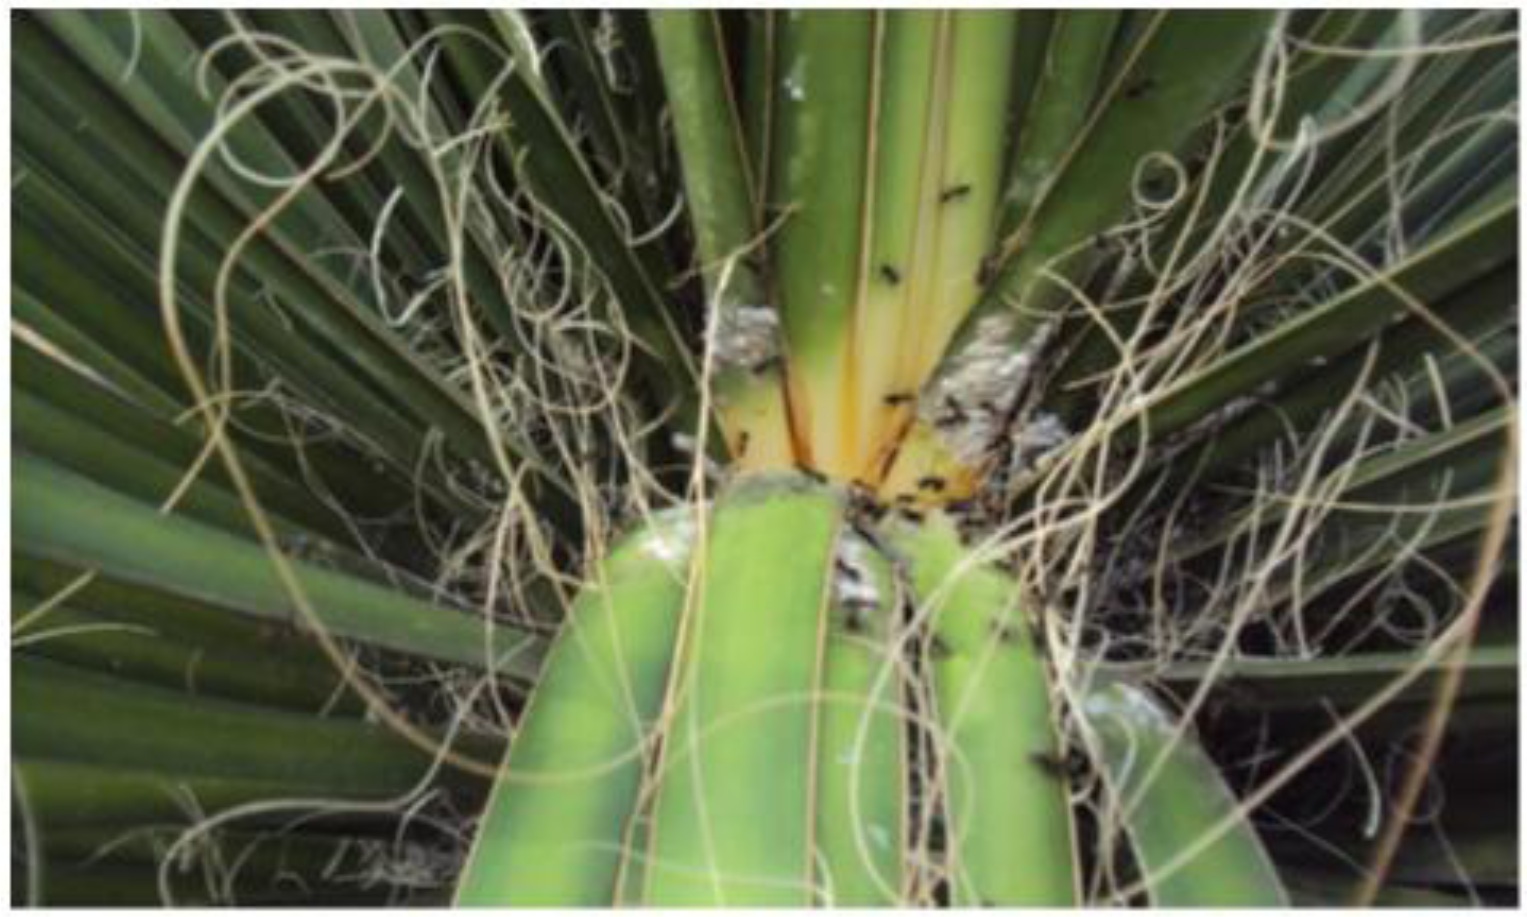
Figura 2 Cochinillas harinosas (Pseudococcidae) en follaje de Yucca spp. interactuándo con L. apiculatum en Villa González Ortega, Zacatecas.
Tabla 1 Número de individuos y valor porcentual de frecuencia de observación de insectos escama y estrato de follaje de Yucca spp.
| Estrato | Inferior (n = 5 421; 30.3%) | Valor % (↓) | Medio (n = 4 795; 26.8%) | Valor % (↓) | Superior (n = 7 666; 42.9%) | Valor % (↓) | |
|---|---|---|---|---|---|---|---|
| Familia | |||||||
| Pseudococcidae | 3 321 | 61.261 | 3 051 | 63.628 | 6 756 | 88.129 | |
| Valor % (→) | 25.297 | - | 23.240 | - | 51.462 | - | |
| Coccidae | 1 731 | 31.931 | 1 617 | 33.722 | 890 | 11.609 | |
| Valor % (→) | 40.844 | - | 38.154 | 21.000 | - | ||
| Diaspididae | 369 | 6.806 | 127 | 2.648 | 20 | 0.260 | |
| Valor % (→) | 71.511 | - | 24.612 | - | 3.875 | - | |
↓: Frecuencia de observación de insectos escama por familia dentro de cada estrato de follaje. →: Frecuencia de observación de insectos escama por familia a través de los estratos de follaje.
La cantidad de individuos de cada familia (Pseudococcidae, Coccidae y Diaspididae) entre estratos de follaje no mostró diferencias significativas (p > 0.05), al igual que la cantidad de insectos escama en general entre estratos (p = 0.5703). En contraste, las comparaciones de la cantidad de individuos de las familias dentro de cada estrato (superior, medio e inferior) revelaron diferencias estadísticamente significativas (p < 0.0001, Tabla 2).
Tabla 2 Resultados de Kruskal-Wallis para las comparaciones de cantidades de individuos por familia en cada estrato, individuos por familia entre estratos e insectos escama en general entre estratos, en follaje de Yucca spp.
| Variables analizadas | Chi-square | P-value |
|---|---|---|
| Familias (P, C y D) - Estrato | ||
| Superior | 45.7937 | < 0.0001 |
| Medio | 34.8886 | < 0.0001 |
| Inferior | 29.1719 | < 0.0001 |
| Estratos (I, M y S) - Familia | ||
| Pseudococcidae | 2.0482 | 0.3591 |
| Coccidae | 3.2211 | 0.1998 |
| Diaspididae | 2.5882 | 0.2741 |
| Estratos (I, M y S) - Insectos escama | ||
| General | 1.1231 | 0.5703 |
P: Pseudococcidae; C: Coccidae; D: Diaspididae; I: Inferior; M: Medio; S: Superior.
Por otra parte, el Modelo de Regresión Logística Multinomial (MRLM; AIC = 22 176.73) estimó las probabilidades condicionales de ocurrencia de cada familia en los diferentes estratos. Los resultados indicaron que Pseudococcidae presentó la mayor probabilidad de ocurrencia en todos los estratos, seguida por Coccidae y Diaspididae. Asimismo, Pseudococcidae presentó mayor probabilidad de ocurrencia en el estrato superior (0.8813), mientras que Coccidae mostró mayor probabilidad en el estrato medio (0.3372). Por su parte, Diaspididae mostró su mayor probabilidad de ocurrencia en el estrato inferior (0.0681, Tabla 3).
Tabla 3 Probabilidades de ocurrencia de insectos escama por familia y estrato de follaje de Yucca spp., con base en un modelo de regresión logística multinomial.
| Familia | Estrato | ||
|---|---|---|---|
| Inferior | Medio | Superior * | |
| Pseudococcidae * | 0.6126 | 0.6363 | 0.8813** |
| Coccidae | 0.3193 | 0.3372** | 0.1161 |
| Diaspididae | 0.0681** | 0.0265 | 0.0026 |
*Categorías de referencia en el MRLM; **Mayor probabilidad de ocurrencia de cada familia.
Finalmente, el Modelo de Regresión Poisson ajustado (AIC = 45 017) indicó que 14 variables tuvieron efectos significativos (p ≤ 0.001) sobre el número de insectos escama en los tres estratos del follaje de Yucca spp. (Tabla 4). Los coeficientes positivos indican un aumento en el número de insectos escama conforme se incrementa la variable explicativa, mientras que los coeficientes negativos indican una disminución. La mayoría de las variables explicativas mostraron coeficientes negativos, lo que sugiere que los insectos escama tienden a concentrarse en hojas más bajas y con temperaturas menos elevadas, en palmas más bajas con menos rosetas de follaje, en sitios con menor cobertura del suelo (plantas arbustivas, gramíneas y material leñoso muerto), menor altitud y menor pendiente. En cambio, el DAN, el número de ramas y la orientación de la hoja presentaron coeficientes positivos, lo que propone que estas características favorecen una mayor presencia de insectos escama en el follaje de Yucca spp.
Tabla 4 Resultados de la Regresión Poisson para la relación entre el número de insectos escama en los tres estratos del follaje de Yucca spp. y las variables del hábitat y cobertura del suelo.
| Variables | Coeficiente estimado | Error estándar | Valor de z | Pr(>|z|) |
|---|---|---|---|---|
| Intercepto | 16.7412465 | 2.0202171 | 8.287 | < 2e-16 |
| Altura de la hoja evaluada | -0.4557243 | 0.0217154 | -20.986 | < 2e-16 |
| Altitud del sitio | -0.0047675 | 0.0009177 | -5.195 | 2.04E-07 |
| Altura de la palma | -0.1257106 | 0.0165433 | -7.599 | 2.99E-14 |
| Cobertura del suelo (plantas arbustivas) | -0.021497 | 0.001692 | -12.705 | < 2e-16 |
| Diámetro a la Altura del Pecho (DAP) | 0.0879577 | 0.0029146 | 30.179 | < 2e-16 |
| Hora de muestreo | -0.0423209 | 0.0055641 | -7.606 | 2.83E-14 |
| Cobertura del suelo (material leñoso muerto) | -0.0057301 | 0.0012114 | -4.73 | 2.24E-06 |
| Orientación de la hoja | 0.001499 | 0.0001042 | 14.39 | < 2e-16 |
| Orientación de la roseta de follaje | -0.0009767 | 0.0001244 | -7.853 | 4.06E-15 |
| Cobertura del suelo (gramíneas) | -0.0327473 | 0.0022906 | -14.297 | < 2e-16 |
| Número de rosetas de follaje en la palma | -0.0958597 | 0.0072578 | -13.208 | < 2e-16 |
| Pendiente del sitio | -0.0572404 | 0.0057264 | -9.996 | < 2e-16 |
| Número de ramas | 0.0916183 | 0.0145131 | 6.313 | 2.74E-10 |
| Temperatura de la hoja evaluada | -0.0420191 | 0.002522 | -16.661 | < 2e-16 |
Todas las variables tienen significancia estadística (p < 0.001) en el Modelo de Regresión Poisson. El modelo fue ajustado mediante un procedimiento de selección de variables por pasos (stepwise) para evaluar la relación entre el número de insectos escama en los tres estratos del follaje de Yucca spp. (variable respuesta) y variables del hábitat y cobertura del suelo (variables explicativas).
Discusión
En este trabajo se registraron tres familias de insectos escama en el follaje de Yucca spp. La familia Pseudococcidae representó el 73.4% del total de individuos registrados, Coccidae con el 23.7% y Diaspididae con el 2.9%. Estas frecuencias guardan cierta similitud con las observadas por Ramírez et al. (2001) sobre interacciones entre plantas, hormigas y Homópteros en bosques secos de Colombia, en el que documentaron la presencia de Pseudococcidae (45% de los individuos registrados), Coccidae (con el 26%), y el porcentaje restante de familias del orden Hemíptera, encontrando que los insectos escama se asociaron principalmente a palmas zanconas (Syagrus sancona), y a algunos ejemplares de la familia Myrtaceae. Además, durante el presente estudio, las observaciones de campo evidenciaron interacciones frecuentes entre hormigas e insectos de las familias Pseudococcidae y Coccidae, posiblemente asociadas con la producción de mielecilla característica común de estos grupos. Asimismo, en algunas hojas se registró la coexistencia de las tres familias de insectos escama junto con la presencia de hormigas, lo que sugiere una posible asociación bajo ciertas condiciones: por ejemplo, Ramos y Serna (2004) y Velasco-Corona et al. (2007) señalaron que varias especies de hormigas se llegan a alimentar directamente de secreciones glandulares del pigidio de algunos de dichos insectos; a cambio éstas les brindan protección. Estas observaciones, aunque complementarias, podrían orientar estudios futuros sobre relaciones mutualistas en este sistema.
Aunque la familia Pseudococcidae fue la predominante en el estrato superior, en general no existieron diferencias estadísticamente significativas en la distribución vertical de las tres familias entre los estratos de las rosetas del follaje de Yucca spp. en Villa González Ortega, Zacatecas. Esta tendencia coincide parcialmente con lo observado por Nestel et al. (1995), Wardhaugh (2014), Rodrigues-Silva et al. (2021) y De Souza et al. (2022) quienes señalaron que la distribución vertical de algunos insectos fitófagos estuvo influenciada, espacial y temporalmente, por diversos factores bióticos y abióticos; por ejemplo, las tolerancias climáticas e interacciones con otros organismos, comportamiento intrínseco entre las especies, niveles altos de compuestos químicos de defensa y valor nutricional que exhibieron las hojas, así como la disponibilidad de recursos; lo que determinó la preferencia de dichos insectos por los estratos más nutritivos o con mayor cantidad de recursos en las hojas de las palmas, lo cual es clave para su adaptación en el área de estudio.
En parte, la tendencia registrada en el presente estudio podría estar asociada a las interacciones observadas con hormigas, como lo sugieren Wang et al. (2021) quienes indicaron que la abundancia de Hemípteros puede incrementarse en presencia de hormigas, con las que establecen relaciones mutualistas. Sin embargo, esta influencia puede variar dependiendo de la especie de insecto escama (Marchiori et al. 2023), lo que podría explicar la variación observada entre Pseudococcidae y Coccidae, las cuales interactúan con hormigas. Para la zona de estudio, Rafael-Valdez et al. (2017) reportaron la presencia de la hormiga escamolera (L. apiculatum), y su interacción con insectos escama en Yucca spp. Así, el patrón de mayor probabilidad de ocurrencia de Pseudococcidae podría estar, en parte, relacionado con este tipo de interacciones. Además, Wen et al. (2024) demostraron que las hormigas Solenopsis invicta favorecen competitivamente a la cochinilla harinosa Planococcus lilacinus (Pseudococcidae) frente a la mosca de la fruta, Bactrocera dorsalis (Diptera: Tephritidae), en huertos frutales. De este modo, se recomienda que estudios futuros en la zona evalúen la interacción específica entre L. apiculatum, las familias de insectos escama y Yucca spp., para comprender cómo estas relaciones influyen en la estructura de la comunidad y en las dinámicas poblacionales asociadas al follaje de estas plantas, tal como lo mencionaron Rebolledo-Hernández et al. (2024).
Por otra parte, las tendencias indicaron que diversas variables del hábitat y de la cobertura del suelo se asociaron significativamente con las familias de insectos escama en el follaje de Yucca spp. en la zona de estudio. La mayoría de las variables explicativas presentaron coeficientes negativos, lo que sugiere que, a medida que aumentan estas variables, disminuye la cantidad de insectos escama presentes en el follaje. Este patrón se observó en variables relacionadas con la estructura de la planta (altura de la hoja, orientación de la roseta de follaje, altura total de la palma y número de rosetas de follaje), con el microclima (temperatura de la hoja evaluada), con la cobertura del suelo (plantas arbustivas, gramíneas y material leñoso muerto) y con el sitio (altitud y pendiente). Por otro lado, otras variables estructurales de la planta, como el DAN, el número de ramas y la orientación de la hoja, mostraron coeficientes positivos, lo que sugiere que conforme estas variables aumentan también aumenta la cantidad de insectos escama en el follaje. Las variables analizadas en la presente investigación contribuyen a determinar la presencia de insectos escama de las familias Pseudococcidae, Coccidae y Diaspididae sobre Yucca spp. en un matorral xerófilo.
El DAN y el número de ramas se asociaron positivamente con la presencia de las familias de insectos escama en el follaje de Yucca spp., mientras que el número de rosetas mostró una asociación negativa. En conjunto, esta estructura vegetal favoreció la presencia de estos insectos. De manera similar, en este estudio se sugiere que una arquitectura vegetal caracterizada por un mayor DAN, un número mayor de ramas y un número menor de rosetas podrían incrementar la disponibilidad de recursos y microhábitats favorables para los insectos escama, favoreciendo así su crecimiento poblacional. Esto refuerza la importancia de estas variables en la presencia de insectos escama en el follaje de Yucca spp.
La altura de la hoja (respecto al suelo) y altura de la palma se asociaron inversamente con la abundancia de individuos de las familias de insectos escama. Este comportamiento podría explicarse por las condiciones microclimáticas más favorables que tal vez se encontraron en el estrato inferior de la estructura foliar de la palma. Aunque este estudio no evaluó directamente esas condiciones microclimáticas, otra investigación documentó patrones similares, en donde los insectos se desplazaron dentro de la copa de los árboles cítricos en función de variaciones abióticas (Inskeep et al. 2021), desplazándose hacia la parte inferior del dosel, el cual presentó temperaturas más bajas, menor intensidad lumínica y mayor humedad relativa. Los autores concluyen que este comportamiento reflejó una tendencia de los insectos a ocupar hábitats bien definidos y, a una escala menor, presentaron preferencias por microhábitats distintivos. En este sentido, es plausible que los insectos escama en Yucca spp. también seleccionaron ubicaciones más bajas en la estructura foliar, donde las condiciones microclimáticas pudieron ser más favorables para su desarrollo y supervivencia.
En el presente estudio las orientaciones de las hojas y rosetas de follaje también fueron variables estadísticamente significativas. Al respecto, algunos estudios han registrado la importancia de la orientación en la distribución y abundancia de insectos; por ejemplo, González et al. (2005) encontraron que las densidades poblacionales de Lepidosaphes gloverii (Pack., 1869; Hemiptera: Diaspididae) fueron mayores en la exposición noroeste de árboles de naranjo (74.6% de infestación). Asimismo, Moreno et al. (2008) encontraron que la frecuencia mayor de Diaphorina citri Kuwayama (Hemiptera: Psyllidae) ocurrió en la exposición norte de la huerta de Citrus latifolia var. lima persa; Aroua et al. (2020) determinaron que las larvas móviles de Parlatoria ziziphi (Lucas, 1853; Hemiptera: Diaspididae) migraron hacia puntos cardinales con condiciones microclimáticas más favorables en huertos de cítricos. Estos resultados podrían sugerir que los insectos escama tendieron a ocupar orientaciones con condiciones microclimáticas más adecuadas para su desarrollo. En este contexto, la orientación de estructuras vegetales (hojas y rosetas de follaje) de Yucca spp. influyó en la presencia de las tres familias de insectos escama estudiadas.
Por el contrario, la temperatura de la hoja tuvo una relación inversa con la abundancia de insectos escama. Este hallazgo se alinea con lo señalado por Frank (2021) quien afirma que la temperatura elevada, derivada de factores como la latitud, altitud, urbanización, entre otros, afectan el ciclo de vida y la adaptación de los insectos escama, los cuales tienen límites térmicos; por ejemplo, su fecundidad, supervivencia y longevidad disminuyeron a una temperatura de mayor igual de 30 °C, lo que redujo su crecimiento poblacional. Asimismo, Frank (2021), destacó que las respuestas térmicas fueron específicas de cada especie y su estadio de desarrollo, como se ha documentado en diversos estudios; por ejemplo, las temperaturas altas tuvieron un efecto positivo sobre Pseudococcus elisae (Pseudococcidae) en plantaciones bananeras (Becke et al. 2024). Otro caso es el comportamiento del piojo harinoso de la vid, Planococcus ficus; para protegerse de las temperaturas altas, este se desplaza hacia la raíz (Daane et al. 2003). De manera similar, la temperatura influyó en el desarrollo y supervivencia de Pseudococcus longispinus en plantaciones de café (Santa-Cecilia et al. 2011). En conjunto, los efectos térmicos sobre la supervivencia y aptitud física de los insectos escama inciden en su distribución geográfica (Frank 2021). Así, la temperatura del follaje influyó significativamente en la presencia y abundancia de las familias de insectos escama en Yucca spp. en el área de estudio.
La altitud y la pendiente tuvieron una relación inversa con la abundancia de insectos escama. En los sitios de muestreo había una variación en altitud, entre 2 170 y 2 220 msnm, aparentemente hubo preferencia por altitudes bajas dentro de este rango. Este patrón podría estar relacionado con la influencia que ejercieron el gradiente altitudinal, y algunos factores asociados (ambientales), sobre la diversidad y distribución espacio-temporal de insectos escama; tal como lo demostraron los estudios realizados por Zhao et al. (2023) y Ghimire et al. (2024) quienes evaluaron el efecto de los factores ambientales en el patrón de distribución espacial y la diversidad de insectos a lo largo de gradientes de altitudinales. De manera similar, la altitud pudo haber influenciado sobre fluctuaciones en la temperatura y humedad relativa en los sitios analizados, generando microclimas que favorecieron el desarrollo de este tipo de insectos. La tendencia observada podría ser explicada en parte, por la posible dispersión de insectos escama resultado de la interacción que establece con L. apiculatum, misma que según Rafael-Valdez et al. (2017) para el centro-norte de México incremento sus densidades en altitudes medias (relativamente menores) tal como lo señalan algunos autores (Hoey-Chamberlain et al. 2013, Lara et al. 2015), alrededor de 2 020 msnm; por lo que la altitud, pudo influir en la distribución de los insectos escama. En este sentido, las tendencias registradas coinciden parcialmente con lo reportado por Cruz Labana et al. (2014) y Hernández-Roldán et al. (2017) quienes mencionaron su presencia entre los 2 000 y 2 300 msnm, con terrenos planos (0-10% de pendiente), mismos que favorecieron hábitats óptimos para estos insectos (principalmente hormigas e indirectamente escama), coincidiendo con el rango de distribución del presente trabajo. Sin embargo, esta hipótesis necesita ser abordada en un trabajo adicional en el área de estudio.
Las tendencias reportadas en la presente investigación indicaron que las coberturas en el suelo por arbustivas, gramíneas y material leñoso tuvieron un efecto negativo significativo sobre la cantidad de insectos escama en las rosetas del follaje de palmas. Es decir, a medida que disminuyeron estos tipos de cobertura, la cantidad de dichos insectos incrementó. Cabe señalar que la variable de suelo desnudo no resultó significativa en el modelo, lo que sugiere que no es la ausencia total de cobertura lo que influyó directamente en la presencia de insectos, sino más bien, probablemente fueron las características específicas de la cobertura vegetal presente. Esto discrepa con lo reportado por Botton et al. (2010) quienes llevaron a cabo un trabajo del efecto de la cobertura vegetal sobre la presencia de Margarodidae en cultivos de vid, en el que encontraron una mayor infestación de Eurhizococcus brasiliensis (Hemíptera: Coccoidea) en las raíces de este cultivo, especialmente cuando las áreas fueron mantenidas sin cobertura vegetal adicional, esto se debió a que conforme disminuyó dichas cobertura, se incrementó el área disponible en las raíces para la fijación y desarrollo de la cochinilla; lo cual podría favorecer la dispersión de esta especie por parte de la hormiga argentina, Linepitema humile, lo que facilitaría su mayor movimiento para colonizar nuevas áreas tal como lo sugieren Lara et al. (2015) y Kakoti et al. (2023) para L. apiculatum; aunque no se ha documentado que esta disperse activamente a los insectos escama, sí se ha observado que interactúa con ellos, transportándolos y albergándolos en sus nidos, lo cual podría facilitar su establecimiento en las rosetas del follaje de palmas en el área de estudio; como lo mencionan Cruz Labana et al. (2014), Rafael-Valdez et al. (2017) y Rafael-Valdez et al. (2019) quienes registraron a L. apiculatum en plantas de Yucca spp. utilizándolas como sitios de forrajeo y anidación, en los que había presencia de insectos escama, incluso en regiones del mismo Altiplano. Estos patrones de cobertura vegetal son consistentes con las condiciones propias de zonas semiáridas, donde los niveles de dicha cobertura son limitados (Lara et al. 2015, Almalki et al. 2022).
Finalmente, con las tendencias registradas en este trabajo se puede sugerir que la distribución de los insectos escama en las rosetas del follaje de Yucca spp. está influenciada por una combinación compleja de variables bióticas y abióticas; dicha información puede ser utilizada para diseñar planes de manejo adecuados de las poblaciones de palma, hábitat de los insectos escama, y L. apiculatum, debido a que las estructuras vegetales de Yucca spp. tienen múltiples usos tradicionales, lo que ofrece oportunidades para su aprovechamiento, y manejo sostenible del hábitat por parte de los pobladores locales como lo evidenciaron Martínez-Betancourt et al. (2025) quienes realizaron en estudio sobre granulometría y propiedades funcionales en Yucca decipiens (Trel., 1907), en el que destacaron su potencial como alimento humano en la región del Altiplano. Por lo tanto, divulgar la relevancia de Yucca spp. como hábitat de insectos escama, sustrato forrajero-anidación para la hormiga escamolera, junto con los múltiples beneficios que provee, puede ser información y estímulo para convencer a los pobladores de que se implementen prácticas de manejo y aprovechamiento sostenibles de este conjunto de recursos, promoviendo al mismo tiempo la conservación de los ecosistemas locales y los servicios de regulación que mantienen.
Conclusiones
Este estudio proporciona los primeros registros de las familias de insectos escama: Pseudococcus sp. (Pseudococcidae), Coccus hesperidum (L. 1758; Coccidae) y Lindingaspis rossi (Maskell, 1892; Diaspididae) en rosetas del follaje de Yucca spp. en matorral xerófilo del municipio de Villa González Ortega, Zacatecas. La mayor probabilidad de ocurrencia en todos los estratos (superior, medio e inferior) de las hojas de palma fue para Pseudococcidae. No obstante, se registró a Pseudococcidae en el superior, Coccidae en el medio y Diaspididae en el inferior; sin que se encontraran diferencias estadísticamente significativas en la distribución vertical por familia, y en general de insectos escama entre estratos. Cabe resaltar que algunas variables (14) del hábitat y ambientales determinaron la presencia y distribución espacio-temporal de estos insectos sobre el follaje de plantas de palma en esta región particular del Altiplano Potosino-Zacatecano.

