


 nova página do texto(beta)
 Espanhol (pdf)
 Artigo em XML
 Referências do artigo

 Tradução automática
 Enviar este artigo por email
 Citado por SciELO
 Similares em
SciELO

 Permalink


Introducción
Los cefalópodos son componentes esenciales en las redes tróficas marinas, actuando como depredadores y presas de especies como cachalotes, túnidos y aves oceánicas. Su amplia distribución y presión pesquera contrastan con las dificultades para estudiarlos mediante muestreo directo (Alejo-Plata et al. 2014). En el Golfo de Tehuantepec se han registrado al menos 24 especies, incluyendo Lolliguncula panamensis, que participa activamente en cadenas alimenticias pelágicas y es capturada incidentalmente en la pesca de camarón. Aunque su aprovechamiento comercial es limitado, su inclusión en estudios parasitológicos es clave para evaluar riesgos sanitarios y definir estrategias de manejo (Alejo-Plata et al. 2014, León-Guzmán et al. 2020).
Los Apicomplexa Levine, 1970 son parásitos intracelulares cuyo nombre deriva del complejo de orgánulos apicales que facilitan la penetración de células hospederas (Ryan y Ray 2017). Entre ellos, la familia Aggregatidae Labbé, 1899 agrupa parásitos específicos de moluscos (Kristmundsson y Freeman 2018), destacando el género Aggregata Frenzel, 1885. Estos organismos presentan un ciclo de vida heteroxeno, con fases asexuales (merogonia) en crustáceos (hospederos intermediarios) y sexuales (gamogonia y esporogonia) en cefalópodos (hospederos definitivos) (Gestal et al. 2002a, 2005). De las 15 especies de Aggregata que infectan cefalópodos de importancia comercial (Castellanos-Martínez et al. 2019, Colunga -Ramírez et al. 2021, Ren et al. 2022, Wang et al. 2023, Colunga-Ramírez et al. 2025), se ha documentado que causan daños mecánicos (lesiones tisulares), bioquímicos (alteración enzimática digestiva) y moleculares (supresión inmune celular), como en el síndrome de mala absorción (Gestal et al. 2002b). Estos impactos subrayan la necesidad de estudiar su morfología y distribución.
En el Pacífico mexicano, los registros de Aggregata se limitan a Octopus bimaculatus (golfo de California) y casos aislados no caracterizados (Colunga-Ramírez et al. 2021, Colunga-Ramírez et al. 2025). Este vacío es particularmente relevante en especies de importancia pesquera como el calamar Lolliguncula panamensis Berry, 1911, distribuido desde México hasta Perú (16-65 m de profundidad; Sánchez, 2003). Considerado el loligínido más robusto del Pacífico oriental tropical (Arizmendi-Rodríguez et al. 2012), L. panamensis es explotado directa e incidentalmente en el golfo de Tehuantepec, principalmente en la pesca de camarón (León-Guzmán et al. 2020).
En el Golfo de Tehuantepec, la escasez de estudios parasitológicos ha limitado la evaluación sanitaria de especies como Lolliguncula panamensis. Aunque se ha documentado una alta diversidad de cefalópodos en la región, su interacción con parásitos como Aggregata permanece inexplorada, a pesar de los avances moleculares que han permitido redefinir especies y ciclos de vida en otros moluscos. Este estudio presenta la primera caracterización morfológica de Aggregata en L. panamensis, aportando evidencia inicial sobre su presencia y destacando la necesidad de complementar la identificación taxonómica con herramientas genéticas. Estos hallazgos ofrecen información clave para el manejo sanitario y la valorización comercial de la especie en contextos pesqueros regionales
Materiales y métodos
Obtención y procesamiento de muestras
Se utilizaron muestras de 21 ejemplares de L. panamensis (hembras en estadio III, capturadas en temporada de lluvias, agosto 2018), incluyendo: 10 láminas histológicas de intestino y ciego, 5 muestras congeladas y 6 muestras fijadas en formol al 10%. Se transportaron al Laboratorio de Genética para su preservación a 4°C., para su posterior análisis. Para cada individuo se registraron las dimensiones corporales básicas, incluyendo la longitud del manto dorsal (LMD) y el ancho del manto (AM), utilizando un vernier digital con precisión de 0.01 mm. Los datos se expresaron como promedio ± desviación estándar
Análisis macroscópico
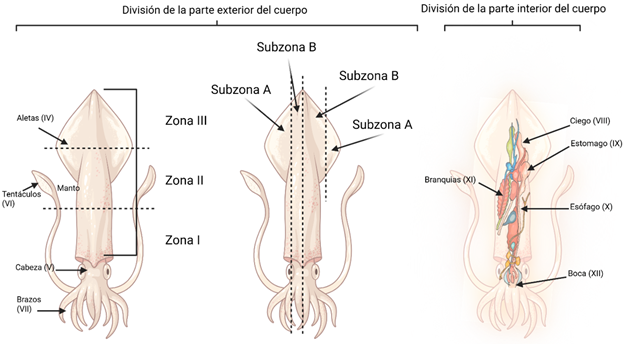
Se identificaron lesiones parasitarias mediante la búsqueda de nódulos blanquecinos iridiscentes (Castellanos-Martínez et al. 2013, Colunga-Ramírez et al. 2021), realizando un esquema de zonificación anatómica (Figura 1). Las zonas de estudio incluyeron: Manto: Dividido en tres regiones longitudinales (I: inferior, II: intermedio, III: superior) y dos subzonas transversales (A: orilla, B: centro), considerando además las aletas (zona IV) y la cabeza (zona V). Apéndices: Tentáculos (zona VI): evaluados en sus porciones derecha e izquierda, Brazos (zona VII): analizados en su región exterior. Órganos internos: Se examinaron específicamente: VIII. Ciego, IX. Estómago, X. Esófago, XI. Branquias, XII. Boca (con evaluación tanto externa como interna). Se midió la longitud de los nódulos blanquecinos iridiscentes usando estereoscopio digital Motic DM143 con un aumento de 20X, mientras que las mediciones morfométricas se realizaron utilizando el software ImageJ (versión 1.54f, National Institutes of Health, USA).
Análisis microscópico
Para caracterizar las fases parasitarias se empleó un microscopio Carl Zeiss Primo Star Hal Full-Kohler con un aumento de 100x cuantificando parámetros morfométricos clave: Gametogonia, Macrogametos: Diámetro (DaM, DbM), grosor parietal (GpM), Microgametos: Longitud (Lm), Esporogonia, Ooquistes: Diámetro (DaO, DbO), grosor parietal (GpO), Esporoquistes, Número (Nes), longitud (laE), grosor parietal (GpE), Esporozoítos: Longitud total (LTez), ancho apical/central (Aez).
Resultados y discusión
Los 21 individuos analizados de L. panamensis correspondieron a hembras en fase de desove, que presentaron las siguientes dimensiones corporales (intervalo de tallas): Longitud del manto dorsal: 66.16 ± 5.64 mm (rango: 28.7 - 88.2 mm), ancho del manto: 40.06 ± 3.22 mm (rango: 19.5 - 66.7 mm).
Descripción macroscópica
En las muestras frescas (n = 5) y fijadas en formol (n = 6) se identificaron nódulos blanquecinos iridiscentes con una longitud promedio de 0.39 ± 0.018 mm, oscilando entre 0.02 mm (mínimo) y 0.92 mm (máximo) (Figura 2).
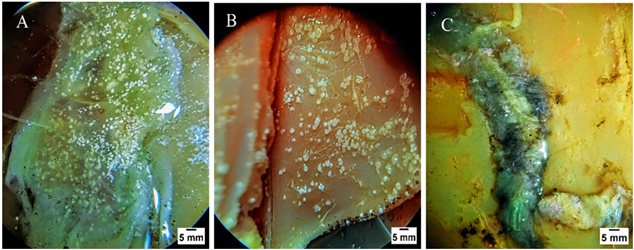
Figura 2 Localización macroscópica de los nódulos blanquecinos iridiscentes en las diferentes zonas de Lolliguncula panamensis. A) Zona VIII (ciego). B) Zona interior/ zona I/ subzona A y B (interior de las aletas). C) XI (estomago).
Los coccidios del género Aggregata son parásitos comunes en cefalópodos, con alta especificidad por su hospedero (Peñalver et al. 2008). En L. panamensis, los nódulos blanquecinos iridiscentes se localizaron no solo en el tracto digestivo, sino también en otros tejidos (Figura 2), sugiriendo un patrón de infección extraintestinal similar al reportado en A. octopiana y A. polibraxiona (Gestal 2000, Pascual et al. 2006). Esta característica podría indicar una infección avanzada, donde la colonización de órganos (ciego, estómago y esófago) habría inducido la dispersión del parásito hacia otros tejidos (Ibáñez et al. 2005).
La distribución y tamaño de los nódulos (0.02-0.92 mm) mostró variaciones significativas según la zona analizada. Los nódulos más grandes se localizaron en órganos digestivos (Figura 2), posiblemente debido a la mayor disponibilidad de nutrientes y tiempo de retención del alimento, condiciones óptimas para el desarrollo del parásito (Domíngues et al. 2004). En contraste, los nódulos más pequeños se encontraron en tentáculos y brazos, zonas con menor aporte nutricional. Estos hallazgos respaldan la hipótesis de que la capacidad de colonización y reproducción de Aggregata está directamente influenciada por las características del microhábitat (Ibáñez et al. 2005).
Descripción microscópica
El análisis histológico de cortes teñidos con hematoxilina-eosina y muestras frescas del ciego e intestino de L. panamensis reveló las distintas fases del ciclo reproductivo del parásito. Para la fase de gametogonia se identificaron dos tipos celulares característicos, 1) microgametos: Morfología ovalada (1.42 ± 0.06 µm de longitud; intervalo: 0.9-1.45 µm) con presencia de un único flagelo (Figura 3A); 2) macrogametos: células semiesféricas (9.82 µm de diámetro × 8.9 µm de ancho) con núcleo único, membrana definida y citoplasma de textura esponjosa (Figura 3B). Esporogonia. Se distinguieron dos estructuras clave: 1) Esporoquistes: De forma semiesférica (12.83 ± 0.43 µm de longitud; rango: 7.58-19.91 µm × 10.39 ± 0.42 µm de ancho; intervalo: 6.26-16.9 µm) con pared de 0.85 ± 0.08 µm de grosor (rango: 0.27-2.81 µm) (Figura 2 C-E). Cada esporoquiste albergaba dos esporozoítos. 2)Esporozoítos: Vermiformes (3.75 ± 0.15 µm de longitud; rango: 2.98-4.26 µm), con dimensiones variables, ancho central: 0.67 ± 0.04 µm (rango: 0.5-0.81 µm), ancho apical: 0.53 ± 0.04 µm (rango: 0.34-0.62 µm), ancho contra apical: 0.37 ± 0.04 µm (rango: 0.24-0.5 µm). Todos presentaban un núcleo apical único (Figura 3F).
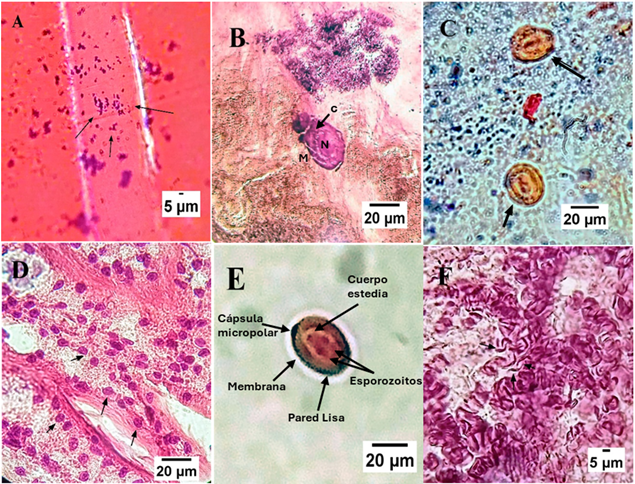
Figura 3 Descripción microscópica. A. Microgametos dispersos en el tejido (señalados con flechas). B. Macrogameto (M) mostrando un núcleo (N) y un citoplasma de aspecto esponjoso (C). C. Esporoquistes mostrando su pared lisa (señalado con flechas negras). D. Esporoquistes con 2 esporozoítos (señalados con flechas) E. Esporoquiste en fresco de Aggregata mostrando sus estructuras. F. Esporozoítos distribuidos en el tejido del calamar.
La identificación de Aggregata se basa en caracteres morfológicos como las fases de desarrollo y las dimensiones de estructuras clave (Gestal et al. 2005, Colunga-Ramírez et al. 2021). En este estudio, se observaron las siguientes características: Gametogonia, macrogametos: Forma ovoide (9.82 × 8.9 µm) con citoplasma esponjoso y núcleo único, coincidiendo con descripciones previas (Gestal et al. 2005). Microgametos: Uniciliados (1.42 ± 0.06 µm), a diferencia de los microgametos multinucleados de A. polibraxiona (Colunga-Ramírez et al. 2021). Esporogonia, esporoquistes: Ultraestructura lisa (7.58-19.91 µm de longitud; 6.26-16.9 µm de ancho) con una posible cápsula micropolar no descrita anteriormente (Figura 4). Esta estructura muestra similitudes con micrografías de A. andresi y A. polibraxiona (Gestal et al. 2000, Colunga-Ramírez et al. 2021). Esporozoítos: Vermiformes (2.98-4.26 µm), significativamente más pequeños que en otras especies del género y con solo dos individuos por esporoquiste (Figura 3).
Al comparar las características morfológicas de otras especies de Aggregata (Tabla 1) se observó que el parásito de L. panamensis difiere de otras especies de Aggregata en su menor número de esporozoítos por esporoquiste (2 vs. 3 -22) y tamaño reducido (2.98-4.26 µm), características que podrían reflejar adaptaciones a su hospedero específico (Tabla 1).
Tabla 1 Características de especies de Aggregata descritas en cefalópodos y comparadas con los datos obtenidos en este trabajo. Los datos no disponibles se indican con ND. Tabla obtenida y modificada de Castellanos-Martínez et al. (2019).
| Especie de Aggregata | Hospedero | Localidad | Esporoquistes | Esporozoitos | ||||
|---|---|---|---|---|---|---|---|---|
| Longitud µm | Ancho µm | Ultraestructura | Longitud µm | Núm. de trofozoítos | Referencias | |||
| sp | L. panamensis | Golfo de Tehuantepec | 7.58-19.91 | 6.26-16.9 | Lisa | 2.98-4.26 | 2 | Este trabajo |
| A. octopiana | Octopus vulgaris | Mediterráneo | 11-15 | 11-15 | Espinosa | 16-24 | 8 | Gestal et al. (1999) |
| A. octopiana | O. vulgaris | Mar Mediterráneo | 15-18 | 15-18 | Espinosa | ND | 8 | Tedesco et al. (2017) |
| A. octopiana | O. vulgaris | Mar Adriático | 11-13 | 11-13 | Lisa | ND | 8 | Tedesco et al. (2017) |
| A. octopiana | O. vulgaris | Mar Jónico | 10-12 | 10-12 | Espinosa/Lisa | ND | 8 | Tedesco et al. (2017) |
| A. sp | O. vulgaris | Mar Adriático Mediterráneo | ND | ND | ND | ND | 4-5.8 | Mladineo y Bocina (2007) |
| Mladineo y Joczic (2005) | ||||||||
| A. eberthi | Sepia officinalis | Atlántico noroeste y oeste | 8-9 | ND | Lisa | 15-17 | 3 | Gestal et al. (2002a)) |
| A. dobelli | Enteroctopus dofleini | Océano Pacífico | 18-31 | 15-27 | Lisa | 18-23 | 9-22 | Poynton et al. (1992) |
| A. millerorum | O. bimaculoides | Océano Pacífico noroeste | 12-20 | 11-17 | Lisa | 18-31 | 8-10 | Poynton et al. (1992) |
| A. patagonica | Enteroctopus megalocyatus | suroeste Atlántico | 13 | 12 | Lisa | 18 | 8 | Sardella et al. (2000) |
| A. valdesensis | O. tehuelchus | suroeste Atlántico | 10 | 10 | ND | 17 | 4-8 | Sardella et al. (2000) |
| A. bathyterma | Vulcanoctopus hidrothermalis | Pacífico noroeste | 27-32 | 24-32 | Lisa | 49 | 14-17 | Gestal et al. (2010) |
| A. sagittata | Todarodes sagittatus | noroeste Atlántico | 16-18 | 15-17 | Lisa | 11-13 | 4-8 | Gestal et al. (2000) |
| A. andresi | Martialina hyadesi | sudoeste Atlántico | 9.5-10 | 8-8.5 | Lisa | 16-20 | 3 | Gestal et al. (2005) |
| A. kudoi | Sepia elliptica | noroeste de la India | 9.4 -14.5 | ND | Lisa | 16-18 | 6-12 | Narasimhamurti (1979) |
| A. polibraxiona | Octopus bimaculatus | Golfo de California, México | 12-24 | 11-22 | Espinosa | 16-26 | 11-13 | Colunga -Ramírez et al. (2021) |
| A. sinensis | Amphioctopus. fangsiao | Océano Pacifico Occidental | 20.6 | 20.3 | Espinosa | 22.8 | 4-18 | Ren y Zheng (2021) |
| Octopus minor | Océano Pacifico Occidental | 20.9 | 20.3 | 21.7 | 3-16 | Ren y Zheng (2021) | ||
| A. sinensis n. sp | Amphioctopus fangsiao | Océano Pacifico Occidental | 20.61 | 20.31 | Lisa | 22.77 | 7-18 | Ren et al. (2021) |
| A. sinensis n. sp | Octopus minor | Océano Pacifico Occidental | 20.90 | 20.26 | Lisa | 21.72 | 5-16 | Ren et al. (2021) |
| A. aspera n. sp | Amphioctopus ovulum | Océano Pacifico Occidental | 17.4 | 16.6 | Espinosa | 15.1 | 12-15 | Wang et al. (2023) |
| A. aspera n. sp | Amphioctopus marginatus | Océano Pacifico Occidental | 17.4 | 16.8 | 14.2 | 12-16 | Wang et al. (2023) | |
| A. sp | O. bimaculatus | Ensenada Baja California, Mexico | 10-18 | 11-17 | Espinosa | 11-18 | 11 | Colunga-Ramírez et al. (2025) |
El parasitismo por Aggregata spp. en Lolliguncula panamensis revela dinámicas ecológicas clave en los ecosistemas tropicales del Pacífico mexicano. En primer lugar, la alta prevalencia observada (100% en las muestras analizadas) sugiere una relación hospedero-específica (Castellanos-Martínez et al. 2019, Colunga -Ramírez et al. 2021, Ren et al. 2022, Wang et al. 2023, Colunga-Ramírez et al. 2025), posiblemente influenciada por las condiciones oceanográficas del Golfo de Tehuantepec y por la presión pesquera que reduce la diversidad de hospederos alternativos. En segundo lugar, la presencia simultánea de todas las fases reproductivas del parásito en hembras desovantes podría indicar una sincronización con la estacionalidad reproductiva del hospedero, fenómeno previamente documentado en otros Apicomplexa de zonas tropicales. En tercer lugar, la infección por Aggregata podría funcionar como un bioindicador de estrés ecosistémico, vinculado a cambios en la disponibilidad de hospederos intermediarios por efectos de la variabilidad climática o la sobrepesca.
Los hallazgos morfológicos obtenidos en este estudio confirman la presencia de Aggregata spp. en L. panamensis del Golfo de Tehuantepec, aportando evidencia preliminar sobre su distribución y características estructurales. La descripción detallada de los nódulos y formas parasitarias, junto con la comparación con literatura reciente, permite situar este trabajo dentro del marco actual de la parasitología marina. Aunque las determinaciones taxonómicas se basaron en morfología, se reconoce que esta aproximación presenta limitaciones frente a la plasticidad fenotípica del parásito. Por ello, se destaca la necesidad de complementar estos hallazgos con herramientas genéticas, particularmente mediante la secuenciación del gen 18S rRNA, lo que permitiría confirmar la identidad taxonómica de Aggregata, establecer relaciones filogenéticas confiables y fortalecer su uso como indicador ecológico en evaluaciones de salud de ecosistemas marinos tropicales. En conjunto, estos resultados contribuyen al conocimiento de las interacciones hospedero-parásito en cefalópodos y ofrecen una base para evaluar posibles implicaciones ecológicas y sanitarias en el manejo pesquero de la región.

