


 texto en
 Inglés (pdf)
 Artículo en XML
 Referencias del artículo

 Traducción automática
 Enviar artículo por email
 Citado por SciELO
 Similares en
SciELO

 Permalink

Introducción
Swietenia macrophylla King, conocida como caoba, es un árbol monoico perteneciente a la familia Meliaceae, llega a medir hasta 60 m de altura (Bakewell-Stone, 2023; Ochoa-Gaona et al., 2008; Pennington, 2002). Se distribuye naturalmente en América Tropical, desde la Península de Yucatán en México, hasta la Amazonia de Brasil, Perú y Bolivia. Porta una copa estrecha que mantiene sus hojas la mayor parte de la estación seca, lo que favorece combinarla con cultivos como el café, cacao, vainilla y pastizales (Corea-Arias et al., 2020; de Souza-Schottz et al., 2007; Maruyama et al., 1997).
Es una especie forestal muy valorada por su madera de alta calidad, dura y resistente. Su importancia económica convierte a la caoba en la especie más relevante entre las nativas de Latinoamérica (Campos-Ruiz et al., 2020). Según el estudio del Estado de la Conservación de Plantas en Costa Rica (Estrada, 2005), se ubica en la categoría de peligro crítico y está incluida en el Apéndice II de la Convención sobre el Comercio Internacional de Especies Amenazadas de Fauna y Flora Silvestres (Cites), debido al elevado índice de explotación maderable, ocasionado por su intensa extracción durante décadas (Convención sobre el Comercio Internacional de Especies Amenazadas de Fauna y Flora Silvestres [Cites], 2017; Rojas-Vargas & Hine-Gómez, 2019).
Por otro lado, al tratarse de una especie cuyas semillas pierden viabilidad en poco tiempo, presenta baja germinación (de 10 a 70 %), lo que reduce su propagación sexual (Quinto et al., 2009; Sampayo-Maldonado et al., 2021). Además, la falta de ensayos de selección basados en características fenotípicas y genotípicas deriva en plantaciones muy heterogéneas (Prado et al., 2010).
El uso de las técnicas de cultivo in vitro en los programas de reforestación es una alternativa viable para la producción de planta y la conservación de la especie, lo que puede reducir la presión de deforestación, ya que, en principio, permite aumentar de manera rápida la propagación de individuos élite y de material vegetal genéticamente estable a partir de segmentos nodales (Delgado et al., 2008; Uribe et al., 2008).
Son diversos los protocolos con los cuales se ha evaluado la multiplicación in vitro de caoba mediante organogénesis directa. Tacoronte et al. (2004) refieren la mayor estimulación del crecimiento longitudinal con vástagos de caoba de 25 mm al emplear medio Murashige y Skoog (MS) modificado y suplementado con 2.56 mg L-1 de 6-bencilaminopurina (BAP) y 0.44 mg L-1 de ácido naftalenacético (ANA). Por su parte, Collado et al. (2004), al trabajar con diferentes concentraciones de BAP en el mismo medio, señalan que los valores de longitud de brote incrementaron según disminuyó o se eliminó la concentración de dicho regulador de crecimiento. En contraste, Carranza-Patiño et al. (2013) no obtuvieron diferencias significativas en la longitud de brote al evaluar distintas combinaciones de BAP y ácido indol-3-butírico (AIB), también en medio MS modificado.
En investigaciones posteriores, se han empleado otros medios de cultivo y combinaciones hormonales que han mostrado efectos diferenciados en la longitud de los brotes. Campos-Ruiz et al. (2020) detectaron que el uso de 1 mg L-1 de BAP en medio Woody Plant Medium (WPM) favoreció la formación de brotes más largos, que alcanzaron los 8 mm. Mona (2012) obtuvo la mayor longitud de brote (39 mm) al utilizar medio MS suplementado con 2 g L-1 de carbón activado (CA), 4 mg L-1 de BAP y 0.4 mg L-1 de 2ip (6-γ-γ dimetil-1-alilaminopurina).
Debido a las dificultades de propagación sexual de S. macrophylla, su gran valor económico, su alta extracción maderable y su inclusión en el Apéndice II del Cites, resulta prioritario desarrollar estrategias eficientes que contribuyan a su conservación. A diferencia de investigaciones previas que han centrado sus esfuerzos en la generación de brotes, a partir de distintas concentraciones de BAP o combinaciones hormonales; este estudio plantea una comparación directa entre los medios MS y WPM con una dosis de 2 mg L-1 de BAP sobre las variables longitud de brote y número de nudos, como estrategia reproducible para facilitar la multiplicación de plantas de caoba mediante técnicas de cultivo in vitro, vía organogénesis directa, con fines de conservación y mejoramiento.
Materiales y Métodos
El material vegetal inicial consistió en 90 semillas de una muestra compuesta de 15 árboles de S. macrophylla, recolectadas en el ejido Triunfo de Madero, municipio Cintalapa, Chiapas. La preparación del material, así como el experimento, se realizaron en el Laboratorio de Biotecnología Forestal del Centro Nacional de Investigación Disciplinaria en Conservación y Mejoramiento de Ecosistemas Forestales, ubicado en la alcaldía Coyoacán, Ciudad de México, del 19 de abril al 17 de octubre del 2024.
Las semillas fueron desprovistas de la testa y embebidas en agua estéril durante 24 horas. Posteriormente, se sometieron a un proceso de desinfección bajo condiciones asépticas en una campana de flujo laminar, que consistió en lavado con jabón líquido comercial Cascade ® (5 mL L-1) durante 5 minutos, inmersión en peróxido de hidrógeno Merk ® al 50 % durante 10 minutos y, finalmente, en hipoclorito de sodio comercial Cloralex ® al 30 % (v/v) durante 30 minutos. Después de cada paso, se realizaron enjuagues continuos con agua esterilizada.
Germinación en condiciones asépticas. Se sembraron las 90 semillas en tubos de vidrio de fondo plano de 100×10 mm, una semilla en cada tubo, los cuales contenían 7 mL de medio MS suplementado con 1 mL L-1 de Plant Preservative Mixture (PPM, PhytoTech Labs ®), 8.5 g L-1 de agar y 30 g L-1 de sacarosa, a un pH de 5.7; los tubos fueron sellados con tapas plásticas y cinta parafilm; se llevaron al cuarto de incubación en condiciones controladas de temperatura (25 °C), intensidad lumínica de 50 µmol m-2 s-1 y con un fotoperiodo de 16 horas de luz.
Inducción de brotes. Después de 66 días de cultivo, las plántulas se seccionaron en segmentos nodales de 1 a 1.5 cm, los cuales se subcultivaron bajo un diseño de arreglo factorial 2×2: en el factor 1 “medio de cultivo” se consideraron los niveles MS y WPM, mientras que en el factor 2 “concentración de BAP” se incluyeron los niveles 0 mg L-1 (testigo) y 2 mg L-1; este último, determinado por los autores en una fase experimental previa. Por lo tanto, el número de tratamientos resultante fue de cuatro (Cuadro 1). La unidad experimental correspondió a un tubo con un explante; en total, el experimento consistió de 62 tubos, debido a que el número de repeticiones fue diferente en cada tratamiento.
Cuadro 1 Descripción de factores y niveles.
| Factor 1 | Factor 2 | Tratamiento |
|---|---|---|
| MS | 0 | MS0 |
| MS | 2 | MS2 |
| WPM | 0 | WP0 |
| WPM | 2 | WP2 |
MS = Murashige y Skoog; WPM = Woody Plant Medium.
Crecimiento de los brotes. Los explantes se cultivaron durante 66 días, tiempo en el que el brote llegó al tope del tubo de ensaye, bajo las condiciones previamente mencionadas. Después de este tiempo, en cada unidad experimental se evaluaron las siguientes variables: longitud de brote, medido con calibrador vernier digital Steren ® modelo HER-441 con resolución de 0.2 mm; y el número de nudos, contados a partir de la base del brote. Los datos correspondientes fueron analizados mediante un Modelo Lineal Generalizado considerando una distribución Lognormal y una función de enlace identidad, el cual conforme a Gbur et al. (2012) y Stroup (2015), presenta el siguiente predictor:
Donde:
El análisis de los datos, incluida la modelación de los residuales, se llevó a cabo mediante PROC GLIMMIX del Software Sistema de Análisis Estadístico (SAS), versión 9.4 (SAS Institute Inc., 2025). El tipo de variable y su distribución probabilística empírica (asimetría a la derecha) permitieron determinar el modelo estadístico en cada caso; además, en estas condiciones, la normalidad y el supuesto de varianzas constantes no se justifican.
Resultados
Longitud de brote
Los brotes formados en los tratamientos MS0, WP2 y MS2 alcanzaron longitudes medias de 13.85, 13.35 y 12.50 mm, respectivamente; en tanto que, WP0 apenas superó los 5.60 mm (Figura 1). Se observó que la mayor variabilidad (respecto a la media) se presentó en MS2, con un Coeficiente de variación mayor a 85 %; mientras que WP2 se aproximó solo a 50 %. Los otros tratamientos tuvieron coeficientes de variación entre estos extremos (Cuadro 2).
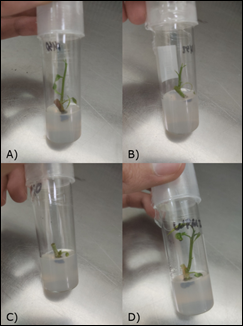
A = MS0; B = MS2; C = WP0; D = WP2.
Figura 1 Unidad experimental por tratamiento para longitud de brote y número de nudos a los 66 días.
Cuadro 2 Estadísticos descriptivos para la variable longitud de brote.
| Tratamiento | Media (mm) |
Desviación estándar (mm) |
Coeficiente de variación (%) |
|---|---|---|---|
| MS0 | 13.8500 | 8.3218 | 60.0850 |
| MS2 | 12.5045 | 10.7079 | 85.6322 |
| WP0 | 5.6333 | 3.9456 | 70.0397 |
| WP2 | 13.3474 | 6.6456 | 49.7894 |
En tres tratamientos, el segmento superior al intervalo intercuartílico resultó significativamente mayor que el inferior. De manera particular, la variabilidad de WP0, reflejada en su desviación estándar, fue bastante reducida respecto al resto de los tratamientos (Figura 2A). Incluso, en este caso, se advierten valores extremos. Así pues, ni la normalidad ni la homogeneidad de varianzas quedan justificadas.
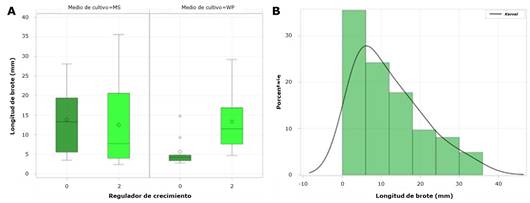
A = Variabilidad por tratamiento; B = Distribución empírica de longitud de brote.
Figura 2 Dispersión y distribución de la longitud de brotes.
Se identificó que el modelo probabilístico más apropiado consiste en una distribución Lognormal con valor AICC (Criterio de Información de Akaike Corregido) de 149.49; valor que corresponde al más bajo en comparación con otras distribuciones continuas asimétricas de la familia exponencial. La longitud del brote se caracterizó por un histograma asimétrico sesgado hacia la derecha, lo cual coincidió con el comportamiento de la distribución Lognormal (Figura 2B).
Bajo el modelo estadístico postulado y con nivel de significancia de 0.05, el ANOVA mostró que los efectos principales de los factores “medio de cultivo” y “concentración de BAP” no fueron significativos. Sin embargo, la interacción entre ambos factores fue altamente significativa (F=8.76, p-value=0.0045) (Cuadro 3). De hecho, mientras en MS la media desciende al pasar de la concentración 0 a la 2, en WP sucede lo contrario (Figura 3A).
Cuadro 3 Análisis de varianza para longitud de brote (modelo Lognormal).
| Factores | Valor F | Pr>F |
|---|---|---|
| Medio | 1.76 | 0.1904 |
| Regulador | 2.58 | 0.1134 |
| Medi×Regu | 8.76 | 0.0045 |
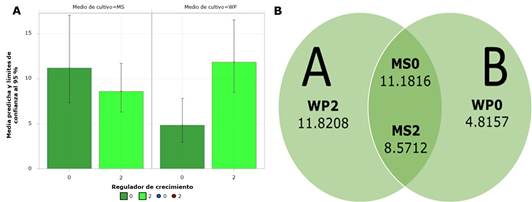
A = Medias predichas e intervalos de confianza al 95 % (mm); B = Diagrama de Venn para la agrupación de tratamientos por Tukey-Kramer.
Figura 3 Predicciones y comparación de medias con base en el Modelo Lineal Generalizado para la variable longitud de brotes.
Las medias predichas por el modelo, excepto en MS2, incluyen a las medias observadas. Esta situación puede deberse a la alta variabilidad (Cuadros 2 y 4). Entre los cuatro tratamientos, WP2 destacó con una media estimada superior (11.82 mm), seguido de MS0 (11.18 mm), mientras que el valor más bajo se registró en WP0 (4.82 mm).
Cuadro 4 Medias estimadas y Límites de Confianza (intervalos de confianza al 95 %) para longitud de brote (mm).
| Tratamiento | Media predicha |
Error estándar |
GL* | Media inferior predicha |
Media superior predicha |
|---|---|---|---|---|---|
| MS0 | 11.1816 | 1.2336 | 58 | 7.3460 | 17.0199 |
| MS2 | 8.5712 | 1.1677 | 58 | 6.2848 | 11.6894 |
| WP0 | 4.8157 | 1.2742 | 58 | 2.9647 | 7.8224 |
| WP2 | 11.8208 | 1.1815 | 58 | 8.4654 | 16.5061 |
*Grados de Libertad: total de observaciones de los cuatro tratamientos menos el número de parámetros estimados del modelo incluyendo el intercepto, es decir, 62-4=58. El total de 62 surge de considerar el número de observaciones de los tratamientos: MS0=12, MS2=22, WP0=9, WP2=19.
La prueba de comparación múltiple de Tukey-Kramer (α=0.05) identificó dos grupos generales no disjuntos (Cuadro 5). El primer grupo (A) se conformó por los tratamientos WP2, MS0 y MS2, mientras que el segundo grupo (B) lo integraron MS0, MS2 y WP0; en consecuencia, WP2 y WP0 resultaron estadísticamente diferentes (Figura 2B).
Cuadro 5 Comparación de tratamientos Tukey-Kramer para longitud de brote (mm).
| Tratamiento | Media predicha |
Grupo | |
|---|---|---|---|
| WP2 | 11.8208 | A | |
| MS0 | 11.1816 | B | A |
| MS2 | 8.5712 | B | A |
| WP0 | 4.8157 | B | |
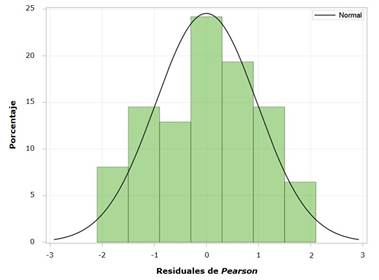
El análisis de normalidad de los residuales de Pearson, considerando los estadísticos de Kolmogorov-Smirnov y Cramer-von Mises, indicó que estos tienen una distribución normal (media 0 y desviación estándar de 0.9751). En ambos casos, el valor de p fue superior a 0.05. Asimismo, el histograma de los residuales, resultante del modelo estadístico postulado, fue simétrico (Figura 4).
Número de nudos
Para la variable número de nudos, el tratamiento MS0 registró un valor más alto de la media (4.08 nudos), mientras que WP0, la más baja (1.67 nudos) (Figura 1). La variabilidad más destacada se observó en WP0 con un CV de 79.37 % y la más baja en WP2 (39.86 %) (Cuadro 6). En este caso MS2, respecto a la variabilidad, quedó en segundo lugar; WP2 registró un Coeficiente de variación de casi 40 %.
Cuadro 6 Estadísticos descriptivos para la variable número de nudos.
| Tratamiento | Media (mm) |
Desviación estándar (mm) |
Coeficiente de variación (%) |
|---|---|---|---|
| MS0 | 4.0833 | 2.2344 | 54.7193 |
| MS2 | 3.7273 | 2.6936 | 72.2670 |
| WP0 | 1.6667 | 1.3229 | 79.3725 |
| WP2 | 3.5789 | 1.4266 | 39.8599 |
En la Figura 5A se aprecia que WP0 presenta valores concentrados por debajo de 1, con atípicos hacia 4 nudos. Los tratamientos MS0 y MS2 tuvieron un intervalo intercuartílico (IQR) de 4 y 6, respectivamente; para WP2 fue de 2. Al tratarse de una variable con distribución asimétrica, el modelo más apropiado resultó ser también el Lognormal con un valor de AICC de 266.68 (Figura 5B).
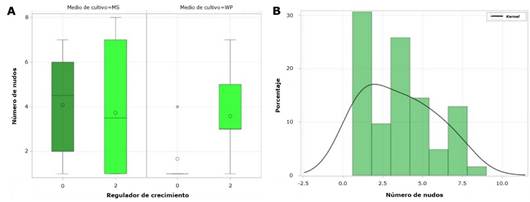
A = Variabilidad por tratamiento; B = Distribución empírica.
Figura 5 Dispersión y distribución del número de nudos.
El análisis estadístico muestra que los factores principales no tuvieron efectos significativos. Sin embargo, la interacción entre medio de cultivo y la concentración de BAP fue significativa con un nivel de confianza de 5 % (F=8.52, p-value=0.0050) (Cuadro 7).
Cuadro 7 Análisis de varianza para número de nudos (modelo Lognormal).
| Factores | Valor F | Pr>F |
|---|---|---|
| Medio | 3.35 | 0.0722 |
| Regulador | 2.90 | 0.0938 |
| Medi×Regu | 8.52 | 0.0050 |
Las medias predichas por tratamiento se muestran en el Cuadro 8. MS0 y WP2 destacan por presentar medias superiores a 3 nudos y MS2 con un valor mayor a 2.5; en tanto que WP0 no alcanzó los 1.5 (Figura 6A). Con estos hallazgos, queda evidenciado que cuando WP0 no considera regulador de crecimiento, el número de nudos también se ve afectado.
Cuadro 8 Medias estimadas y límites de confianza (intervalos de confianza al 95 %) para número de nudos.
| Tratamiento | Media predicha |
Error estándar |
GL* | Media inferior predicha |
Media superior predicha |
|---|---|---|---|---|---|
| MS0 | 3.3662 | 1.2257 | 58 | 2.2397 | 5.0593 |
| MS2 | 2.6702 | 1.1622 | 58 | 1.9763 | 3.6077 |
| WP0 | 1.3608 | 1.2650 | 58 | 0.8501 | 2.1783 |
| WP2 | 3.2853 | 1.1756 | 58 | 2.3766 | 4.5416 |
*Grados de Libertad: total de observaciones de los cuatro tratamientos menos el número de parámetros estimados del modelo incluyendo el intercepto, es decir, 62-4=58. El total de 62 surge de considerar el número de observaciones de los tratamientos: MS0=12, MS2=22, WP0=9, WP2=19.
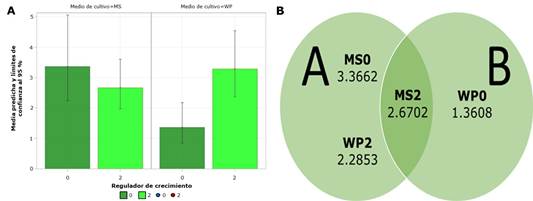
A = Medias predichas e intervalos de confianza al 95 %; B = Diagrama de Venn para la agrupación de tratamientos por Tukey-Kramer.
Figura 6 Predicciones y comparación de medias con base en el Modelo Lineal Generalizado para la variable número de nudos.
El análisis de comparación múltiple mediante Tukey-Kramer (α=0.05) mostró 2 grupos diferenciados de manera significativa (Cuadro 9). MS0 y WP2 forman el grupo A, mientras que WP0 pertenece al grupo B. El tratamiento MS2 está en ambos grupos (Figura 6B).
Cuadro 9 Comparación de tratamientos Tukey-Kramer para número de nudos.
| Tratamiento | Media predicha |
Grupo | |
|---|---|---|---|
| MS0 | 3.3662 | A | |
| WP2 | 3.2853 | A | |
| MS2 | 2.6702 | B | A |
| WP0 | 1.3608 | B | |
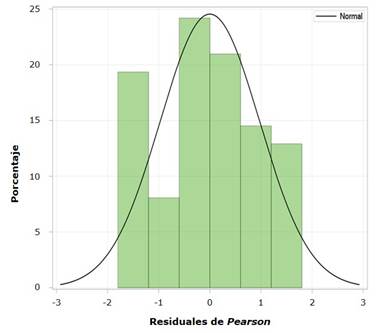
Bajo el modelo estadístico considerado, la distribución de los residuales tiende a la normalidad, con una media de 0 y una desviación estándar de 0.9751; de esta manera, el valor de p del estadístico de Kolmogorov-Smirnov fue de 0.034, y el correspondiente a Cramer-von Mises superó el 0.05 (0.074) (Figura 7).
Discusión
En contraste con investigaciones previas que han centrado sus esfuerzos en la generación de brotes, este estudio enfoca los resultados en las variables longitud de brote y número de nudos, ya que los nudos constituyen una fuente de tejido meristemático (Akin-Idowu et al., 2009), lo cual permite conservar explantes a mediano y largo plazo. Esta característica es clave para establecer y mantener un programa de multiplicación in vitro. Además, cada nudo representa un brote potencial capaz de generar una nueva planta, lo que posibilita una multiplicación de tipo exponencial (Putri et al., 2022), más allá del enfoque tradicional centrado únicamente en la producción de brotes.
Los resultados evidencian diferencias claras entre el medio WPM con 0 mg L-1 y 2 mg L-1 de BAP, tanto en la longitud de brote como en el número de nudos; la concentración de 2 mg L-1 es la que genera valores superiores en ambas variables. Al respecto, Collado et al. (2004) y Mona (2012) coinciden en que las citoquininas, como el BAP, ejercen efectos fisiológicos relevantes al influir en la división y el aumento celular. Estos hallazgos refuerzan la importancia del medio de cultivo y del uso adecuado de citoquininas en el crecimiento de brotes, tal como lo señalan Campos-Ruiz et al. (2020), quienes destacan que la organogénesis es el resultado de la interacción entre el material vegetal (explante), el medio de cultivo y las fitohormonas que desempeñan el papel principal.
En el medio MS, la longitud de brote y la cantidad de nudos disminuyen al aumentar la concentración de BAP de 0 a 2 mg L-1, lo cual coincide con lo citado por Collado et al. (2004), quienes observaron un incremento en la longitud de brote a medida que se reducía o eliminaba la concentración de BAP. De manera contraria, Mona (2012) registró mayor longitud de brote (28 mm) con 2 mg L-1 de BAP; sin embargo, los brotes presentaron hiperhidricidad.
En el presente trabajo, el medio MS, incluso en ausencia de BAP, promovió más número de nudos y un mayor alargamiento de los brotes en comparación con el medio WPM sin reguladores de crecimiento. Cabe destacar que el medio MS presenta una mayor concentración de nitratos (
De igual forma, las diferencias observadas entre tratamientos podrían relacionarse con la interacción entre la absorción de iones y los niveles de citoquininas endógenas. En este contexto, la absorción de iones compuestos por nitrógeno, fósforo y potasio influyen directamente en el metabolismo hormonal de la planta, lo cual indica que las citoquininas endógenas no actúan de manera aislada, sino que su efecto está modulado por el entorno nutricional del medio de cultivo (de Souza-Schottz et al., 2007; Ramage & Williams, 2002).
Finalmente, Madrigal-Villalobos et al. (2025) señalan que los métodos de propagación in vitro para caoba han sido prometedores; por lo que la superación de desafíos como las bajas tasas de regeneración y la optimización de las formulaciones de los medios son cruciales para avanzar en aplicaciones comerciales y de conservación.
Conclusiones
El presente estudio sienta un precedente para multiplicar in vitro a partir de nudos (yemas axilares) en medio MS sin reguladores de crecimiento en caoba (S. macrophylla) con una tasa de multiplicación de 4.08 (yemas por tallo), fuera del enfoque tradicional de generación de brotes, como una estrategia reproducible mediante técnicas de cultivo in vitro. Esta aproximación contribuye al desarrollo de protocolos eficientes que favorezcan la propagación y conservación de la especie, minimizando el riesgo de variación somaclonal por efecto del uso de reguladores de crecimiento.

