SciELO - Scientific Electronic Library Online

 
vol.28Levaduras de ambientes extremos: adaptaciones de supervivientes invisiblesContaminación de agua por fármacos: humedales construidos como alternativa de tratamiento en zonas áridas índice de autoresíndice de assuntospesquisa de artigos
Home Pagelista alfabética de periódicos  

Serviços Personalizados

Journal

Artigo

Indicadores

Links relacionados

  • Não possue artigos similaresSimilares em SciELO

Compartilhar


TIP. Revista especializada en ciencias químico-biológicas

versão impressa ISSN 1405-888X

TIP vol.28  Ciudad de México  2025  Epub 30-Abr-2026

https://doi.org/10.22201/fesz.23958723e.2025.744 

Artículos de revisión

Las bacterias y sus orgánulos, una perspectiva histórica

Bacteria and their organelles, a historical perspective

Eduardo Valencia-Cantero1 

1 Laboratorio de Ecología Microbiana, Instituto de Investigaciones Químico Biológicas, Universidad Michoacana de San Nicolás de Hidalgo, Ciudad Universitaria, Morelia C.P. 58130, Michoacán, México. E-mail: eduardo.cantero@umich.mx


Resumen

Las bacterias son microorganismos difíciles de observar por técnicas convencionales, por lo que un estudio detallado de su interior, sólo es posible a través del microscopio electrónico. Definir a las bacterias en términos morfológicos también es complicado, de allí que su definición“clásica”que las conceptualiza como organismos celulares que carecen de membranas internas, si bien es incorrecta, sigue siendo muy aceptada entre los no especialistas, no obstante las bacterias tienen decenas de tipos de orgánulos, que son estructuras subcelulares, delimitadas por membranas biológicas con proteomas característicos y una peculiar fisiología. En esta breve revisión, desde una perspectiva histórica, se hace referencia a los primeros orgánulos descritos, en especial a los relacionados con los procesos de obtención de energía y fijación de carbono de las bacterias fotótrofas y de las quimiótrofas; (estos son: los cromatóforos, tilacoides, clorosomas, carboxisomas, anammoxosomas y las vacuolas energéticas), los que llevan a cabo la magnetotaxis (magnetosomas), los que concentran la mayor parte de la actividad celular (pirellulosomas) y que pueden, incluso, por la función que en su conjunto realizan, revolucionar el concepto que se tiene de las bacterias (pepins).

Palabras clave: definición de bacteria; compartimento celular bacteriano; orgánulos fototróficos; vacuolas bacterianas; pepins

Abstract

Bacteria are tiny organisms that are difficult to observe using conventional techniques and whose interior cannot be studied using an optical microscope. Defining bacteria in simple morphological terms is a difficult task; hence, the “classical” definition of bacteria as cellular organisms lacking internal membranes, although incorrect, remains widely accepted. Bacteria have dozens of types of organelles, understood as subcellular structures, delimited by biological membranes with proteomes and physiologies that characterize them. In this mini-review from a historical perspective, the first organelles described are emphasized, focusing on those related to the processes of obtaining energy and carbon fixation in phototrophic and chemotrophic bacteria (chromatophores, thylakoids, chlorosomes, carboxysomes, anammoxosomes and energy vacuoles), on those that allow magnetotaxis (magnetosomes), and on those that concentrate most of the cellular activity in the organisms that possess them (pirellulosomes) and that can even revolutionize the conception we have of bacteria (pepins).

Keywords: definition of bacteria; bacterial cell compartmentalization; phototrophic organelles; bacterial vacuoles; pepins

Introducción

La definición de bacteria es en general elusiva. La primera evidencia de la existencia de estos microorganismos fue registrada por Antonie Van Leeuwenhoek en 1676, quien dejó prueba documental de sus observaciones sobre los que llamó“animáculos”, realizadas en microscopios rudimentarios queél mismo construyó (Porter, 1976).

Otto Friedrich Müller en su libro “Animalcula infusoria fluviatilia et marina”, de 1786, propuso 18 géneros de “animáculos”, entre ellos a los géneros “Monas” y “Vibrio” que contenían indistintamente bacterias y protozoarios (Drews, 2000; Guerrero, 2001). Christian G. Ehrenberg en “Infusionsthierchen als vollkommene Organismen” describe a los géneros Monas, Bacterium, Vibrio, Spirillum y Spirochaeta (Ehrenberg, 1838). Sin embargo, fue Ferdinand Cohn quien en su obra de 1872 “Untersuchungen über Bacterien” (Investigaciones sobre bacterias) amplía el término bacteria auna categoría taxonómica mayor (Osorio, 2017), al proponer los taxas Sphaerobacteria (con forma esférica), Microbacteria (forma de bastón), Desmobacteria (bacterias filamentosas) y Espirobacteria (forma de tornillo), (Drews, 2000).

Cohn, definió a las bacterias como organismos con células en su mayoría no pigmentadas, con formas características, que se multiplican por división cruzada (binaria) y que viven como células individuales, cadenas celulares filamentosas oagregados celulares; con una membrana plasmática y, a veces, gránulos refringentes. Cohn, incluyó a las bacterias en el reino de las plantas junto con las Schizophyceae (hoy Cyanophyceae), (Drews, 2000). Hasta aquí, aún la naturaleza de las bacterias era ambigua.

Roger Yate Stanier y Cornelius Bernardus van Niel (1962) inician su icónico trabajo,“The Concept of a Bacterium” (El concepto de una bacteria), con la declaración

“Cualquier buen biólogo encuentra intelectualmente angustioso dedicar su vida al estudio de un grupo que no puede definirse fácil y satisfactoriamente en términos biológicos…”

Sin embargo, hacen las siguientes aseveraciones:

“En la célula eucariota, ciertas estructuras más pequeñas, que albergan subunidades de función celular, están rodeadas por membranas individuales, que interponen una barrera entre ellas y otras regiones internas de la célula. En la célula procariota, no existe una separación estructural equivalente de las principales subunidades defuncióncelular; la membrana citoplasmática en sí es el único elemento delimitador principal que puede definirse estructuralmente.”

Stanier & van Niel (1962) consideran dos grupos diferentes de organismos procariotas, las bacterias y las algas verdeazules (hoy cianobacterias o Cyanobacteriota). Si bien, la caracterización actual de las bacterias se consolidó con base en los trabajos de afinidad de las secuencias de genes ribosomales iniciadas por Woese & Fox (1977), el concepto de bacteria de Stanier & van Niel (1962) basado en criterios morfológicos menos abstractos, más fáciles de explicar, y que enfatizan la falta de compartimientos internos, ha permeado poderosamente en la cultura científica de los no especialistas, muy probablemente por esto existe una gran reticencia a incorporar el estudio de los orgánulos bacterianos en los libros de texto, como sí se hace con los orgánulos de eucariotas. Sin embargo, la descripción funcional de compartimientos subcelulares en las bacterias y su denominación como “orgánulos” se realizóhace más de medio siglo (Cruden, Cohen-Bazire & Stanier, 1970; Remsen, 1982).

El concepto de orgánulo

La palabra "orgánulo" deriva del latín "organulum", que es el diminutivo de "organum" (órgano) y se introdujo para nombrar a diversos cuerpos observados mediante el microscopio, en el interior de las células eucariotas (Gruber, 2019). El término se aplica a las estructuras subcelulares de origen endosimbiótico, pero también a los sistemas membranosos relacionados con la síntesis, el procesamiento y la importación o exportación de biomoléculas y al núcleo celular (Dyall, Brown & Johnson, 2004; Keeling, McCutcheon & Doolittle, 2015; Schrader, Godinho, Costello & Islinger, 2015).

Estos “pequeños órganos” se caracterizan por ser compartimentos subcelulares delimitados por membranas lipídicas, con un proteoma característico y con funciones específicas dentro de la célula. Según otros enfoques las transiciones entre las fases líquido-líquido determinadas por diferencias de densidad en el citoplasma suplen el papel de las membranas en la delimitación de los orgánulos (Brangwynne, 2013). Esta última aproximación también ha sido aplicada a las bacterias (Jin et al., 2021; Greening & Lithgow, 2020) y si bien contribuye al entendimiento de algunos aspectos del funcionamiento celular, también resulta un tanto confuso. Existen diferentes formas de definir a un orgánulo bacteriano, que son, sin embargo, coincidentes entre sí, en lo fundamental. Al lector interesado, consulte para mayor detalle Murat, Byrne & Komeili (2010); Grant, Wan & Komeili (2018); y Greening & Lithgow (2020). Acorde con los trabajos mencionados, en el presente documento se define al orgánulo de esta forma: es un compartimento subcelular, delimitado por una membrana biológica, con un proteoma característico que contribuye al funcionamiento celular con reacciones bioquímicas o bien con tareas específicas. Una membrana biológica no necesariamente implica una bicapa lipídica, hay orgánulos delimitados por monocapas lipídicas y por membranas proteicas.

La presente revisión no busca ser exhaustiva (existen más de una treintena de orgánulos bacterianos descritos), en cambio, el objetivo es referir el descubrimiento, la estructura y la función de algunos de los orgánulos más importantes desde una perspectiva histórica y a los que por su relevancia biológica o su aporte al entendimiento de la regulación en la biogénesis de los orgánulos, sean más interesantes.

Orgánulos relacionados al fototrofismo

Los cromatóforos

En un inicio, a los cromatóforos se les describió como partículas esferoidales de unos 40 nm de diámetro, presentes en cantidades muy elevadas (unos 5 000) en la bacteria fotótrofa facultativa Rhodospirillum rubrum crecida en presencia de la luz (Pardee, Schachman & Stanier, 1952; Schachman, Pardee & Stanier, 1952). También fueron identificados como los portadores de la bacterioclorofila y los pigmentos carotenoides, que son fotosintéticos en la citada bacteria, sin embargo, a decir de Pardee et al. (1952) “dado que no poseen la complejidad estructural de los cloroplastos típicos, parece más apropiado designarlos como “cromatóforos”(portadores del color).

Los cromatóforos en desarrollo, son invaginaciones de la membrana citoplasmática (bicapa lipídica) que se desprenden y forman vesículas separadas cuando maduran (Tucker et al., 2010; Noble et al., 2018).

Los cromatóforos maduros más cercanos a la membrana están generalmente aislados, diferente a los del centro que están unidos a los cromatóforos vecinos e incluso forman estructuras reticulares (Scheuring et al., 2014; Noble et al., 2018). En los cromatóforos la bacterioclorofila y los pigmentos carotenoides se unen a los Complejos captadores de luz 1 y 2 (LH1 y LH2, por sus siglas en inglés, Ligth Harvesting Complex), y acoplan la energía de los fotones con la cadena transportadora de electrones para generar un gradiente de protones al interior del cromatóforo (Figura 1A). El potencial electroquímicoque se genera por la acumulaciónde protones es empleado por la ATP sintasa (ATPasa) del cromatóforo para sintetizar a la ATP (Bryant & Canniffe, 2018; Zamal, Madireddi, Mekala, Chintalapati & Subramanyam, 2024).
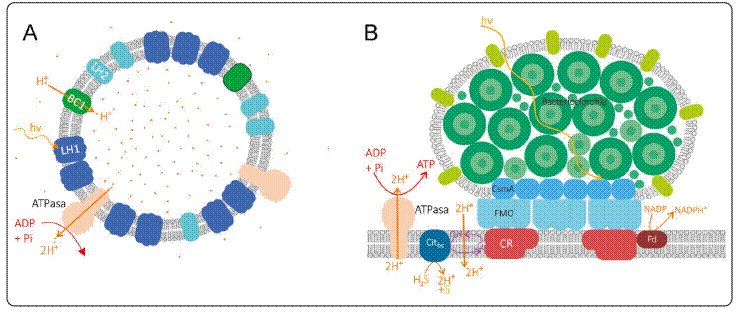
Esquema construido con información de Bertsova et al. (2019); Chen et al. (2020); y Govindjee et al. (2024).

Figura 1 Orgánulos relacionados al fototrofismo anoxigénico. A: Representación esquemática de un cromatóforo con los complejos captadores de luz 1 y 2 (LH1 y LH2), el complejo BC1 (bomba de protones) y la enzima ATP sintasa (ATPasa). La luz es captada por los LH1 y LH2 y su energía se emplea para generar un gradiente de protones, que a su vez mueve una ATPasa que sintetiza a la ATP. Esquema construido con información de Bryant & Canniffe (2018); Noble et al. (2018); y Miller, Martin, Liu & Canniffe (2020). B: Representación esquemática de un clorosoma con moléculas de bacterioclorofila asociadas en forma cilíndrica al interior de una membrana compuesta por una monocapa lipídica, las proteínas Fenna-Matthews-Olson (FMO), el centro reactivo (CR), el citocromo bc (Citbc) y la enzima ferridoxina (Fd). La luz es captada por la bacterioclorofila y su energía transmitida a las proteínas FMO y después a las proteínas CsmA y al CR. La energía puede utilizarse para generar un gradiente de protones que es empleado por la ATPasa para sintetizar a la ATP, o bien para producir a la NADPH mediante una Fd. 

Tilacoides

Los tilacoides son estructuras membranosas localizadas en el interior de los cloroplastos de las células vegetales y de las cianobacterias. La descripción de los tilacoides en eucariotas y bacterias se dio de forma casi simultánea; si bien el hallazgo de los cloroplastos en eucariotas fue con mucha anterioridad. Antonie van Leeuwenhoek en 1686 descubre a los cloroplastos en el interior de las células vegetales y los denomina “glóbulos verdes”. La existencia de una subestructura dentro de los cloroplastos fue observada por primera vez en 1883 por Arthur Meyer quien la denominó“grana”(granular), (Weier, 1938; Staehelin & Paolillo, 2020); sin embargo, avanzado el siglo veinte, se observa que el grana, más que tener una estructura granular, está formado por laminillas (lamelas) o discos apilados (Figura 2A), que son los depositarios de la clorofila (Heitz, 1936; Weier, 1938). En referencia al aparato fotosintético de una cianobacteria, Calvin & Lynch (1952) escriben: “En función del tamaño y el contenido de clorofila, estas partículas de Synechococcus cedorum podrían considerarse análogas a la grana de otras plantas verdes”.
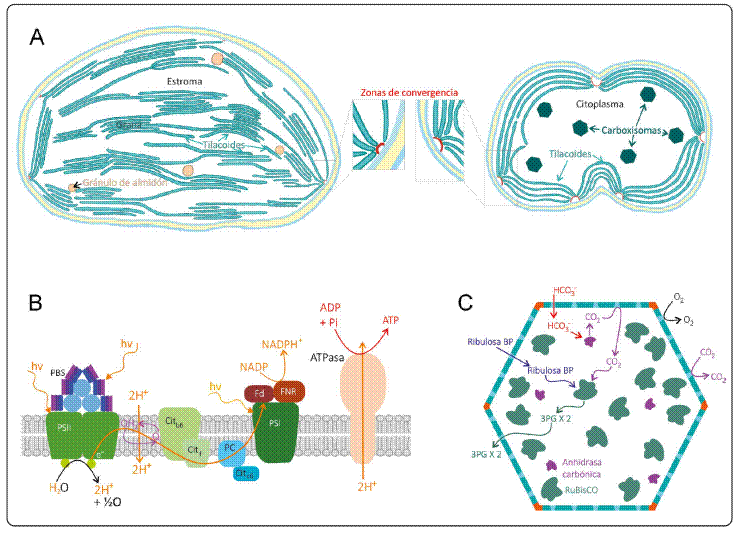
Esquema construido con información de Kerfeld et al. (2005); Bonacci et al. (2012); y Wang et al. (2024).

Figura 2 Orgánulos relacionados al fototrofismo oxigénico. A: Representación esquemática de un cloroplasto eucariota (izquierda) y una célula bacteriana de Synechocystis (derecha). El cloroplasto muestra el estroma y los agrupamientos de tilacoides en “grana”, el citoplasma de Synechocystis presenta tilacoides con disposición parietal además de carboxisomas. El esquema del cloroplasto fue construído con información de Staehelin (2003); Rast et al. (2019); y Perez-Boerema, Engel & Wietrzynski (2024). El esquema de Synechocystis fue construído con información de Kerfeld et al. (2005); Nickelsen & Zerges (2013); Mareš et al. (2019); y Kobayashi et al. (2021). B: Esquematización del aparato fotosintético de cianobacterias, con los ficobilisomas (PBS), los fotosistemas 1 y 2 (PSI y PSII), los citocromos b6, f y c6 (Citb6, Citf, Citc6), la enzima plastocianina (PC), la enzima ferridoxina (Fd) y la Ferridoxina NADP oxidorreductasa (NFR). El esquema fue construído con información de Mullineaux & Liu (2020); Huokko et al. (2021); y Shimakawa (2023). C: Esquema de un carboxisoma que muestra el paso de HCO3 - y la Ribulosa 1,5-bifosfato (Ribulosa BP) a través de una membrana proteica que contiene a las enzimas anhidrasa carbónica y RuBisCo que conducen a la síntesis de 3-fosfoglicerato (3PG). 

El término “tilacoide” (pequeño saco) fue acuñado por Von Wilhelm Menke una década después, quien con base en micrografías electrónicas describe que el sistema endomembranoso de los cloroplastos está formado por conjuntos de láminas dobles muy próximas entre sí, plegadas en un extremo formando un saco con independencia de otros paquetes vecinos de láminas dobles (Menke, 1961a).

Menke escribe: “Dado que la descripción de la estructura laminar de los cloroplastos utilizando el término anterior “laminillas dobles autónomas” es engorrosa, y debido a que estos elementos estructurales importantes desde el punto de vista morfológico y funcional probablemente merecen su propio nombre, en el futuro los llamaré tilacoides.” (Menke, 1960, 1961a). El mismo Menke describe el sistema laminar fotosintético de las cianobacterias Oscillatoria chalybea y Nostoc muscorum estructuralmente semejante a “todos los cloroplastos examinados hasta ahora” (Menke, 1961b).

En las cianobacterias, los tilacoides tienen acomodos espaciales diversos, ya sea: i) muy simples y paralelos a la membrana citoplasmática (parietales), (Figura 2A) tal es el caso de Prochlorococcus, y Synechocystis (Mareš, Strunecký, Bučinská & Wiedermannová, 2019; Kobayashi et al., 2021); ii) con disposiciones radiales; iii) enrollados; iv) con acomodos especiales que llegan a ocupar la mayor parte del volumen bacteriano, este es el caso de Kamptonema (Mareš et al., 2019).

Si bien en un inicio se consideró que los tilacoides (entonces llamados laminillas o lamelas) se originaban a partir de las invaginaciones de la membrana interior de la envoltura del cloroplasto (Mühlethaler & Frey-Wyssling, 1959) o de la membrana citoplasmática en el caso de las cianobacterias (Echlin & Morris, 1965; Fuhs, 1966), para después separarse de estas membranas (Vothknecht & Westhoff, 2001), la información actual más detallada indica que la membrana de los tilacoides y la membrana interior (en cloroplastos) o citoplasmática (en cianobacterias) no tienen continuidad, ni durante la formación de los nuevos tilacoides, ni en la madurez de estos (Huokko et al., 2021); en cambio existen las llamadas “zonas de convergencia”(Figura 2A) que son puntos de acercamiento yprobablemente de contacto con la membrana citoplasmática, en donde el material requerido para la formación y mantenimiento de los tilacoides es transferido de la membrana citoplasmática a la membrana del tilacoide para constituirse en centros de biogénesis de la membrana tilacoidal (Rast et al., 2019; Staehelin & Paolillo, 2020; Huokko et al., 2021).

La semejanza entre los tilacoides de las cianobacterias y los de los cloroplastos, no es casual, el origen de los cloroplastos a partir de las cianobacterias endosimbiontes está bien establecido, incluso algunos teóricos de la evolución, todavía debaten la conveniencia de conceptualizar alos cloroplastos como bacterias endosimbiontes (Gruber, 2019; Oborník, 2019).

Los tilacoides de las cianobacterias albergan toda la maquinaria molecular requerida para la fase luminosa de la fotosíntesis, incluidos los pigmentos clorofila a y b, ficocianobilinas, ficoeritrobilinas, y carotenoides, y los fotosistemas I y II (PSI y PSII) necesarios para captar la energía de la luz y generar tanto poder reductor (NADPH) como un gradiente de protones que la ATPasa utiliza para sintetizar a la ATP (Figura 2B), (Bryant & Canniffe, 2018; MacGregor-Chatwin et al., 2019; Akhtar et al., 2024; Shimakawa, 2023).

Clorosomas

Los clorosomas son vesículas oblongas, con un tamaño que va entre los 40 × 70 nm y los 100 × 260 nm. Están formadas por una monocapa de galactolípidos unida a una placa basal paracristalina formada por proteínas (Staehelin, Golecki & Drews, 1980). Las vesículas encierran una gran cantidad de moléculas de bacterioclorofila y carotenoides autoensambladasen complejos pigmento-pigmento,más que pigmento-proteínascomo sucede en los cromatóforos (Figura 1B). Las proteínas de la placa basal denominadas CsmA también están acopladas a las moléculas de bacterioclorofila y transmiten la energía captada por los pigmentos fotosintéticos hacia las proteínas Fenna-Matthews-Olson (FMO) que a su vez transmiten la energía hacia centros reactivos tipo 1 (RC1), (Chen et al., 2020; Pedersen, Underhaug, Dittmer, Miller & Nielsen, 2008).

Los RC1 (que ya no forman parte de los clorosomas), están embebidos en la membrana citoplasmática y generan un punto de sujeción de los clorosomas a la membrana a través de las proteínas FMO (Hauska, Schoedl, Remigy & Tsiotis, 2001; Chen et al., 2020). Los RC1 utilizan la energía recibida para transmitirla a los electrones y generar poder reductor (NADH, NADPH o FADH) a través de las ferridoxinas (Seo, Tomioka, Kusumoto, Kamo, Enami & Sakurai, 2001; Kushkevych, Procházka, Vítězová, Dordević, Abd El-Salam & Rittmann, 2024). Alternativamente los electrones energizados generan un potencial electroquímico através de la membrana citoplasmática mediante una bomba de menaquinonas (Frigaard, Takaichi, Hirota, Shimada & Matsuura, 1997; Bertsova, Mamedov & Bogachev, 2019; Govindjee, Amesz, Garab & Stirbet, 2024) o en algunas bacterias de ambientes marinos, generar un potencial electroquímico dependiente del sodio mediante una ferridoxin:NAD(P)+ reductasa. Este potencial electroquímico es utilizado por unaATPasa también dependiente del sodio para producir la ATP (Bertsova et al., 2019).

Los clorosomas se encuentran, con algunas variaciones, en al menos tres phyla bacterianos: Chlorobiota, Chloroflexota y Acidobacteriota (Adams et al., 2013; Thiel, Tank & Bryant, 2018).

Carboxisomas

Los carboxisomas son un tipo de microcompartimento delimitado por una membrana semipermeable de proteínas (Figura 2A y 2C) lo que les otorga una forma poliédrica que recuerda a los viriones (Kerfeld, Aussignargues, Zarzycki, Cai & Sutter, 2018; Yaetes, Kerfeld, Heinhorst, Cannon & Shively, 2008). Los carboxisomas se observaron primero en las cianobacterias hace casi 70 años (Drews & Niklowitz, 1956; Jensen & Bowen, 1961); sin embargo, el aislamiento y purificación de los primeros carboxisomas y su caracterización bioquímica se llevaron a cabo en la bacteria Pseudomonadota Thiobacillus neapolitanus (actualmente Halothiobacillus neapolitanus). Estos microcompartimientos son portadores de la enzima ribulosa bifosfato carboxilasa oxigenasa (RuBisCo) que es clave para la fijación de carbono en el ciclo de Calvin-Benson-Bassham,por lo que se les denominó “carboxisomas” (cuerpos de carboxilos), (Shively, Ball, Brown & Saunders, 1973).

En Synechocystis y H. neapolitanus la membrana está formada por las proteínas CcmK1-4 y CsoS1 respectivamente; en ambos casos son unidades hexaméricas que sirven como bloques de construcción básicos del carboxisoma. Las proteínas CcmK tienen un poro central que actúa como filtro y que permite, sólo el paso de moléculas pequeñas cargadas negativamente como el HCO3 -, la ribulosa 1,5-bifosfato, y el 3-fosfoglicerato, pero no el de las moléculas sin carga CO2 y O2 (Kerfeld et al., 2005; Tanaka et al., 2008). Además de la RuBisCo, los carboxisomas contiene ala anhidrasa carbónica que convierte el HCO3 - en CO2, mismo que queda atrapado al interior del carboxisoma que lo concentra más. El aumento de concentración del CO2,al interior del carboxisoma incrementa la eficiencia de la RuBisCo en la fijación de carbono, al tiempo que se evita la fotorrespiración debido a la ausencia de oxígeno (Bonacci et al., 2012; Scott et al., 2020).

Los carboxisomas están presentes en al menos tres phyla bacterianos diferentes “Cianobacteria” (Cyanobacteriota), “Proteobacteria” (Pseudomonadota) y “Actinobacteria” (Actinomycetota), (Scott et al., 2020; Rae, Long, Badger & Price, 2013).

Orgánulos no relacionados al fototrofismo

Como es de suponerse, no todos los orgánulos bacterianos están relacionados al fototrofismo. Algunos otros otorgan a las bacterias ventajas adaptativas muy variadas, como son la orientación en campos magnéticos, generar energía en procesos de quimiolitotrofismo, servir de almacenes de reserva o incluso concentrar la mayor parte de las funciones celulares. A continuación, se comentan algunos de ellos.

Magnetosomas

Los magnetosomas son orgánulos característicos de las bacterias magnetotácticas. Estas bacterias fueron aisladas en 1975 apartir de muestras extraídas de sedimentos marinos; uno de sus rasgos distintivos fue la presencia de partículas ricas en hierro confinadas dentro de vesículas membranosas intracitoplasmáticas, estas partículas les permiten dirigir su motilidad por campos geomagnéticos locales tan débiles como 0.5 gauss (Blakemore, 1975). Posteriormente, se describió la ultraestructura de “un Spirillum magnético” (Aquaspirillum magnetotacticumun hoy Paramagnetospirillum magnetotacticum) y fue entonces que se acuñó el término “magnetosoma” para nombrar a sus estructuras internas (Balkwill, Maratea & Blakemore,1980; Maratea & Blakemore, 1981).

Los magnetosomas son compartimentos vesiculares de entre 10 y 70 nm de diámetro, generados por la invaginación de la membrana citoplasmática; como su nombre sugiere, son cuerpos con propiedades magnéticas otorgadas por cristales de magnetita (Fe3O4), greigita (Fe3S4) o ambas, que ocupan la mayor parte del volumen vesicular (Lower & Bazylinski, 2013; Uebe & Schüler, 2016).

La continuidad de la membrana del magnetosoma con la membrana citoplasmática no se ha dilucidado en su totalidad. Se tienen microfotografías obtenidas a través del microscopio electrónico en las que se aprecia la continuidad de ambas membranas (Komeili, Li, Newman & Jensen, 2006); sin embargo, otras imágenes y microtomogramas las muestran como estructuras independientes, en particular en Magnetospirillum gryphiswaldense MSR-1, (Schüler, 2004; Toro-Nahuelpan, Müller, Klumpp, Plitzko, Bramkamp & Schüler, 2016; Toro-Nahuelpan et al., 2019; Masó-Martínez et al., 2024) por lo que es posible que al menos en esta especie, la separación entre magnetosomas y la membrana citoplasmática sea total. De cualquier forma, estos compartimentos están física, química y funcionalmente separados del citoplasma y poseen su propio proteoma y función (Grünberg et al., 2004; Amor et al., 2022).

Los magnetosomas nunca están aislados, sino que están alineados en una recta de entre cinco a cuarenta dentro de la célula bacteriana (Figura 3A), lo que origina estructuras que funcionan como agujas magnéticas (Balkwill et al., 1980; Kiani, Faivre & Klumpp, 2015; Masó-Martínez et al., 2024). El alineamiento de los magnetosomas es mantenido por medio del citoesqueleto bacteriano, el llamado “magnetoesqueleto”formado por múltiples componentes, dentro de los que destacan la proteína MamK, homóloga a la actina, que forma filamentos rectos, la proteína MamJ que funciona como adaptadora entre la membrana del magnetosoma y MamK y la proteína MamY unida a la membrana citoplasmática y que interactúa con MamJ (Abreu, Mannoubi, Ozyamak, Pignol, Ginet & Komeili, 2014; Pfeiffer et al., 2020; Toro-Nahuelpan et al., 2016, 2019). La biogénesis de los magnetosomas es un proceso altamente regulado en el que intervienen al menos una veintena de genes (Murat et al., 2010; Liu et al., 2023), así, por ejemplo, el flujo de hierro al interior de las vesículas es impulsado por los transportadores catiónicos MamB y MamM (Uebe et al., 2011), en lo que respecta a la nucleación y maduración de los cristales de magnetita son atribuidos entre otras a las proteínas MamD y MamE (Raschdorf, Bonn, Zeytuni, Zarivach, Becher & Schüler, 2018; Bickley, Wan & Komeili, 2024), (Figura 3B).
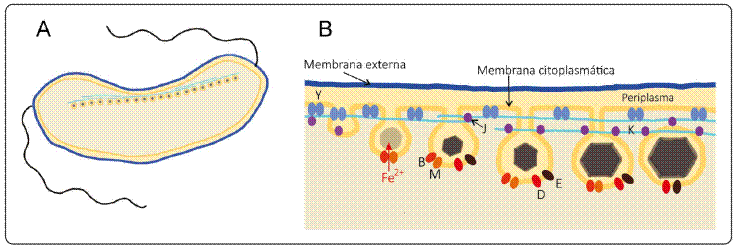
Esquemas construidos con información de Maratea & Blakemore (1981); Uebe & Schüler (2016); Toro-Nahuelpan et al. (2019); Raschdorf et al. (2018); y Bickley et al. (2024).

Figura 3 Magnetosomas bacterianos.A: Representación esquemática de la bacteria magnetotáctica Paramagnetospirillum magnetotacticum con una cadena de magnetosomas alineados por el magnetoesqueleto, los filamentos de MamK son representados en líneas de color aguamarina. B: Representación esquemática del proceso de formación y maduración de los magnetosomas. En este proceso están involucradas múltiples proteínas, los transportadores catiónicos MamB y MamM están indicados con las letras “B” y “M”, las proteínas MamD y MamE involucradas en la cristalización de la magnetita se indican con las letras “D” y “E”, los elementos del magnetoesqueleto MamY (proteína transmembranal), MamJ (adaptador) y MamK (varilla del citoesqueleto) se indican con las letras “Y”, “J” y “K” respectivamente.  

Los análisis filogenómicos han revelado la presencia de genes relacionados a la biogénesis de los magnetosomas en trece distintos phyla bacterianos, en específico de bacterias anaerobias y microaerofílicas (Lin et al., 2020; Goswami, He, Li, Pan, Roberts & Lin, 2022). Los magnetosomas confieren una ventaja adaptativa a las bacterias que los tienen, ya que no solo les permiten ubicarse y desplazarse en referencia al campo geomagnético terrestre (Blakemore, Frankel & Kalmijn, 1980) sino que también y más importante, dado que el campo magnético terrestre tiene un componente vertical (que apunta hacia abajo en el hemisferio norte), nadar a lo largo de las líneas geomagnéticas les facilita situarse en un gradiente redox generado en una interface oxica-anóxica, lo que es útil para localizar las condiciones ambientales que les resulten más favorables (Lower & Bazylinski, 2013; Klumpp & Faivre, 2016).

Pirellulosomas

Los pirellulosomas (cuerpos de Pirellula) sólo se han encontrado en bacterias del phylum Planctomycetota. Originalmente fueron descritos en el género Pirellula como compartimentos celulares esferoidales delimitados por una membrana consistente en una bicapa lipídica, que contienen la mayor parte del volumen celular incluido el nucleoide y los ribosomas, por lo que al plasma localizado al interior del pirellulosoma se le denomina riboplasma (Lindsay, Webb & Fuerst, 1997). Es claro que el pirellulosoma es la parte con mayor actividad fisiológica de la célula. En otros géneros como Isosphaera y Plactomycetes el pirellulosoma tiene forma de herradura (Figura 4A), por lo que la porción central de la célula queda fuera del pirellulosoma (Linsay et al., 2001).
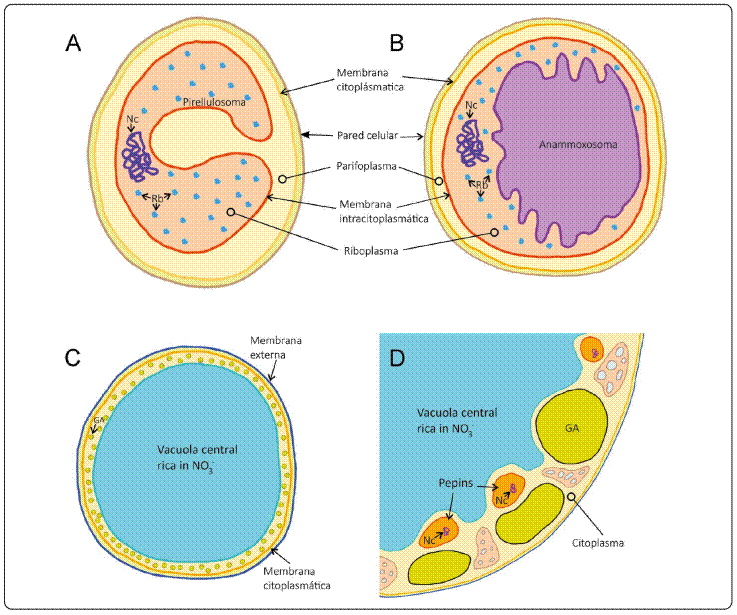
Esquema construido con información de Volland et al. (2022).

Figura 4 Otros orgánulos bacterianos destacables. A: Representación esquemática de Isosphaera con el orgánulo pirellulosoma en forma de“C”o herradura. El pirellulosoma contiene el riboplasma, único espacio con ribosomas (Rb) y el nucleoide (Nc), entre la membrana citoplasmática (en color naranja pálido) y el pirellulosoma, se encuentra el parifoplasma, un plasma carente de Rbs. Esquema construído con información de Lindsay, Webb & Fuerst (1997); Lindsay et al. (2001); Sanapala & Pola (2021). B: Representación esquemática de Candidatus Kuenia stuttgartiensis con el orgánulo anammoxosoma al interior del pirellulosoma y una estructura general semejante a la de Isosphaera. Esquema construído con información de Van Niftrik et al. (2010); Neumann et al. (2014); y Moss III et al. (2018). C: Representación esquemática de Thiomargarita namibiensis con la gran vacuola central rica en iones nitrato. En el citoplasma se acumulan una gran cantidad de glóbulos de azufre (GA). Esquema construido con información de Schulz et al. (1999); y Bailey, Flood, Ricci & Delherbe (2017). D: Representación esquemática de una sección de Candidatus Thiomargarita magnífica, con la gran vacuola central rica en nitratos, en el citoplasma se muestra la proliferación de GA, y los orgánulos “pepins” que contienen los Rb y los Nc. 

En algunas reinterpretaciones, se considera que en realidad los organismos del phylum Planctomycetota tienen un plan de organización semejante a otras bacterias gram-negativas, pero con alteraciones que incluyen auna membrana externa definida y aun espacio periplásmico muy agrandado yfuertemente plegado; en esta concepción, el pirellulosoma es la célula bacteriana en sí (Boedeker et al., 2017). Otras interpretaciones recientes aún sostienen que el pierullosoma es un compartimiento interno de la bacteria (Pinos, Pontarotti, Raoult, Baudoin & Pagnier, 2016; Sanapala & Pola, 2021).

En bacterias Candidatus Kuenenia y Candidatus Brocadia (el estatus de Candidatus indica que el organismo carece de una descripción taxonómica válida) el pirellulosoma contiene en su interior un segundo orgánulo, el anammoxosoma (Lindsay et al., 2001; van Teeseling et al., 2014).

Anammoxosoma

El término “anammox” es un acrónimo de la expresión inglesa“anaerobic ammonia oxidation” (oxidación anaerobia del amoniaco) empleada para referirse a un tipo de metabolismo caracterizado por utilizar nitrito (NO2 -) como oxidante del amoniaco (NH3), y generar agua y nitrógeno molecular (N2) como subproductos. El primer organismo con este tipo de metabolismo fue reportado en 1999 en una bacteria litótrofa del phylum Plactomycetota que no fue apropiadamente descrita, entre otras razones, por la imposibilidad de obtener un cultivo puro (Strous et al., 1999).

Los anammoxosomas (cuerpos de anammox) son los orgánulos donde se lleva a cabo el metabolismo anammox. Los anammoxosomas se encuentran en el riboplasma (Figura 4B) y están delimitados por una bicapa lipídica rica en lípidos, específicos, denominados ladderanos, lo que da una alta densidad a la membrana y protege al resto de la célula de los intermediarios tóxicos del metabolismo anammox (Sinninghe Damsté et al., 2002; Moss III et al., 2018).

El proteoma del anammoxosoma incluye una nitritoreductasa, una hidrazina hidrolasa, una hidrazina oxidasa, y una ATPasa membranal, lo que revela que este es un orgánulo respiratorio anaerobio que alberga el metabolismo energético de la célula (van Niftrik et al., 2010; Neumann et al., 2014).

Vacuolas

En las bacterias existen una amplia diversidad de vacuolas, que son orgánulos con funciones de almacenamiento de especies químicas y de regulación de la turgencia. La presencia de las vacuolas se observó inicialmente en las bacterias sulfooxidantes del género Thiovulum y fueron consideradas como depósitos de azufre bordeados por una membrana lipídica (Fauré-Fremiet & Rouiller, 1958); otras bacterias sulfooxidantes como Thioploca, Beggiatoa y Thiomargarita también contienen vacuolas (Maier & Murray, 1965; Schulz, Brinkhoff, Ferdelman, Mariné, Teske & Jørgensen, 1999).

En Thioploca la vacuola acumula nitrato en concentraciones superiores a 0.5 mM, tiene una posición central y ocupa cerca del 80% del volumen de la célula de entre 40 y 60 µm de diámetro y (Maier, Völker, Beese & Gallardo, 1990; Fossing et al.,1995). Thiomargarita namibiensis es una bacteria esférica de amplio tamaño (Figura 4C), con diámetros superiores a los 400µM, donde la vacuola, que también acumula nitrato (0.1 a 0.8 mM), ocupa cerca del 98% del volumen celular (Fossing et al., 1995). La bacteria más grande conocida hasta hoy es Candidatus Thiomargarita magnifica (más de 1cm de longitud yun diámetro de alrededor de 100 µm) con una vacuola central (Figura 4D) que abarca casi el 75% del volumen celular (Volland et al., 2022).

El proteoma de las vacuolas es diverso, en algunas especies de bacterias sulfooxidantes las vacuolas funcionan como orgánulos energéticos en cuyas membranas, una cadena trasportadora de electrones genera una fuerza protón motriz, que es empleada para la síntesis de la ATP por una ATPasa vacuolar (Beutler et al., 2012). Los acidocalsisomas, son vacuolas especializadas en la acumulación de pirofosfato y calcio en un ambienteácido, contienen pirofosfatasas y ATPasas requeridas para su función (Seufferheld, Vieira, Ruiz, Rodrigues, Moreno & Docampo, 2003).

Pepins

Los pepins (“pequeños” en latín vulgar) fueron descritos como orgánulos de alrededor de 1 µm de diámetro; y sólo se conocen en Candidatus T. magnifica. Contienen el ADN y los ribosomas de la bacteria al interior de una membrana formada por una bicapa lipídica (Figura 4D). La biosíntesis de las proteínas sucede dentro de los pepins y las enzimas sintetasas de la ATP están localizadas en torno a estos orgánulos, acorde a las observaciones realizadas con técnicas inmunohistoquímicas. Una sola célula de Candidatus T. magnifica presenta una talla de cerca de 2 cm de largo y contiene cientos de miles de pepins (Volland et al., 2022).

Ciertamente, el hallazgo de Candidatus T. magnifica fue extraordinario, al romper con los límites de tamaño registrados para una bacteria, más aún, el hallazgo de los pepins es un cambio conceptual en el modelo de organización de una bacteria. Es muy difícil abstenerse de considerar la idea de que las “células bacterianas reales” son los pepins, y la “célula bacteriana nominal” es algún tipo de sistema colonial no conocido previamente. Al momento de escribir esta revisión no hay más información acerca de los pepins.

Otros orgánulos bacterianos

Con el paso del tiempo la lista de los orgánulos bacterianos se ha hecho más extensa, y por esto, escapa a los objetivos de esta revisión mencionarlos a todos, sin embargo, en la Tabla I se enlistan otros orgánulos bacterianos, con sus principales características, funciones y referencias para utilidad del lector interesado.

Tabla I Otros orgánulos bacterianos. 

Orgánulo Especies representativas Tipo y función Referencias
Vesículas de gas Dolichospermum spiroides, Bacillus megaterium Compartimentos delimitados por una membrana proteica que contienen gas atmosférico. Proporcionan flotabilidad a las bacterias. Bowen & Jensen (1965); Huber, Terwiel, Evers, Maresca & Jakobi (2023).
Glóbulos de azufre Beggiatoa sp. Allochromatium vinosum Compartimentos delimitados por una membrana proteica que almacenan azufre elemental como compuesto energético de reserva. Maier & Murray (1965); Nicolson & Schmidt (1971); Maki (2013).
Metabolosomas tipo Pdu y Grp para la utilización de propanediol Salmonella enterica (Pdu) Escherichia coli (Grp) Microcompartimentos delimitados por una membrana proteica partícipes en la fermentación del propanediol. Havemann & Bobik (2003); Lundin, Stewart, Stewart, Herring, Chowdhury & Bobik (2020); Yan et al. (2022).
Cuerpos lipídicos Acinetobacter sp. Mycobacterium abscessus Pequeñas vesículas delimitadas por una monocapa lipídica que almacenan lípidos como material de reserva. Wältermann et al. (2005); Dargham et al. (2025).
Carbonosomas Ralstonia eutropha, Pseudomonas putida Compartimentos delimitados por membranas de proteínas estructurales y enzimáticamente funcionales que almacenan gránulos de Poli ß-hidroxilbutirato u otros alcanoatos que constituyen materiales de reserva. Uchino, Saito, Gebauer & Jendrossek (2007); Bresan, Sznajder, Hauf, Forchhammer, Pfeiffer & Jendrossek (2016).
Nanocompartimentos de encapsulación Thermotoga maritima, Myxococcus xanthus Nanocompartimentos con membranas formadas por proteínas encapsulinas. Encapsulan enzimas como peroxidasas, reductasas férricas y proteínas de reserva como las FLP(“ferritin-like protein”), e intervienen en la homeostasis del hierro. Sutter et al. (2008); Eren, Watts, Conway & Wingfield (2024).
Ferrosomas Desulfovibrio magneticus Organelos vesiculares con membrana de bicapa lipídica que almacenan hierro ferroso amorfo y fosfato. Byrne et al. (2010); Grant, Amor, Trujillo, Krishnapura, Lavarone & Komeili (2022);
Vacuola fagosítica (PVs) Candidatus Uab amorphum, Candidatus Uabimicrobium helgolandensis Compartimento delimitado por una doble bicapa lipídica resultante de la fagocitosis de células bacterianas depredadas. Shiratori, Suzuki, Kakizawa & Ishida (2019); Wurzbacher, Hammer, Haufschild, Wiegand, Kallscheuer & Jogler (2024).

Conclusiones

La mayoría de las bacterias son microorganismos difíciles de observar con instrumentos ópticos convencionales, ya que sus estructuras internas no se aprecian con la calidad necesaria para obtener datos útiles. Por otro lado, tampoco es fácil definir de forma clara y sencilla qué es una bacteria, si se ha de prescindir de la comparación de las proteínas y los genes altamente conservados como los genes ribosomales. Lo anterior ha llevado a que una definición de bacteria“clásica”pero rebasada, que especifica la ausencia de membranas internas, permanezca en la mente de personas no especialistas en el campo de la microbiología, y por tanto que exista resistencia al término“orgánulo bacteriano” aún ahora, más de 70 años después de la descripción meticulosa del primer orgánulo en una bacteria.

Se conoce la existencia de decenas de tipos y subtipos de orgánulos bacterianos con funciones específicas, pero en esta breve revisión con una perspectiva histórica, sólo se enfatiza en los primeros orgánulos descritos, su papel en la fisiología de las bacterias fotótrofas, su participación en la fase luminosa de la fotosíntesis (cromatóforos, tilacoides, clorosomas), en la fijación de carbono (carboxisomas), en la magnetotaxis y su valor adaptativo para los organismos microaerofílicos. Enfatizamos también en la existencia de orgánulos que concentran las funciones principales de la célula (pirellulosomas) y los que representan auténticos análogos a las mitocondrias de eucariotas, es el caso de los anammoxosomas y algunas vacuolas (orgánulos respiratorios con funciones de generación de la ATP).

El estudio de los orgánulos bacterianos es un campo de investigación en desarrollo con perspectivas muy estimulantes y aplicaciones muy diversas, que parten de lo biotecnológico hasta la biología conceptual. El descubrimiento de los pepins, orgánulos que se asemejan a las células bacterianas, y están dentro de estas, nos muestra lo mucho que desconocemos de las posibilidades del plan de organización interna de estos organismos, antes considerados “pequeños sacos de enzimas”.

Agradecimientos

El presente trabajo ha sido financiado por la Coordinación de la Investigación Científica de la Universidad Michoacana de San Nicolás de Hidalgo (México) proyecto 19683.

Referencias

Abreu, N., Mannoubi, S., Ozyamak, E., Pignol, D., Ginet, N. & Komeili, A. (2014). Interplay between two bacterial actin homologs, MamK and MamK-Like, is required for the alignment of magnetosome organelles in Magnetospirillum magneticum AMB-1. Journal of Bacteriology, 196, 3111-3121. http://dx.doi.org/10.1128/JB.01674-14 [ Links ]

Adams, P. G., Cadby, A. J., Robinson, B., Tsukatani, Y., Marcus, T, Wen, J., Blankenship, R. E., Bryant, D. & Hunter, C. N. (2013). Comparison of the physical characteristics of chlorosomes from three different phyla of green phototrophic bacteria. Biochimica et Biophysica Acta (BBA)-Bioenergetics, 1827, 1235-1244. https://doi.org/10.1016/j.bbabio.2013.07.004 [ Links ]

Akhtar, P., Balog-Vig, F., Han, W., Li, X., Han, G., Shen, J. R. & Lambrev, P. H. (2024). Quantifying the energy spillover between photosystems II and I in cyanobacterial thylakoid membranes and cells. Plant and Cell Physiology, 65, 95-106. https://doi.org/10.1093/pcp/pcad127 [ Links ]

Amor, M., Faivre, D., Corvisier, J., Tharaud, M., Busigny, V., Komeili, A. & Guyot, F. (2022). Defining local chemical conditions in magnetosomes of magnetotactic bacteria. The Journal of Physical Chemistry B, 126, 2677-2687. https://doi.org/10.1021/acs.jpcb.2c00752 [ Links ]

Bailey, J. V., Flood, B. E., Ricci, E. & Delherbe, N. (2017). Imaging of cellular oxidoreductase activity suggests mixotrophic metabolisms in Thiomargarita spp. Mbio, 8, 10-1128. https://doi.org/10.1128/mbio.01263-17 [ Links ]

Balkwill, D. L., Maratea, D. & Blakemore, R. P. (1980). Ultrastructure of a magnetotactic spirillum. Journal of Bacteriology, 141, 1399-1408. https://doi.org/10.1128/jb.141.3.1399-1408.1980 [ Links ]

Bertsova, Y. V., Mamedov, M. D. & Bogachev, A. V. (2019). Na+-translocating ferredoxin: NAD+ oxidoreductase is a component of photosynthetic electron transport chain in green sulfur bacteria. Biochemistry (Moscow), 84, 1403-1410. https://doi.org/10.1134/S0006297919110142 [ Links ]

Beutler, M., Milucka, J., Hinck, S., Schreiber, F., Brock, J., Mußmann, M., Schulz-Vogt, Heide N. & de Beer, D. (2012). Vacuolar respiration of nitrate coupled to energy conservation in filamentous Beggiatoaceae. Environmental Microbiology, 14, 2911-2919. https://doi.org/10.1111/j.1462-2920.2012.02851.x [ Links ]

Bickley, C. D., Wan, J. & Komeili, A. (2024). Intrinsic and extrinsic determinants of conditional localization of Mms6 to magnetosome organelles in Magnetospirillum magneticum AMB-1. Journal of Bacteriology, 206, e00008-24. https://doi.org/10.1128/jb.00008-24 [ Links ]

Blakemore, R. (1975). Magnetotactic bacteria. Science, 190, 377-379. https://doi.org/10.1126/science.170679 [ Links ]

Blakemore, R. P., Frankel, R. B. & Kalmijn, A. J. (1980). South-seeking magnetotactic bacteria in the Southern Hemisphere. Nature, 286, 384-385. https://doi.org/10.1038/286384a0 [ Links ]

Boedeker, C., Schüler, M., Reintjes, G., Jeske, O., vanTeeseling, M. C., Jogler, M., Rast, P., Borchert, D., Devos, D. P., Kucklick, M., Schaffer, M., Kolter, R., van Niftrik, L., Engelmann, S., Amann, R., Rohde, M., Engelhardt, H. & Jogler, C. (2017). Determining the bacterial cell biology of Planctomycetes. Nature Communications, 8, 14853. https://doi.org/10.1038/ncomms14853 [ Links ]

Bonacci, W., Teng, P. K., Afonso, B., Niederholtmeyer, H., Grob, P., Silver, P. A. & Savage, D. F. (2012). Modularity of a carbon-fixing protein organelle. Proceedings of the National Academy of Sciences, 109, 478-483. https://doi.org/10.1073/pnas.1108557109 [ Links ]

Bowen, C. C. & Jensen, T. E. (1965). Blue-green algae: fine structure of the gas vacuoles. Science, 147, 1460-1462. https://doi.org/10.1126/science.147.3664.1460 [ Links ]

Brangwynne, C. P. (2013). Phase transitions and size scaling of membrane-less organelles. Journal of Cell Biology, 203, 875-881. https://doi.org/10.1083/jcb.201308087 [ Links ]

Bresan, S., Sznajder, A., Hauf, W., Forchhammer, K., Pfeiffer, D. & Jendrossek, D. (2016). Polyhydroxyalkanoate (PHA) granules have no phospholipids. Scientific Reports, 6, 26612. https://doi.org/10.1038/srep26612 [ Links ]

Bryant, D. A. & Canniffe, D. P. (2018). How nature designs light-harvesting antenna systems: design principles and functional realization in chlorophototrophic prokaryotes. Journal of Physics B: Atomic, Molecular and Optical Physics, 51, 033001. https://doi.org/10.1088/1361-6455/aa9c3c [ Links ]

Byrne, M. E., Ball, D. A., Guerquin-Kern, J. L., Rouiller, I., Wu, T. D., Downing, K. H., Vali, H. & Komeili, A. (2010). Desulfovibrio magneticus RS-1 contains an iron-and phosphorus-rich organelle distinct from its bullet-shaped magnetosomes. Proceedings of the National Academy of Sciences, 107, 12263-12268. https://doi.org/10.1073/pnas.1001290107 [ Links ]

Calvin, M. & Lynch, V. (1952). Grana-like structures of Synechococcus cedorum. Nature, 169, 455-456. https://doi.org/10.1038/169455b0 [ Links ]

Chen, J. H., Wu, H., Xu, C., Liu, X. C., Huang, Z., Chang, S., Wang, W., Han, G., Kuang, T., Shen, J. R. & Zhang, X. (2020). Architecture of the photosynthetic complex from a green sulfur bacterium. Science, 370, eabb6350. https://doi.org/10.1126/science.abb6350 [ Links ]

Cruden, D. L., Cohen-Bazire, G. & Stanier, R. Y. (1970). Chlorobium vesicles: the photosynthetic organelles of green bacteria. Nature, 228, 1345-1347. https://doi.org/10.1038/2281345a0 [ Links ]

Dargham, T., Aguilera-Correa, J. J., Avellan, R., Mallick, I., Celik, L., Santucci, P., Brasseur, G., Poncin, I., Point, V., Audebert, S., Camoin, L., Daher, W., Cavalier, J. F., Kremer, L. & Canaan, S. (2025). A proteomic and functional view of intrabacterial lipid inclusion biogenesis in mycobacteria. mBio, 16, e01475-24. https://doi.org/10.1128/mbio.01475-24 [ Links ]

Drews, G. (2000). The roots of microbiology and the influence of Ferdinand Cohn on microbiology of the 19th century. FEMS Microbiology Reviews, 24, 225-249. https://doi.org/10.1111/j.1574-6976.2000.tb00540.x [ Links ]

Drews, G. & Niklowitz, W. (1956). Beiträge zur Cytologie der Blaualgen: II. Mittelung Zentroplasma und granuläre Einschlüsse von Phormidium uncinatum. Archiv. für Mikrobiologie, 24, 147-162. https://doi.org/10.1007/BF00408629 [ Links ]

Dyall, S. D., Brown, M. T. & Johnson, P. J. (2004). Ancient invasions: from endosymbionts to organelles. Science, 304, 253-257. https://doi.org/10.1126/science.1094884 [ Links ]

Echlin, P. & Morris, I. (1965). The relationship between blue-green algae and bacteria. Biological Reviews, 40, 143-184. https://doi.org/10.1111/j.1469-185X.1965.tb00800.x [ Links ]

Ehrenberg, C. G. (1838). Die Infusionsthierchen als vollkommene Organismen: Ein Blick in das tiefere organische Leben der Natur. Leipzig: L. Voss. https://doi.org/10.5962/bhl.title.58475 [ Links ]

Eren, E., Watts, N. R., Conway, J. F. & Wingfield, P. T. (2024). Myxococcus xanthus encapsulin cargo protein EncD is a flavin-binding protein with ferric reductase activity. Proceedings of the National Academy of Sciences, 121, e2400426121. https://doi.org/10.1073/pnas.2400426121 [ Links ]

Fauré-Fremiet, E. & Rouiller, C. H. (1958). Etude au microscope electronique d’une bactérie sulfureuse, Thiovulum majus Hinze. Experimental Cell Research, 14, 29-46. https://doi.org/10.1016/0014-4827(58)90211-8 [ Links ]

Fossing, H., Gallardo, V. A., Jørgensen, B. B., Hüttel, M., Nielsen, L. P., Schulz, H., Canfield, D. E., Forster, S., Glud, R. N., Gundersen, J. K., Küver, J., Ramsing, N. B., Teske, A., Thamdrup, B. & Ulloa, O. (1995). Concentration and transport of nitrate by the mat-forming sulphur bacterium Thioploca. Nature, 374, 713-715. https://doi.org/10.1038/374713a0 [ Links ]

Frigaard, N. U., Takaichi, S., Hirota, M., Shimada, K. & Matsuura, K. (1997). Quinones in chlorosomes of green sulfur bacteria and their role in the redox-dependent fluorescence studied in chlorosome-like bacteriochlorophyll c aggregates. Archives of Microbiology, 167, 343-349. https://doi.org/10.1007/s002030050453 [ Links ]

Fuhs, G. W. (1966). Spherical subunits in photosynthetic membranes of two Cyanophyceae and the bacterium Rhodospirillum rubrum. Archiv für Mikrobiologie, 54, 253-265. https://doi.org/10.1007/BF00408998 [ Links ]

Goswami, P., He, K., Li, J., Pan, Y., Roberts, A. P. & Lin, W. (2022). Magnetotactic bacteria and magnetofossils: ecology, evolution and environmental implications. npj Biofilms and Microbiomes, 8, 43. https://doi.org/10.1038/s41522-022-00304-0 [ Links ]

Govindjee, G., Amesz, B., Garab, G. & Stirbet, A. (2024). Remembering Jan Amesz (1934-2001): a great gentleman, a major discoverer, and an internationally renowned biophysicist of both oxygenic and anoxygenic photosynthesisa. Photosynthesis Research, 160, 125-142. https://doi.org/10.1007/s11120-024-01102-9 [ Links ]

Grant, C. R., Wan, J. & Komeili, A. (2018). Organelle formation in Bacteria and Archaea. Annual Review of Cell and Developmental Biology, 34, 217-238. https://doi.org/10.1146/annurev-cellbio-100616-060908 [ Links ]

Grant, C. R., Amor, M., Trujillo, H. A., Krishnapura, S., Lavarone, A.T. & Komeili, A. (2022). Distinct gene clusters drive formation of ferrosome organelles in bacteria. Nature, 606, 160-164. https://doi.org/10.1038/s41586-022-04741-x [ Links ]

Greening, C. & Lithgow, T. (2020). Formation and function of bacterial organelles. Nature Reviews Microbiology, 18, 677-689. https://doi.org/10.1038/s41579-020-0413-0 [ Links ]

Gruber, A. (2019). What’s in a name? How organelles of endosymbiotic origin can be distinguished from endosymbionts. Microbial Cell, 6, 123. https://doi.org/10.15698/mic2019.02.668 [ Links ]

Grünberg, K., Müller, E. C., Otto, A., Reszka, R., Linder, D., Kube, M., Reinhardt, R. & Schüler, D. (2004). Biochemical and proteomic analysis of the magnetosome membrane in Magnetospirillum gryphiswaldense. Applied and Environmental Microbiology, 70, 1040-1050. https://doi.org/10.1128/AEM.70.2.1040-1050.2004 [ Links ]

Guerrero, R. (2001). Bergey’s manuals and the classification of prokaryotes. International Microbiology, 4, 103-110. https://doi.org/10.1007/s101230100021 [ Links ]

Hauska, G., Schoedl, T., Remigy, H. & Tsiotis, G. (2001). The reaction center of green sulfur bacteria. Biochimica et Biophysica Acta (BBA)-Bioenergetics, 1507, 260-277. https://doi.org/10.1016/S0005-2728(01)00200-6 [ Links ]

Havemann, G. D. & Bobik, T. A. (2003). Protein content of polyhedral organelles involved in coenzyme B12-dependent degradation of 1, 2-propanediol in Salmonella enterica serovar Typhimurium LT2. Journal of Bacteriology, 185, 5086-5095. https://doi.org/10.1128/jb.185.17.5086-5095.2003 [ Links ]

Heitz, E. (1936). Untersuchungen über den Bau der Plastiden. I. Die gerichteten Chlorophyllscheiben der Chloroplasten. Planta, 26, 134-163. https://www.jstor.org/stable/23356852 [ Links ]

Huber, S. T., Terwiel, D., Evers, W. H., Maresca, D. & Jakobi, A. J. (2023). Cryo-EM structure of gas vesicles for buoyancy-controlled motility. Cell, 186, 975-986. https://doi.org/10.1016/j.cell.2023.01.041 [ Links ]

Huokko, T., Ni, T., Dykes, G. F., Simpson, D. M., Brownridge, P., Conradi, F. D., Beynon, R. J., Nixon, P. J., Mullineaux, C. W., Zhang, P. & Liu, L. N. (2021). Probing the biogenesis pathway and dynamics of thylakoid membranes. Nature Communications, 12, 3475. https://doi.org/10.1038/s41467-021-23680-1 [ Links ]

Jensen, T. E. & Bowen, C. C. (1961). Organization of the centroplasm in Nostoc pruniforme. Proceedings of the Iowa Academy of Science, 68, 86-89. https://scholarworks.uni.edu/pias/vol68/iss1/11 [ Links ]

Jin, X., Lee, J. E., Schaefer, C., Luo, X., Wollman, A. J., Payne-Dwyer, A. L., Tian, T., Zhang, X., Chen, X., Li, Y., McLeish, T, C, B., Leake, M. C. & Bai, F. (2021). Membraneless organelles formed by liquid-liquid phase separation increase bacterial fitness. Science Advances, 7, eabh2929. https://doi.org/10.1126/sciadv.abh2929 [ Links ]

Keeling, P. J., McCutcheon, J. P. & Doolittle, W. F. (2015). Symbiosis becoming permanent: survival of the luckiest. Proceedings of the National Academy of Sciences, 112, 10101-10103. https://doi.org/10.1073/pnas.1513346112 [ Links ]

Kerfeld, C.A.,Aussignargues,C., Zarzycki, J., Cai, F. & Sutter, M. (2018). Bacterial microcompartments. Nature Reviews Microbiology, 16, 277-290. https://doi.org/10.1038/nrmicro.2018.10 [ Links ]

Kerfeld, C.A., Sawaya, M. R., Tanaka, S., Nguyen, C.V., Phillips, M., Beeby, M. & Yeates, T. O. (2005). Protein structures forming the shell of primitive bacterial organelles. Science, 309, 936-938. https://doi.org/10.1126/science.1113397 [ Links ]

Kiani, B., Faivre, D. & Klumpp, S. (2015). Elastic properties of magnetosome chains. New Journal of Physics, 17, 043007. https://doi.org/10.1088/1367-2630/17/4/043007 [ Links ]

Klumpp, S. & Faivre, D. (2016). Magnetotactic bacteria: magnetic navigation on the microscale. The European Physical Journal Special Topics, 225, 2173-2188. https://doi.org/10.1140/epjst/e2016-60055-y [ Links ]

Kobayashi,A., Takayama, Y., Hirakawa, T., Okajima, K., Oide, M., Oroguchi, T., Inui, Y., Yamamoto, M., Matsunaga, S. & Nakasako, M. (2021). Common architectures in cyanobacteria Prochlorococcus cells visualized by X-ray diffraction imaging using X-ray free electron laser. Scientific Reports, 11, 3877. https://doi.org/10.1038/s41598-021-83401-y [ Links ]

Komeili, A., Li, Z., Newman, D. K. & Jensen, G. J. (2006). Magnetosomes are cell membrane invaginations organized by the actin-like protein MamK. Science, 311, 242-245. https://doi.org/10.1126/science.1123231 [ Links ]

Kushkevych, I., Procházka, V., Vítězová, M., Dordević, D.,Abd El-Salam, M. & Rittmann, S. K. M. (2024). Anoxygenic photosynthesis with emphasis on green sulfur bacteria and a perspective for hydrogen sulfide detoxification of anoxic environments. Frontiers in Microbiology, 15, 1417714. https://doi.org/10.3389/fmicb.2024.1417714 [ Links ]

Lin, W., Zhang, W., Paterson, G. A., Zhu, Q., Zhao, X., Knight, R., Bazylinski, D. A., Roberts, A. P. & Pan, Y. (2020). Expanding magnetic organelle biogenesis in the domain Bacteria. Microbiome, 8, 1-13. https://doi.org/10.1186/s40168-020-00931-9 [ Links ]

Lindsay, M. R.,Webb, R. I. & Fuerst, J.A. (1997). Pirellulosomes: a new type of membrane-bounded cell compartment in planctomycete bacteria of the genus Pirellula. Microbiology, 143, 739-748. https://doi.org/10.1099/00221287-143-3-739 [ Links ]

Lindsay, M. R., Webb, R. I., Strous, M., Jetten, M. S., Butler, M. K., Forde, R. J. & Fuerst, J. A. (2001). Cell compartmentalisation in planctomycetes: novel types of structural organisation for the bacterial cell. Archives of Microbiology, 175, 413-429. https://doi.org/10.1007/s002030100280 [ Links ]

Liu, P., Zheng, Y., Zhang, R., Bai, J., Zhu, K., Benzerara, K., Menguy, N., Zhao, X., Roberts, A. P., Pan, Y. & Li, J. (2023). Key gene networks that control magnetosome biomineralization in magnetotactic bacteria. National Science Review, 10, nwac238. https://doi.org/10.1093/nsr/nwac238 [ Links ]

Lower, B. H. & Bazylinski, D. A. (2013). The bacterial magnetosome: a unique prokaryotic organelle. Journal of Molecular Microbiology and Biotechnology, 23, 63-80. https://doi.org/10.1159/000346543 [ Links ]

Lundin, A. P., Stewart, K. L., Stewart, A. M., Herring, T. I., Chowdhury, C. & Bobik, T. A. (2020). Genetic characterization of a glycyl radical microcompartment used for 1, 2-propanediol fermentation by uropathogenic Escherichia coli CFT073. Journal of Bacteriology, 202, 10-1128. https://doi.org/10.1128/JB.00017-20 [ Links ]

MacGregor-Chatwin, C., Jackson, P. J., Sener, M., Chidgey, J. W., Hitchcock, A., Qian, P., Mayneord, G. E., Johnson, M. P., Luthey-Schulten, Z., Dickman, M. J., Scanlan, D. J. & Hunter, C. N. (2019). Membrane organization of photosystem I complexes in the most abundant phototroph on Earth. Nature Plants, 5, 879-889. https://doi.org/10.1038/s41477-019-0475-z [ Links ]

Maier, S. & Murray, R. G. E. (1965). The fine structure of Thioploca ingrica and a comparison with Beggiatoa. Canadian Journal of Microbiology, 11, 645-655. https://doi.org/10.1139/m65-087 [ Links ]

Maier, S., Völker, H., Beese, M. & Gallardo, V. A. (1990). The fine structure of Thioploca araucae and Thioploca chileae. Canadian Journal of Microbiology, 36, 438-448. https://doi.org/10.1139/m90-077 [ Links ]

Maki, J. S. (2013). Bacterial intracellular sulfur globules: structure and function. Journal of Molecular Microbiology and Biotechnology, 23, 270-280. https://doi.org/10.1159/000351335 [ Links ]

Maratea, D. & Blakemore, R. P. (1981). Aquaspirillum magnetotacticum sp. nov., a magnetic spirillum. International Journal of Systematic and Evolutionary Microbiology, 31, 452-455. https://doi.org/10.1099/00207713-31-4-452 [ Links ]

Mareš, J., Strunecký, O., Bučinská, L. & Wiedermannová, J. (2019). Evolutionary patterns of thylakoid architecture in cyanobacteria. Frontiers in Microbiology, 10, 277. https://doi.org/10.3389/fmicb.2019.00277 [ Links ]

Masó-Martínez, M., Bond, J., Okolo, C. A., Jadhav, A. C., Harkiolaki, M., Topham, P. D. & Fernández-Castané, A. (2024). An integrated approach to elucidate the interplay between iron uptake dynamics and magnetosome formation at the single-cell level in Magnetospirillum gryphiswaldense. ACS Applied Materials & Interfaces, 16, 62557−62570. https://doi.org/10.1021/acsami.4c15975 [ Links ]

Menke, W. (1960). Das all gemeine bauprinzip des lamellar systems der chloroplasten. Experientia, 16, 537-538. https://doi.org/10.1007/BF02158442 [ Links ]

Menke, W. (1961a). Über die Chloroplasten von Anthoceros punctatus: (5. Mitteilung zur Entwicklungsgeschichte der Plastiden). Zeitschrift für Naturforschung B, 16, 334-336. https://doi.org/10.1515/znb-1961-0508 [ Links ]

Menke, W. (1961b) Uber das lamellar system des chromatoplasmas von cyanophyceen. Zeitschrift für Naturforschung B. 16, 543-546. https://doi.org/10.1515/znb-1961-0808 [ Links ]

Miller, L. C., Martin, D. S., Liu, L. N. & Canniffe, D. P. (2020). Composition, organisation and function of purple photosynthetic machinery. En: Wang, Q. (ed). Microbial photosynthesis. (pp. 73-114). Singapore Pte: Springer Nature Ltd. https://doi.org/10.1007/978-981-15-3110-1 [ Links ]

Moss III, F. R., Shuken, S. R., Mercer, J. A., Cohen, C. M., Weiss, T. M., Boxer, S. G. & Burns, N. Z. (2018). Ladderane phospholipids form a densely packed membrane with normal hydrazine and anomalously low proton/hydroxide permeability. Proceedings of the National Academy of Sciences, 115, 9098-910. https://doi.org/10.1073/pnas.1810706115 [ Links ]

Mühlethaler, K. & Frey-Wyssling, A. (1959). Entwicklung struktur der proplastiden. The Journal of Cell Biology, 6, 507-512. https://doi.org/10.1083/jcb.6.3.507 [ Links ]

Mullineaux, C. W. & Liu, L. N. (2020). Membrane dynamics in phototrophic bacteria. Annual Review of Microbiology, 74, 633-654. https://doi.org/10.1146/annurev-micro-020518-120134 [ Links ]

Murat, D., Byrne, M. E. & Komeili, A. (2010). Cell Biology of prokaryotic organelles. Cold Spring Harbor Perspectives in Biology, 2, a000422. https://doi.org/10.1101/cshperspect.a000422 [ Links ]

Neumann, S., Wessels, H. J., Rijpstra, W. I. C., Sinninghe Damsté, J. S., Kartal, B., Jetten, M. S. & van Niftrik, L. (2014). Isolation and characterization of a prokaryotic cell organelle from the anammox bacterium Kuenenia stuttgartiensis. Molecular Microbiology, 94, 794-802. https://doi.org/10.1111/mmi.12816 [ Links ]

Nickelsen, J. & Zerges, W. (2013). Thylakoid biogenesis has joined the new era of bacterial cell biology. Frontiers in Plant Science, 4, 458. https://doi.org/10.3389/fpls.2013.00458 [ Links ]

Nicolson, G. L. & Schmidt, G. L. (1971). Structure of the Chromatium sulfur particle and its protein membrane. Journal of Bacteriology, 105, 1142-1148. https://doi.org/10.1128/jb.105.3.1142-1148.1971 [ Links ]

Noble, J. M., Lubieniecki, J., Savitzky, B. H., Plitzko, J., Engelhardt, H., Baumeister, W. & Kourkoutis, L. F. (2018). Connectivity of centermost chromatophores in Rhodobacter sphaeroides bacteria. Molecular Microbiology, 109, 812-825. https://doi.org/10.1111/mmi.14077 [ Links ]

Oborník, M. (2019). In the beginning was the word: How terminology drives our understanding of endosymbiotic organelles. Microbial Cell, 6,134. https://doi.org/10.15698/mic2019.02.669 [ Links ]

Osorio, C. (2017). Sobre el origen del término bacteria: una paradoja semántica. Revista Chilena de Infectología, 34, 265-269. http://dx.doi.org/10.4067/S0716-10182017000300011 [ Links ]

Pardee, A. B., Schachman, H. K. & Stanier, R. Y. (1952). Chromatophores of Rhodospirillum rubrum. Nature, 169, 282-283. https://doi.org/10.1038/169282a0 [ Links ]

Pedersen, M. Ø., Underhaug, J., Dittmer, J., Miller, M. & Nielsen, N. C. (2008). The three-dimensional structure of CsmA: a small antenna protein from the green sulfur bacterium Chlorobium tepidum. FEBS Letters, 582, 2869-2874. https://doi.org/10.1016/j.febslet.2008.07.020 [ Links ]

Perez-Boerema, A., Engel, B. D. & Wietrzynski, W. (2024). Evolution of thylakoid structural diversity. Annual Review of Cell and Developmental Biology, 40, 169-193. https://doi.org/10.1146/annurev-cellbio-120823-022747 [ Links ]

Pfeiffer, D., Toro-Nahuelpan, M., Awal, R. P., Müller, F. D., Bramkamp, M., Plitzko, J. M. & Schüler, D. (2020). A bacterial cytolinker couples positioning of magnetic organelles to cell shape control. Proceedings of the National Academy of Sciences, 117, 32086-32097. https://doi.org/10.1073/pnas.2014659117 [ Links ]

Pinos, S., Pontarotti, P., Raoult, D., Baudoin, J. P. & Pagnier, I. (2016). Compartmentalization in PVC super-phylum: evolution and impact. Biology Direct, 11, 1-12. https://doi.org/10.1186/s13062-016-0144-3 [ Links ]

Porter, J. R. (1976). Antony van Leeuwenhoek: tercentenary of his discovery of bacteria. Bacteriological Reviews, 40, 260-269. https://doi.org/10.1128/br.40.2.260-269.1976 [ Links ]

Rae, B. D., Long, B. M., Badger, M. R. & Price, G. D. (2013). Functions, compositions, and evolution of the two types of carboxysomes: polyhedral microcompartments that facilitate CO2 fixation in cyanobacteria and some proteobacteria. Microbiology and Molecular Biology Reviews, 77, 357-379. https://doi.org/10.1128/mmbr.00061-12 [ Links ]

Raschdorf, O., Bonn, F., Zeytuni, N., Zarivach, R., Becher, D. & Schüler, D. (2018). A quantitative assessment of the membrane-integral sub-proteome of a bacterial magnetic organelle. Journal of Proteomics, 172, 89-99. https://doi.org/10.1016/j.jprot.2017.10.007 [ Links ]

Rast, A., Schaffer, M., Albert, S., Wan, W., Pfeffer, S., Beck, F., Plitzko, M. J., Nickelsen, J. & Engel, B. D. (2019). Biogenic regions of cyanobacterial thylakoids form contact sites with the plasma membrane. Nature Plants, 5, 436-446. https://doi.org/10.1038/s41477-019-0399-7 [ Links ]

Remsen, C. C. (1982). Structural attributes of membranous organelles in bacteria. International Review of Cytology, 76, 195-223. https://doi.org/10.1016/S0074-7696(08)61791-X [ Links ]

Sanapala, P. & Pola, S. (2021). Understanding the cell organization in Planctomycetes. En: Villa, T. G., de Miguel Bouzas, T. (eds) Developmental biology in prokaryotes and lower eukaryotes. (pp. 229-248). Cham: Springer, https://doi.org/10.1007/978-3-030-77595-7_10 [ Links ]

Schachman, H. K., Pardee, A. B. & Stanier, R.Y. (1952). Studies on the macromolecular organization of microbial cells. Archives of Biochemistry and Biophysics, 38, 245-260. https://doi.org/10.1016/0003-9861(52)90029-5 [ Links ]

Scheuring, S., Nevo, R., Liu, L. N., Mangenot, S., Charuvi, D., Boudier, T., Prima, V., Hubert, P., Sturgis, J. N. & Reich, Z. (2014). The architecture of Rhodobacter sphaeroides chromatophores. Biochimica et Biophysica Acta (BBA)-Bioenergetics, 1837, 1263-1270. https://doi.org/10.1016/j.bbabio.2014.03.011 [ Links ]

Schrader, M., Godinho, L. F., Costello, J. L. & Islinger, M. (2015). The different facets of organelle interplay-an overview of organelle interactions. Frontiers in Cell and Developmental Biology, 3, 56. https://doi.org/10.3389/fcell.2015.00056 [ Links ]

Schüler, D. (2004). Molecular analysis of a subcellular compartment: the magnetosome membrane in Magnetospirillum gryphiswaldense. Archives of Microbiology, 181, 1-7. https://doi.org/10.1007/s00203-003-0631-7 [ Links ]

Schulz, H. N., Brinkhoff, T., Ferdelman, T. G., Mariné, M. H., Teske, A. & Jørgensen, B. B. (1999). Dense populations of a giant sulfur bacterium in Namibian shelf sediments. Science, 284, 493-495. https://doi.org/10.1126/science.284.5413.493 [ Links ]

Scott, K. M., Harmer, T. L., Gemmell, B. J., Kramer, A. M., Sutter, M., Kerfeld, C. A., Barber, K. S., Bari, S., Boling, J. W., Campbell, C. P., Gallard-Gongora, J. F., Jackson, J. K., Lobos,A., Mounger, J. M., Radulovic, P. W., Sanson, J. M., Schmid, S., Takieddine, C., Warlick, K. F., Whittaker, R. & Whittaker, R. (2020). Ubiquity and functional uniformity in CO2 concentrating mechanisms in multiple phyla of Bacteria is suggested by a diversity and prevalence of genes encoding candidate dissolved inorganic carbon transporters. FEMS Microbiology Letters, 367, fnaa106. https://doi.org/10.1093/femsle/fnaa106 [ Links ]

Seo, D., Tomioka, A., Kusumoto, N., Kamo, M., Enami, I. & Sakurai, H. (2001). Purification of ferredoxins and their reaction with purified reaction center complex from the green sulfur bacterium Chlorobium tepidum. Biochimica et Biophysica Acta (BBA)-Bioenergetics, 1503, 377-384. https://doi.org/10.1016/S0005-2728(00)00245-0 [ Links ]

Seufferheld, M., Vieira, M. C., Ruiz, F. A., Rodrigues, C. O., Moreno, S. N. & Docampo, R. (2003). Identification of organelles in bacteria similar to acidocalcisomes of unicellular eukaryotes. Journal of Biological Chemistry, 278, 29971-29978. https://doi.org/10.1111/10.1074/jbc.M304548200 [ Links ]

Shimakawa, G. (2023). Electron transport in cyanobacterial thylakoid membranes: are cyanobacteria simple models for photosynthetic organisms?. Journal of Experimental Botany, 74, 3476-3487. https://doi.org/10.1093/jxb/erad118 [ Links ]

Shiratori, T., Suzuki, S., Kakizawa, Y. & Ishida, K. I. (2019). Phagocytosis-like cell engulfment by a planctomycete bacterium. Nature Communications, 10, 5529. https://doi.org/10.1038/s41467-019-13499-2 [ Links ]

Shively, J. M., Ball, F., Brown, D. H. & Saunders, R. E. (1973). Functional organelles in prokaryotes: polyhedral inclusions (carboxysomes) of Thiobacillus neapolitanus. Science, 182, 584-586. https://doi.org/10.1126/science.182.4112.584 [ Links ]

Sinninghe-Damsté, J. S., Strous, M., Rijpstra, W. I. C., Hopmans, E. C., Geenevasen, J.A., Van Duin, A. C.T., van Niftrik, L.A. & Jetten, M. S. (2002). Linearly concatenated cyclobutane lipids form a dense bacterial membrane. Nature, 419, 708-712. https://doi.org/10.1038/nature01128 [ Links ]

Staehelin, L.A. (2003). Chloroplast structure: from chlorophyll granules to supra-molecular architecture of thylakoid membranes. Photosynthesis Research, 76, 185-196. https://doi.org/10.1023/A:1024994525586 [ Links ]

Staehelin, L. A. & Paolillo, D. J. (2020). A brief history of how microscopic studies led to the elucidation of the 3D architecture and macromolecular organization of higher plant thylakoids. Photosynthesis Research, 145, 237-258. https://doi.org/10.1007/s11120-020-00782-3 [ Links ]

Staehelin, L. A., Golecki, J. R. & Drews, G. (1980). Supramolecular organization of chlorosomes (Chlorobium vesicles) and of their membrane attachment sites in Chlorobium limicola. Biochimica et Biophysica Acta (BBA)-Bioenergetics, 589, 30-45. https://doi.org/10.1016/0005-2728(80)90130-9 [ Links ]

Stanier, R. Y. & van Niel, C. B. (1962). The concept of a bacterium. Archiv für Mikrobiologie, 42, 17-35. https://doi.org/10.1007/BF00425185 [ Links ]

Stanier, R. Y., Kunisawa, R., Mandel, M. C. B. G. & Cohen-Bazire, G. (1971). Purification and properties of unicellular blue-green algae (order Chroococcales). Bacteriological Reviews, 35, 171-205. https://doi.org/10.1128/br.35.2.171-205.1971 [ Links ]

Strous, M., Fuerst, J. A., Kramer, E. H., Logemann, S., Muyzer, G., Van De Pas-Schoonen, K. T., Webb, R., Kuenen, J. G. & Jetten, M. S. (1999). Missing lithotroph identified as new planctomycete. Nature, 400, 446-449. https://doi.org/10.1038/22749 [ Links ]

Sutter, M., Boehringer, D., Gutmann, S., Günther, S., Prangishvili, D., Loessner, M. J., Stetter, K. O., Weber-Ban, E. & Ban, N. (2008). Structural basis of enzyme encapsulation into a bacterial nanocompartment. Nature Structural & Molecular Biology, 15, 939-947. https://doi.org/10.1038/nsmb.1473 [ Links ]

Tanaka, S., Kerfeld, C.A., Sawaya, M. R., Cai, F., Heinhorst, S., Cannon, G. C. & Yeates, T. O. (2008). Atomic-level models of the bacterial carboxysome shell. Science, 319, 1083-1086. https://doi.org/10.1126/science.115145 [ Links ]

Thiel, V., Tank, M. & Bryant, D. A. (2018). Diversity of chlorophototrophic bacteria revealed in the omics era. Annual Review of Plant Biology, 69, 21-49. https://doi.org/10.1146/annurev-arplant-042817-040500 [ Links ]

Toro-Nahuelpan, M., Müller, F. D., Klumpp, S., Plitzko, J. M., Bramkamp, M. & Schüler, D. (2016). Segregation of prokaryotic magnetosomes organelles is driven by treadmilling of a dynamic actin-like MamK filament. BMC Biology, 14, 1-24. https://doi.org/10.1186/s12915-016-0290-1 [ Links ]

Toro-Nahuelpan, M., Giacomelli, G., Raschdorf, O., Borg, S., Plitzko, J. M., Bramkamp, M., Schüler, D. & Müller, F. D. (2019). MamY is a membrane-bound protein that aligns magnetosomes and the motility axis of helical magnetotactic bacteria. Nature Microbiology, 4, 1978-1989. https://doi.org/10.1038/s41564-019-0512-8 [ Links ]

Tucker, J. D., Siebert, C. A., Escalante, M., Adams, P. G., Olsen, J. D., Otto, C., Stokes, D. & Hunter, C. N. (2010). Membrane invagination in Rhodobacter sphaeroides is initiated at curved regions of the cytoplasmic membrane, then forms both budded and fully detached spherical vesicles. Molecular Microbiology, 76, 833-847. https://doi.org/10.1111/j.1365-2958.2010.07153.x [ Links ]

Uchino, K., Saito, T., Gebauer, B. & Jendrossek, D. (2007). Isolated poly (3-hydroxybutyrate) (PHB) granules are complex bacterial organelles catalyzing formation of PHB from acetyl coenzyme A (CoA) and degradation of PHB to acetyl-CoA. Journal of Bacteriology, 189, 8250-8256. https://doi.org/10.1128/jb.00752-07 [ Links ]

Uebe, R. & Schüler, D. (2016). Magnetosome biogenesis in magnetotactic bacteria. Nature Reviews Microbiology, 14, 621-637. https://doi.org/doi:10.1038/nrmicro.2016.99 [ Links ]

Uebe, R., Junge, K., Henn, V., Poxleitner, G., Katzmann, E., Plitzko, J. M., Zarivach, R., Kasama, T., Wanner, G., Pósfai, M., Böttger, L., Matzanke, B. & Schüler, D. (2011). The cation diffusion facilitator proteins MamB and MamM of Magnetospirillum gryphiswaldense have distinct and complex functions, and are involved in magnetite biomineralization and magnetosome membrane assembly. Molecular Microbiology, 82, 818-835. https://doi.org/10.1111/j.1365-2958.2011.07863.x [ Links ]

Van Niftrik, L., Van Helden, M., Kirchen, S., Van Donselaar, E. G., Harhangi, H. R., Webb, R. I., Fuerst, J. A., Op den Camp, H. J. M., Jetten, M. S. M. & Strous, M. (2010). Intracellular localization of membrane-bound ATPases in the compartmentalized anammox bacterium ‘Candidatus Kuenenia stuttgartiensis’. Molecular Microbiology, 77, 701-715. https://doi.org/10.1111/j.1365-2958.2010.07242.x [ Links ]

van Teeseling, M. C., de Almeida, N. M., Klingl, A., Speth, D. R., Op den Camp, H. J., Rachel, R., Jetten, M. S. N. & van Niftrik, L. (2014). A new addition to the cell plan of anammox bacteria:“Candidatus Kuenenia stuttgartiensis”has a protein surface layer as the outermost layer of the cell. Journal of Bacteriology, 196, 80-89. https://doi.org/10.1128/JB.00988-13 [ Links ]

Volland, J. M., Gonzalez-Rizzo, S., Gros, O., Tyml, T., Ivanova, N., Schulz, F., Goudeau, D., Elisabeth, N. H., Nath, N., Udwary, D., Malmstrom, R. R., Guidi-Rontani, C., Bolte-Kluge, S., Davies, K. M., Jean, M. R., Mansot, J. L., Mouncey, N. J., Angert, E. R., Woyke, T., Date, S. D. & Date, S. V. (2022). A centimeter-long bacterium with DNA contained in metabolically active, membrane-bound organelles. Science, 376, 1453-1458. https://doi.org/10.1126/science.abb3634 [ Links ]

Vothknecht, U. C. & Westhoff, P. (2001). Biogenesis and origin of thylakoid membranes. Biochimica et Biophysica Acta (BBA)-Molecular Cell Research, 1541, 91-101. https://doi.org/10.1016/S0167-4889(01)00153-7 [ Links ]

Wältermann, M., Hinz, A., Robenek, H., Troyer, D., Reichelt, R., Malkus, U., Galla, H. J., Kalscheuer, R., Stöveken, T., von Landenberg, P. & Steinbüchel, A. (2005). Mechanism of lipid-body formation in prokaryotes: how bacteria fatten up. Molecular Microbiology, 55, 750-763. https://doi.org/10.1111/j.1365-2958.2004.04441.x [ Links ]

Wang, P., Li, J., Li, T., Li, K., Ng, P. C., Wang, S., Chriscoli, V., Basle, A., Marles-Wright, J., Zhang, Y. Z. & Liu, L. N. (2024). Molecular principles of the assembly and construction of a carboxysome shell. Science Advances, 10, eadr4227. https://doi.org/10.1126/sciadv.adr4227 [ Links ]

Weier, E. (1938). The structure of the chloroplast. The Botanical Review, 4, 497-530. https://doi.org/10.1007/BF02872548 [ Links ]

Woese, C. R. & Fox, G. E. (1977). Phylogenetic structure of the prokaryotic domain: the primary kingdoms. Proceedings of the National Academy of Sciences, 74, 5088-5090. https://doi.org/10.1073/pnas.74.11.5088 [ Links ]

Yang, M., Wenner, N., Dykes, G. F., Li, Y., Zhu, X., Sun, Y., Huang, F., Hinton, J. C. D. & Liu, L. N. (2022). Biogenesis of a bacterial metabolosome for propanediol utilization. Nature Communications, 13, 2920. https://doi.org/10.1038/s41467-022-30608-w [ Links ]

Yeates, T. O., Kerfeld, C. A., Heinhorst, S., Cannon, G. C. & Shively, J. M. (2008). Protein-based organelles in bacteria: carboxysomes and related microcompartments. Nature Reviews Microbiology, 6, 681-691. https://doi.org/10.1038/nrmicro1913 [ Links ]

Wurzbacher, C. E., Hammer, J., Haufschild, T., Wiegand, S., Kallscheuer, N. & Jogler, C. (2024). “Candidatus Uabimicrobium helgolandensis”-a planctomycetal bacterium with phagocytosis-like prey cell engulfment, surface-dependent motility, and cell division. Mbio, 15, e02044-24. https://doi.org/10.1128/mbio.02044-24 [ Links ]

Zamal, M. Y., Madireddi, S., Mekala, N. R., Chintalapati, V. R. & Subramanyam, R. (2024). Differential stability of bacterial photosynthetic apparatus of Rhodobacter alkalitolerans strain JA916T under alkaline and light environment. Frontiers in Microbiology, 15, 1360650. https://doi.org/10.3389/fmicb.2024.1360650 [ Links ]

Recibido: 23 de Enero de 2025; Aprobado: 14 de Agosto de 2025

Creative Commons License Este es un artículo publicado en acceso abierto bajo una licencia Creative Commons