


 text new page (beta)
 Spanish (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
 Cited by SciELO
 Similars in
SciELO

 Permalink


Introducción
El crecimiento radial de las especies arbóreas que habitan los ecosistemas forestales de todo el mundo se encuentra determinado en gran medida por la presencia y dominancia de factores ambientales, los cuales se encargan de moldear el crecimiento radial anual por medio de la formación de anillos anuales de crecimiento (Fritts, 1976; Speer, 2010).
En la actualidad, los anillos anuales de crecimiento de las especies arbóreas se han empleado como bioindicadores biológicos “proxy”, es decir, como fuentes indirectas para la obtención de información del ambiente donde estos crecen, asimismo, la información extraída de la variación en el grosor de los anillos de crecimiento, representan con un alto grado de confiabilidad el comportamiento de las fluctuaciones ocurridas a diferentes escalas temporales y espaciales en muchas regiones geográficas del mundo (Stahle, et al., 2016; Villanueva-Díaz J. , et al., 2018; Manzanilla-Quiñones, Aguirre-Calderón, Villanueva-Díaz, Martínez-Sifuentes, & Delgado-Valerio, 2021) por lo que, a este tipo de análisis, se les conoce como estudios dendrocronológicos.
Los estudios dendrocronológicos se han consolidado como una fuente valiosa y confiable para evaluar la relación entre el crecimiento radial y variables climáticas como precipitación y temperatura en muchas partes del mundo (Vejpustková & Čihák, 2019; Yang, et al., 2020; Manzanilla-Quiñones, Delgado-Valerio, & Molina-Sánchez, 2024). Lo que, ha permitido determinar con precisión el comportamiento histórico del clima, principalmente, la variabilidad de la precipitación (Stahle, et al., 2016; Villanueva-Díaz J. , et al., 2018; Carlón, Villanueva. D, Soto, Mendoza, & Macías, 2021), así como evaluar la influencia de fenómenos océano-atmosféricos de escala global, principalmente El Niño Oscilación del Sur (ENOS) sobre el crecimiento radial arbóreo (Stahle, et al., 2016; Carlón, Villanueva. D, Soto, Mendoza, & Macías, 2021), Asimismo, ha contribuido a la comprensión de la dinámica ecológica de los regímenes de intensidad y frecuencia del fuego presentes en las masas y rodales forestales, evaluación de la incidencia de plagas forestales (Cerano-Paredes, et al., 2019; Cervantes-Martínez, et al., 2019), así como el desarrollo de estrategias de prevención de desastres naturales como deslaves y derrumbes de montañas o cerros, los cuales representan un riesgo para la población rural circundante (De la Peña, Mendoza, Carlón-Allende, Macías-Vázquez, & Villanueva-Díaz, 2024; Vázquez-Selem, Franco-Ramos, Villanueva-Díaz, Cerano-Paredes, & Stahle, 2025).
La investigación de tipo dendrocronológica en México ha tenido un notorio avance significativo en los últimos 30 años (Carlón-Allende, De la Peña, Villanueva-Díaz, & Macías-Vázquez, 2025) no obstante, a pesar de este gran avance en la disciplina, aún existen muchos vacíos de información (áreas geográficas y especies arbóreas, principalmente latifoliadas) que no han sido evaluadas desde una perspectiva dendrocronológica (Acosta-Hernández, Pompa-García, & Camarero, 2017; Carlón-Allende, De la Peña, Villanueva-Díaz, & Macías-Vázquez, 2025) las cuales pueden y ayudarían a contribuir a un mejor entendimiento de la variabilidad hidroclimática de una región geográfica.
Debido a su posición geográfica, relieve y amplia diversidad de climas presentes, México es una nación que posee una gran riqueza biológica, con una alta presencia de organismos biológicos de flora y fauna endémicos y exclusivos al territorio nacional (Biodiversidad Mexicana, 2024). En el orden de las coníferas, específicamente, el género Pinus es considerado como uno de los géneros más diversos en nuestro país, las estimaciones actuales hacen mención de un 50% del total de taxas existentes a escala global, con una presencia marcada de 52 especies, dos subespecies, 14 variedades y cuatro formas (Perry, 1991). Asimismo, se tiene registro de 22 especies de pinos que son endémicas a la superficie nacional, esto último, permite clasificar a México, como un centro secundario de diversificación de estas especies a nivel mundial (Gernandt & Pérez de la Rosa, 2014).
Para el caso específico del estado de Michoacán de Ocampo, los estudios dendrocronológicos realizados a través del uso de anillos de crecimiento de especies arbóreas, específicamente en ejemplares pertenecientes a la familia Pinaceae corresponden a Abies religiosa Kunth Schltdl et Cham (Huante, Rincón, & Swetnam, 1991; Cerano-Paredes, et al., 2014; Carlón, Mendoza, Salicrup, Villanueva, & Lara, 2016), P. devoniana Lindl (Marlés, et al., 2015), P. pseudostrobus Lindl (Carlón, Mendoza, Salicrup, Villanueva, & Lara, 2016) y P. hartwegii Lindl (Carlón, Villanueva. D, Soto, Mendoza, & Macías, 2021; Manzanilla-Quiñones, Aguirre-Calderón, Villanueva-Díaz, Martínez-Sifuentes, & Delgado-Valerio, 2021) por lo que aún existen muchas especies de esta familia, que aún no han sido evaluadas desde un enfoque dendrocronológico.
P. rzedowskii Madrigal et Caballero y P. martinezii E. Larsen, son especies de pinos endémicas y en peligro o vías de extinción, ambas especies presentan poblaciones aisladas y tienen una distribución restringida y discontinua, limitada exclusivamente al polígono del estado de Michoacán (Delgado, Pinero, Chaos, Pérez, & Álvarez, 1999; Contreras-Bailón, et al., 2025). Afortunadamente, ambas especies se encuentran bajo protección legal por la Norma Oficial Mexicana 059 de la Secretaría de Medio Ambiente y Recursos Naturales (Semarnat, 2010) lo que, hasta cierto punto, garantiza su conservación en la naturaleza. Desde su descripción, han sido escasamente estudiadas, por lo que se desconocen diversos aspectos biológicos de estos taxa, entre ellos la señal de tipo dendrocronológica registrada en sus anillos de crecimiento. Por lo tanto, bajo este trasfondo, el presente estudio pretende evaluar la influencia de la variabilidad climática y del fenómeno ENOS sobre el crecimiento radial de Pinus rzedowskii y P. martinezii en dos sitios ubicados en el estado de Michoacán, México. Por lo anterior, se platearon los siguientes objetivos: 1) identificar la variable climática más limitante e influyente en el crecimiento radial de cada especie y 2) estimar la influencia del Índice Multivariado del Niño Oscilación del Sur (IME) en el crecimiento radial de las especies analizadas.
Materiales y métodos
Área de estudio
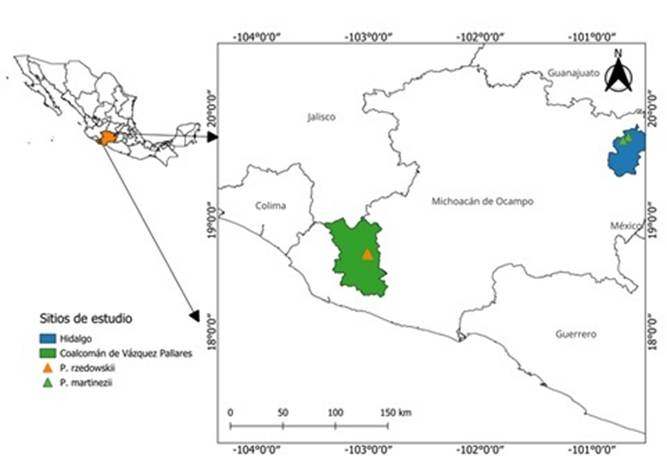
Los árboles estudiados de P. rzedowskii se distribuyen dentro del municipio de Coalcomán de Vázquez Pallares, Michoacán, entre las coordenadas geográficas 18° 42’ 9.4’’ y 18° 41’ 38.2’’ de latitud norte y 103° 0’ 41.5’’ y 103° 0’ 3.6’’ de longitud oeste, mientras que los árboles analizados de P. martinezii se encuentran dentro del municipio de Hidalgo, Michoacán, entre las coordenadas geográficas 19° 45’ 03.1’’ y 19° 42’ 57.1’’ de latitud norte y 100° 43' 16.3’' y 100° 40’ 16.9’’ de longitud oeste (Figura 1).
Descripción ambiental
Los árboles evaluados de P. rzedowskii crecieron en un clima semicálido subhúmedo AC(w2) con una temperatura promedio anual mayor a 18 °C y una temporada de lluvias marcada durante el verano (Cuervo-Robayo, et al., 2014). La altitud promedio del sitio de muestreo es de 2308 msnm con una exposición hacia el sureste y una pendiente promedio de 7.2%. El suelo dominante del lugar es de tipo Luvisol crómico (Lc) (INEGI, 2014), mientras que la vegetación dominante corresponde a Bosque de Pino (INEGI, 2021).
Los árboles estudiados de P. martinezii crecieron en un clima templado subhúmedo C(w2), con una temperatura promedio anual de 12 a 18 °C y una estación de lluvias durante el verano (Cuervo-Robayo, et al., 2014). La altitud promedio del sitio de muestreo es de 2439 msnm, con una exposición dominante sureste y una pendiente promedio de 18.6%. El tipo de suelo dominante corresponde a Andosol húmico (Th), mientras que los tipos de vegetación dominantes corresponden a Bosque de Pino-Encino y Vegetación Secundaria Arbórea de Bosque de Pino (INEGI, 2021).
Muestreo dendrocronológico
Para la toma de datos del presente estudio, se aplicó un muestreo dendrocronológico de tipo selectivo, el cual consistió en la selección de 22 árboles sanos de P. rzedowskii y 20 árboles de P. martinezii. La toma de datos dendrocronológicos se efectuó en el mes de abril de 2022 para P. rzedowskii, mientras que para P. martinezii, la toma de datos se efectuó en el mes de marzo de 2023. En el levantamiento de datos, se procedió a extraer tres núcleos de crecimiento por cada árbol analizado con ayuda de un taladro de Pressler marca Haglöf® de 50 cm de longitud y diámetro de 5.15 mm, así como también se midió el diámetro normal con una cinta métrica. Las muestras fueron tomadas a 1.3 m (diámetro normal) de altura del suelo, en dirección perpendicular a la pendiente. Posteriormente, las muestras se depositaron en popotes de papel perforados, esto con la finalidad de evitar su pudrición y posterior análisis en el laboratorio.
Procesamiento y fechado de muestras
Las muestras se colocaron sobre moldes de madera (portavirutas) para ser pulidas con ayuda de diferentes tipos de lijas (60 a 1200 granos por cm2), posteriormente fueron prefechadas y analizadas mediante técnicas dendrocronológicas tradicionales (Fritts, 1976).
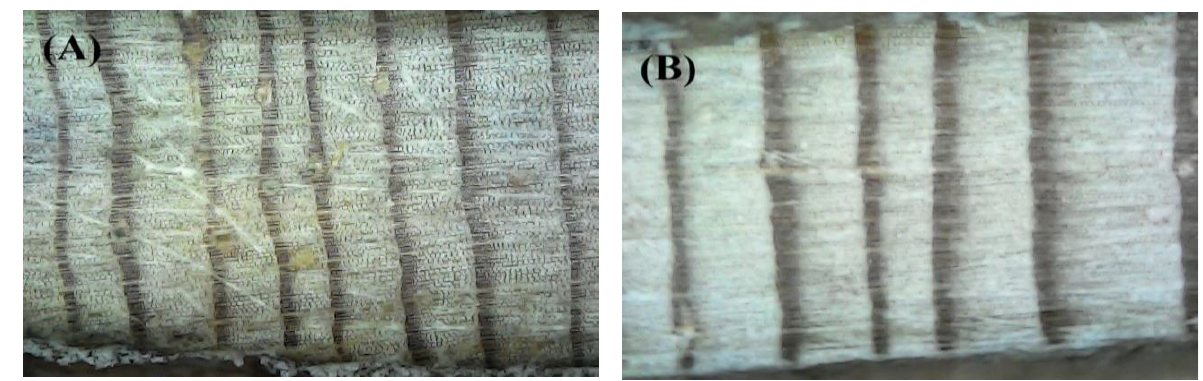
El fechado de las muestras se realizó mediante técnicas de fechado cruzado, lo que permitió asignar el año exacto de formación a cada anillo de crecimiento, así como identificar anomalías en el crecimiento como anillos falsos, dobles o perdidos en el tiempo (Fritts, 1976; Grissino-Mayer, 2001). La medición del ancho de anillo total de ambas especies se llevó a cabo con ayuda de un sistema de medición VELMEX® (Robinson & Evans, 1980). En la Figura 2 se pueden los observar los anillos de crecimiento de P. rzedowskii (A) y P. martinezii (B).
La calidad del fechado de anillos se efectuó en el programa Cofecha (Holmes, 1983; Grissino-Mayer, 2001) mediante correlaciones de Pearson de las mediciones de las muestras, en segmentos de 50 años, con traslapes cada 25 años (Holmes, 1983; Grissino-Mayer, 2001). La calidad y precisión del fechado de muestras se evaluó mediante el umbral de confianza de r > 0.328 (p < 0.01), donde para que un fechado sea estadísticamente confiable, debe presentar un valor de intercorrelación entre series mayor a 0.328 (Holmes, 1983; Grissino-Mayer, 2001).
Las series de crecimiento de anillo total de P. rzedowskii y P. martinezii se generaron en el programa Arstan, el cual se encargó de estandarizar las mediciones de ancho de anillo. El proceso de estandarización consistió en ajustar curvas exponenciales negativas a las series de crecimiento, con el objetivo de reducir la varianza entre las medidas de las series dendrocronológicas relacionadas con la edad y transformar la variación del grosor del ancho de anillos en índices adimensionales (Briffa & Jones, 1990). Posteriormente, se les aplico un Spline cubico suavizado de 128 años, conservando el 50% de la varianza y el 67% de la longitud de la serie de crecimiento (Cook, 1987); esto último, permite resaltar las tendencias del comportamiento del crecimiento radial de las especies. La aplicación de estos ajustes permitió destacar la señal de interés, eliminando factores biológicos del crecimiento radial y maximizando las variaciones climáticas de alta frecuencia (sequias, años húmedos, etc.) registradas en el grosor de los anillos de crecimiento (Fritts, 1976; Cook, 1987).
Análisis dendrocronológico
Los parámetros dendrocronológicos utilizados en la evaluación del potencial dendrocronológico de las series dendrocronológicas de P. rzedowskii y P. martinezii fueron intercorrelación entre series (ICS), sensibilidad media (SM), autocorrelación de primer orden (APO), variación del primer componente principal (VPC), señal expresada de la población (SEP) y relación señal-ruido (RSR).
Datos climáticos
La información de tipo climática se obtuvo de la plataforma del Centro de Investigación Científica y de Educación Superior de Ensenada (CICESE, 2024). Esta información correspondió a los valores mensuales de precipitación y temperatura (máxima, promedio y mínima) de las estaciones meteorológicas con registros mayores a 30 años y cercanas a los sitios de estudio. Para la especie P. rzedowskii, las estaciones meteorológicas seleccionadas fueron Aguililla, Apatzingán (SMN) y Coalcomán (SMN) mientras que, para P. martinezii, se seleccionaron las estaciones meteorológicas de Presa Pucuato, Presa Sabaneta y Huajumbaro. Los registros descargados de las estaciones meteorológicas cercanas a los sitios de estudio se presentan en la Tabla 1.
Tabla 1 Descripción de los registros climáticos descargados de las estaciones meteorológicas cercanas a los sitios de P. rzedowskii y P. martinezii.Table 1. Description of climate records downloaded from weather stations near the sites of P. rzedowskii and P. martinezii.
| Especie | Estación Meteorológica |
Clave Conagua |
Coordenadas Latitud (N) Longitud (W) |
Altitud (msnm) |
Variable | Periodo de actividad |
Datos completos (%) |
|---|---|---|---|---|---|---|---|
| P. rzedowskii | Agüilla | 16003 | N 18°43'59.78" | 896 | Precipitación | 1943-1982 | 99.6 |
| W 102°45'45.04" | Temperatura máxima | 1961-1982 | 68.5 | ||||
| Temperatura media | 1961-1982 | 68.5 | |||||
| Temperatura mínima | 1961-1982 | 68.5 | |||||
| Coalcomán (SMN) | 16154 | N 18°45'59.93" | 1044 | Precipitación | 1936-1988 | 100 | |
| W 103° 9'8.73" | Temperatura máxima | 1937-1988 | 98.2 | ||||
| Temperatura media | 1937-1988 | 98.2 | |||||
| Temperatura mínima | 1937-1988 | 98.2 | |||||
| Apatzingán (SMN) | 16007 | N 19° 5'18.80" W 102°21'21.01" | 326 | Precipitación | 1945-2015 | 100 | |
| Temperatura máxima | 1945-2015 | 99.6 | |||||
| Temperatura media | 1945-2015 | 99.6 | |||||
| Temperatura mínima | 1945-2015 | 99.6 | |||||
| P. martinezii | Presa Pucuato | 16097 | N 19°37'19.52" W 100°41'10.02" | 2490 | Precipitación | 1951-2018 | 90.1 |
| Temperatura máxima | 1951-2018 | 90.3 | |||||
| Temperatura media | 1951-2018 | 90.3 | |||||
| Temperatura mínima | 1951-2018 | 90.3 | |||||
| Presa Sabaneta | 16098 | N 19°36'35.83" W 100°40'9.68" | 2510 | Precipitación | 1953-2016 | 99.1 | |
| Temperatura máxima | 1953-2016 | 95.8 | |||||
| Temperatura media | 1953-2016 | 95.8 | |||||
| Temperatura mínima | 1953-2016 | 95.8 | |||||
| Huajumbaro | 16235 | N 19°40'44.88" | 2285 | Precipitación | 1984-2021 | 94.2 | |
| W 100°44'30.36" | Temperatura máxima | 1984-2021 | 94.4 | ||||
| Temperatura media | 1984-2021 | 94.4 | |||||
| Temperatura mínima | 1984-2021 | 94.4 |
Los registros faltantes de precipitación y temperatura máxima, promedio y mínima de las estaciones meteorológicas fueron estimados mediante la aplicación de medias móviles de orden n= 5 (Schulz, 1976). Debido al alto porcentaje de datos incompletos presentados por la estación meteorológica de Aguililla, se optó por descartar esta estación de los análisis posteriores.
Respuesta crecimiento y clima
Se obtuvieron los valores de los coeficientes de correlación entre las cronologías y los datos climáticos para cada especie mediante el uso del programa Dendroclim con un nivel de significancia de P<0.05 (Biondi & Waikul, DendroClim2002: a C++ program for statistical calibration of climate signals in tree-ring chronologies, 2004). El análisis se efectuó en ventanas temporales de 18 meses, es decir, se analizaron los seis meses previos al año de crecimiento y los 12 meses del año actual de crecimiento (Carlón, Villanueva. D, Soto, Mendoza, & Macías, 2021) con la finalidad evaluar meses y/o estaciones que más influyeron en el crecimiento radial de ambas especies.
Influencia de ENOS
Se descargaron los datos del Índice Multivariado del Niño oscilación del Sur (IME) de la plataforma National Oceanic Administration Agency (NOAA, 2024) el cual sirvió para estimar la influencia de IME sobre el crecimiento radial de rzedowskii y P. martinezii. El análisis se realizó en ventanas temporales de 18 meses, es decir, se analizaron los seis meses previos y los 12 meses actuales (Carlón, Villanueva. D, Soto, Mendoza, & Macías, 2021) mediante correlaciones Bootstrap en el programa Dendroclim con un nivel de significancia de p < 0.05 (Biondi & Waikul, DendroClim2002: a C++ program for statistical calibration of climate signals in tree-ring chronologies, 2004). De manera similar, se efectuaron análisis de correlación de Pearson entre los años considerados como extremos (valores de IAA < 0.9; IAA > 1.1) y los valores mensuales de IME de los periodos; 1979-2021 para P. rzedowskii y 1979-2022 para P. martinezii, con el objetivo de determinar años o periodos de influencia del fenómeno en sus diferentes fases; “El Niño” y “La Niña” sobre el crecimiento radial de las especies.
Resultados
Series de crecimiento de ancho de anillo
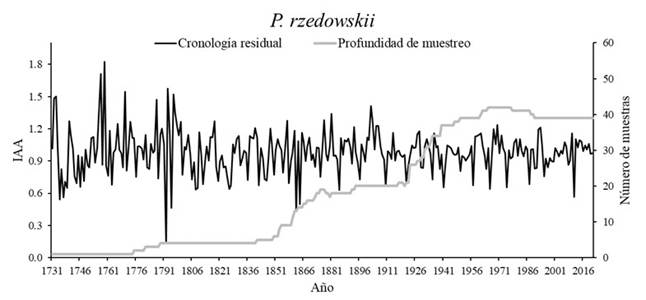
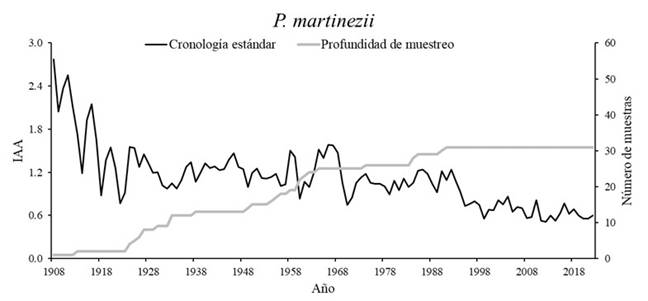
El número de núcleos de crecimiento fechados para la elaboración de la serie de crecimiento de ancho de anillo de P. rzedowskii fue de 45 muestras (68.2%) correspondiente a 18 árboles, mientras que para la realización de la serie de crecimiento de ancho de anillo de P. martinezii se fecharon 31 muestras (51.7%) correspondiente a 12 árboles. El porcentaje restante de las muestras fue descartado del análisis, debido a que presentaron problemas de crecimiento, lo que ocasionó que los valores de intercorrelación entre series fueran menores al umbral mínimo confiable (r < 0.328). Las series de crecimiento (núcleos de crecimiento) que se lograron fechar de manera correcta presentaron valores de intercorrelaciones entre series (ICS) de r= 0.40 (p < 0.01) con una extensión temporal que abarco el periodo de 1731-2021 para P. rzedowskii (Figura 3) y de r= 0.36 (p < 0.01) con una extensión temporal que abarco el periodo de 1908-2022 para P. martinezii (Figura 4).
Parámetros dendrocronológicos
Los resultados de los parámetros dendrocronológicos obtenidos para P. rzedowskii (cronología residual) y P. martinezii (cronología estándar) se describen en la Tabla 2.
Tabla 2 Parámetros dendrocronológicos calculados para P. rzedowskii y P. martinezii.Table 2. Dendrochronological parameters calculated for P. rzedowskii and P. martinezii.
| Parámetros dendrocronológicos | |||||
|---|---|---|---|---|---|
| Especie | SM | APO | VPC (%) | SEP (>0.85) | RSR (%) |
| P. rzedowskii | 0.20 | 0.31 | 15.65 | 1941-2021 | 1.97 |
| P. martinezii | 0.15 | 0.74 | 45.46 | 1930-2022 | 16.67 |
SM: Sensibilidad media, APO: Autocorrelación de primer orden, VPC: Variación del primer componente principal, SEP: Señal expresada de la población, RSR: Relación señal-ruido.
Influencia del clima
Los resultados del análisis de correlación entre los registros de precipitación mensual de 1945-2015 de la estación meteorológica Apatzingán y la cronología de P. rzedowskii indicaron una asociación significativa positiva (p < 0.05) durante los meses de enero (r= 0.34), febrero (r= 0.30) y marzo (r= 0.28) del año actual del crecimiento, del mismo modo, se encontró una asociación significativa negativa (r=-0.26, p < 0.05) para el mes de agosto del año anterior del crecimiento (Figura 5A).
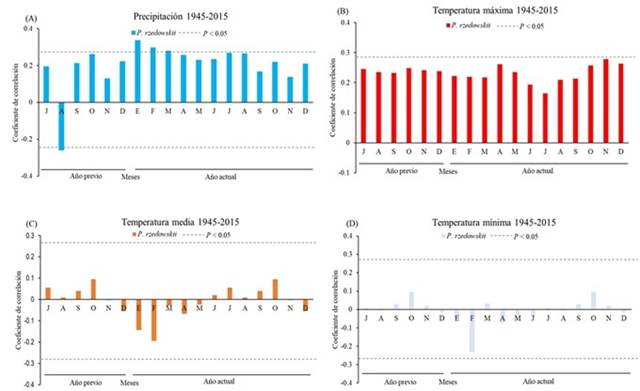
Figure 5 Correlation coefficients between the chronology of P. rzedowskii and monthly records of precipitation (A), maximum temperature (B), average temperature (C), and minimum temperature (D). The gray dashed line indicates the significance level of each variable.
Para el caso del análisis de la temperatura máxima, no se presentaron valores significativos de correlación en ninguno de los 18 meses evaluados del periodo 1945-2015 (r < 0.28, p > 0.05, Figura 5B). De la misma manera que, para la temperatura media, no se presentó correlación significativa, ya sea de tipo positiva o negativa (1945-2015; r < 0.20, p > 0.05, Figura 5C), lo mismo ocurrió para la temperatura mínima, donde no se identificó ninguna correlación significativa (1945-2015; r= -0.23; p > 0.05; Figura 5D).
Los resultados del análisis de correlación entre los registros de precipitación mensual de 1953-2016 de la estación meteorológica Presa Sabaneta y la cronología de P. martinezii indicaron una correlación significativa positiva (p < 0.05) durante los meses de enero (r= 0.30), abril (r= 0.38), junio (r= 0.39), agosto (r= 0.43) y octubre (r= 0.28) del año actual del crecimiento (Figura 6A).
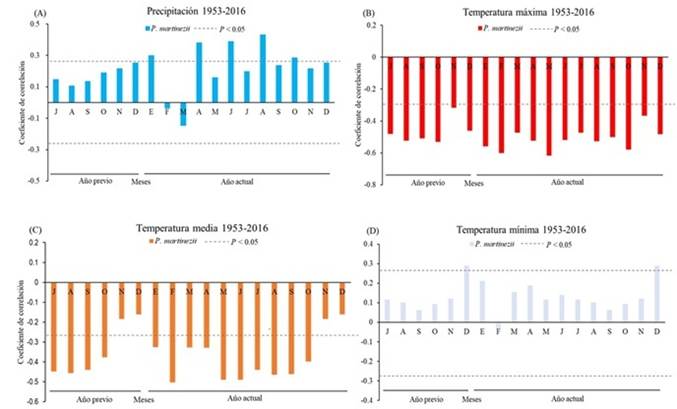
Figure 6 Correlation coefficients between the chronology of P. martinezii and monthly records of precipitation (A), maximum temperature (B), average temperature (C), and minimum temperature (D). The gray dotted line indicates the significance level of each variable.
Para el caso del análisis de la temperatura máxima, se presentaron valores de correlación negativos significativos entre la cronología de P. martinezii y los 18 meses de 1953-2016 (r > 0.30, p < 0.05), siendo los meses de febrero y mayo, los que presentaron los valores de correlación más altos (r= -0.60 y r= -0.62; Figura 6B).
Para la temperatura media, se identificó una correlación significativa negativa para los meses de junio, julio, agosto, septiembre y octubre del año anterior (1953-2016; r > 0.37; p < 0.05) del año anterior del crecimiento, así como una correlación negativa con los meses de enero a octubre del año actual de crecimiento de 1953-2016 (r > 0.32; p < 0.05; Figura 6C).
Para la temperatura mínima, se encontró una asociación positiva significativa para el mes de diciembre del año anterior y diciembre del año actual de crecimiento de 1953-2016 (r= 0.29; p < 0.05; Figura 6D).
Influencia de ENOS
Los resultados del análisis de correlación entre la cronología de P. rzedowskii y el índice IME indicaron una débil influencia positiva no significativa de IME sobre el crecimiento radial de la especie durante los 18 meses evaluados del periodo 1979-2021 (r < 0.22; p > 0.05; Figura 7). Por otra parte, los resultados del análisis de correlación entre los años extremos (Tabla 3) y los valores mensuales de IME indicaron una débil influencia negativa de IME sobre el crecimiento radial durante los meses de enero-diciembre de los años 1987, 1990, 1991, 1995, 1997, 1999, 2000, 2008 y 2011 (r= -0.15; p < 0.05), mientras que, para los años 1992, 1993, 2010 y 2011 se encontró una fuerte correlación positiva no significativa con el promedio mensual de enero-junio (r= 0.91; p > 0.05).
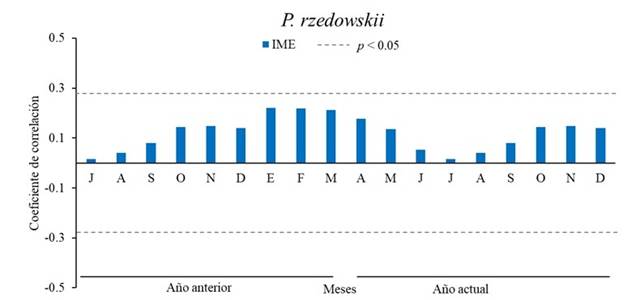
Figure 7 Correlation coefficients between the chronology of P. rzedowskii and the IEM index for the period 1979-2021.
Por otra parte, los resultados del análisis de correlación entre la cronología de P. martinezii y el índice IME indicaron una correlación positiva significativa (r > 0.26; p < 0.05) que se extendió desde diciembre del año anterior de crecimiento hasta diciembre del año actual de crecimiento del periodo 1979-2022 (excepto agosto; Figura 8). Por otra parte, los resultados del análisis de correlación entre los años extremos (Tabla 3) y los valores mensuales de IME indicaron una influencia moderada positiva significativa de IME sobre el crecimiento radial de la especie durante el promedio mensual de enero-mayo de 1979 y 1995-2022 (r= 0.47; p < 0.05) mientras que, para 1982, 1985, 1986, 1987, 1990 y 1992 se encontró una fuerte influencia negativa no significativa de IME durante junio-diciembre sobre el crecimiento radial de la especie (r= -0.74; p > 0.05).
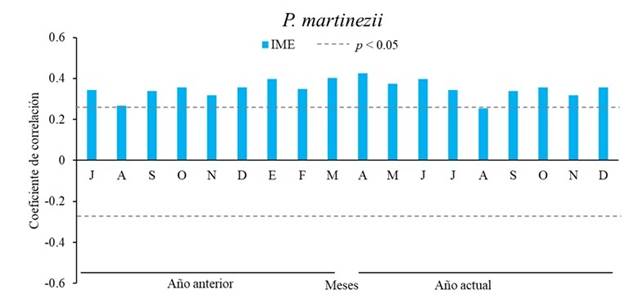
Figure 8 Correlation coefficients between the chronology of P. martinezii and the IEM index for the period 1979-2022.
Tabla 3 Años registrados como eventos extremos en P. rzedowskii y P. martinezii.Table 3. Years recorded as extreme events in P. rzedowskii and P. martinezii.
| Especie | Años (IAA < 0.9) | Años (IAA > 1.1) |
|---|---|---|
| P. rzedowskii | 1987, 1990, 1991, 1995, 1997, 1999, 2000, 2008 y 2011 | 1992, 1993, 2010 y 2011 |
| P. martinezii | 1979 y 1995-2022 | 1982, 1985, 1986, 1987, 1990 y 1992 |
IAA; Índice de ancho de anillo
Discusión
Los valores de intercorrelación entre series de 0.40 (P. rzedowskii) y 0.36 (P. martinezii) fueron mayores al umbral de 0.328 (p < 0.01) lo que indica que el fechado de anillos de crecimiento es estadísticamente confiable (Holmes, 1983; Grissino-Mayer, 2001). Los resultados de sensibilidad media de 0.20 obtenido en P. rzedowskii y 0.15 para P. martinezii son inferiores en comparación con lo reportado para P. devoniana (0.23) y P. hartwegii (0.24), ambas especies, distribuidas en Michoacán (Marlés, et al., 2015; Carlón, Villanueva. D, Soto, Mendoza, & Macías, 2021).
A pesar de que el suelo representa un factor determinante en las condiciones de la dinámica de crecimiento forestal (Ruíz-Ortíz, 2020), el crecimiento radial de P. rzedowskii y P. martinezii probablemente se vio influenciado por la combinación de factores como la competencia entre árboles y las prácticas silvícolas efectuadas durante el periodo de administración del bosque, lo que repercutió en la captación de la sensibilidad media de las especies evaluadas (Chadwick & Larson, 1996; Monárrez-González, Pérez-Verdín, López-González, Márquez-Linares, & González-Elizondo, 2018).
La variabilidad de la autocorrelación de primer orden obtenida en P. rzedowskii (0.31) indica que el crecimiento radial anual de la especie estuvo moderadamente influenciado por las condiciones climáticas dominantes del año previo (Fritts, 1976). Por su parte, el valor de autocorrelación de primer orden obtenida para P. martinezii fue muy alto (0.74), lo que indica una alta influencia de las condiciones climáticas dominantes del año previo sobre el año actual del crecimiento. Por lo que, acorde con estos resultados, P. rzedowskii presenta un valor aceptable de autocorrelación de primer orden, mientras que, P. martinezii presenta una alta correlación de primer orden que afecta su crecimiento radial anual, esto último, se considera como no deseado para realizar estudios de reconstrucción paleoclimática (Fritts, 1976; Constante, Villanueva, Cerano, Cornejo, & Valencia, 2009; Villanueva-Díaz J. , et al., 2018).
La variación del primer componente principal registrada en P. rzedowskii (15.65%) y P. martinezii (45.46%) representa la señal común de crecimiento entre los árboles muestreados. Este parámetro oscila entre 0 a 100%, donde valores altos indican una mayor señal climática común en el crecimiento radial (Briffa & Jones, 1990). Acorde con estos resultados, se puede decir que P. rzedowskii tiene un crecimiento más heterogéneo, con una baja capacidad de registrar las variaciones climáticas.
La relación señal-ruido obtenida en P. rzedowskii de 1.97 y P. martinezii de 16.67 representan la proporción de la señal deseada con respecto a los disturbios y otros factores ajenos con el comportamiento del clima, considerados como ruido (Fritts, 1976; Villanueva-Díaz J. , et al., 2018). De acuerdo con este parámetro, P. rzedowskii presenta una relación señal-ruido muy baja, caso contrario para P. martinezii, donde la relación señal-ruido de 16.67, considerada como alta, la cual pudiera deberse a la presencia de factores locales externos ajenos al clima, como la competencia entre árboles y las prácticas silvícolas realizadas en el sitio, factores que influyeron sobre el crecimiento de la especie.
Respuesta climática de las especies
Pese a que la distancia geográfica lineal entre P. rzedowskii y P. martinezii es de 235 km, se entiende que las condiciones ambientales donde crecen ambas especies son heterogéneas. Por lo tanto, los árboles de P. rzedowskii que se encuentran más cercanos a la costa (65 km de distancia lineal) presentan una respuesta clima-crecimiento radial distinta en comparación con los árboles de P. martinezii que se localizan en un sitio más continental (300 km de distancia lineal del mar), esto se puede explicar por la presencia de barreras geográficas, específicamente, cadenas montañosas, ubicadas en la Sierra Madre del Sur, las cuales modularían mediante la convergencia friccional entre las masas de aire frío y caliente, la cantidad de humedad proveniente del Océano Pacífico (García, 1974; Manzanilla-Quiñones, Aguirre-Calderon, Jiménez-Pérez, & Villanueva-Díaz, 2020) que llega a los sitios de estudio. Por lo tanto, a partir del análisis de las condiciones hidroclimáticas de los sitios de P. rzedowskii y P. martinezii, se puede afirmar que existe una diferenciación en la repuesta clima-crecimiento radial, similar con lo reportado para P. herrerae, P. durangensis, A. durangensis, Cupressus lusitanica, P. hartwegii, Picea mexicana, Pseudotsuga menziesii y A. vejari, especies que se distribuyen en un gradiente longitudinal (este-oeste) en el norte de México (Pompa-García, Camarero, & Vivar-Vivar, 2023).
Para el caso de P. rzedowskii, la variación de las temperaturas máxima, media y mínima de los 18 meses evaluados no influyeron sobre el crecimiento radial de la especie (1945-2015 r < 0.28, p > 0.05). La muy baja respuesta detectada entre el crecimiento radial y las temperaturas probablemente se debió a la presencia de factores ecológicos como la competencia y/o la intensidad del manejo forestal (practicas silvícolas), los cuales influyeron en la captación de la sensibilidad climática de la especie, esto último, ha sido corroborado en un bosque de Pinus patula Schl. Et Cham. en Puebla (Correa-Díaz, et al., 2025). Aunado a esto, la presencia de suelos fértiles, así como de las condiciones microambientales del sitio donde crecieron los árboles de P. rzedowskii, limitó hasta cierto punto en la formación de anillos sensibles (Fritts, 1976; Speer, 2010; Villanueva-Díaz, et al., 2016; Astudillo-Sánchez, Fowler, Villanueva-Díaz, Endara-Agramont, & Soria-Díaz, 2019).
La respuesta negativa significativa del crecimiento radial de P. rzedowskii con la precipitación de agosto (1945-2015; r= -0.26; p < 0.05) del año anterior se debió a que el aumento en la cantidad de lluvia recibida en ese mes, limito el crecimiento radial de la especie, por otra parte, la precipitación del año actual de crecimiento de enero (r= 0.34; p < 0.05), febrero (r= 0.30; p < 0.05) y marzo (r= 0.28; p < 0.05) de 1945-2015, al ser de baja intensidad, quedo almacenada en los primeros horizontes del suelo, para posteriormente, ser usada al inicio de la primavera, sumado a esto, la presencia de temperaturas estables influyeron en el proceso fisiológico del árbol (Biondi, Hartsough, & Galindo-Estrada, 2005).
Para el caso de P. martinezii, la variación de la temperatura máxima de 1953-2016 presentó una influencia negativa significativa sobre el crecimiento radial de la especie durante los 18 meses evaluados, específicamente, la influencia de los meses de febrero a mayo se considera como la más alta (r= -0.55; p < 0.05), por lo que, este periodo de influencia es similar con lo reportado por Cerano-Paredes et al. (2014) en A. religiosa del Parque Nacional Pico de Tancítaro, Michoacán durante enero-abril. Asimismo, Carlón et al. (2016) hallaron una respuesta negativa significativa de A. religiosa y P. pseudostrobus de la Reserva de la Biosfera Mariposa Monarca durante enero-mayo. De la misma manera, Villanueva-Díaz et al. (2018) encontraron una respuesta negativa significativa de la temperatura máxima de enero-junio sobre el crecimiento radial de P. oocarpa del Bosque la Primavera, Jalisco. Por lo tanto, se entiende que el aumento de la temperatura máxima invernal tiene un efecto negativo significativo sobre el crecimiento radial de estas especies, es decir, a mayor temperatura máxima registrada durante el invierno, menor crecimiento radial, lo que ocasiona un estrés fisiológico en el árbol, debido al incremento de la evapotranspiración y la pérdida de humedad en el suelo por el efecto de las altas temperaturas (Huang, et al., 2010; Zhou, Fei, Sherry, & Luo, 2012; Carlón, Mendoza, Salicrup, Villanueva, & Lara, 2016).
Para el caso de la temperatura media y mínima, la disminución de la temperatura media durante noviembre y diciembre del año anterior y actual del crecimiento (r= -0.17; p > 0.05) junto con el aumento de la temperatura mínima del mes de diciembre (r= 0.29; p < 0.05) favoreció el crecimiento radial de P. martinezii durante 1953-2016. Resultados similares han sido reportados por Huante et al. (1991) en A. religiosa de la Sierra Chincua, Michoacán y por Cerano-Paredes et al. (2014) en A. religiosa del Pico de Tancítaro, Michoacán. Lo que indica que el aumento de la temperatura media invernal de diciembre-febrero favorece el crecimiento radial de estas especies, distribuidas en el centro-occidente de Michoacán.
La respuesta positiva significativa del crecimiento radial de P. martinezii con la precipitación de abril-diciembre del año actual de crecimiento (1953-2016; r= 0.60; p < 0.05) es similar con lo reportado por Marlés et al. (2015) en P. pseudostrobus del oriente de Michoacán para abril. Esta respuesta del crecimiento radial de P. martinezii con la cantidad de precipitación registrada durante la temporada de lluvias difiere con lo reportado por la mayoría de los estudios realizados en México, los cuales señalan un patrón de respuesta entre el crecimiento radial y la precipitación estacional acumulada de noviembre-mayo, que se extiende desde el norte, centro y occidente de México (Stahle, et al., 2016; Villanueva-Díaz J. , et al., 2018; Osorio-Osorio, Astudillo-Sánchez, Villanueva-Díaz, Soria-Díaz, & Vargas-Tristán, 2020; Carlón, Villanueva. D, Soto, Mendoza, & Macías, 2021; Manzanilla-Quiñones, Aguirre-Calderón, Villanueva-Díaz, Martínez-Sifuentes, & Delgado-Valerio, 2021). Sin embargo, es importante mencionar que, al igual con lo reportado por Marles et al. (2015) en P. pseudostrobus, los árboles muestreados de P. martinezii se pueden clasificar como no potenciales para reconstrucción de precipitación acumulada, esto debido a la presencia de factores ajenos al clima que repercutieron en la captación de la señal climática.
Influencia de ENOS
A pesar de que la presencia del Niño Oscilación de Sur suele tener una influencia heterogénea contrastante sobre el crecimiento radial de las coníferas mexicanas (Villanueva-Díaz J. , et al., 2018; Astudillo-Sánchez, Fowler, Villanueva-Díaz, Endara-Agramont, & Soria-Díaz, 2019; Carlón, Villanueva. D, Soto, Mendoza, & Macías, 2021) su afectación sobre el crecimiento radial de P. rzedowskii fue muy baja (1979-2021; r < 0.22; p > 0.05). Resultados similares han sido reportados por Villanueva-Díaz et al. (2018) para P. oocarpa del Bosque la Primavera, en Jalisco. Lo que indica que la influencia de IME tiene una baja afectación en el crecimiento radial de las coníferas del centro-occidente de México, es decir, la presencia de IME no afecta de manera significativa la variabilidad hidroclimática de la región. Sin embargo, en este estudio se encontró que durante enero-junio de 1992 y 2010, se presentaron condiciones de alta humedad, producto de la influencia de la fase “La Niña”, favoreciendo el crecimiento radial de P. rzedowskii durante esos años. Aunado a esto, se sabe que el evento de humedad extrema registrado en 1992 se presentó desde el sur de Estados Unidos hasta el centro de México, afectando una superficie aproximada del 70% del país (Stahle, et al., 2016; Bravo, Azpra, Rodríguez, & Rodríguez, 2018). Además, el evento de 2010 correspondió a un episodio débil de “La Niña” registrado en P. oocarpa del occidente de México (Villanueva-Díaz J. , et al., 2018).
En el caso de P. martinezii, IME mostro una influencia positiva significativa sobre el crecimiento radial de la especie por los efectos de “La Niña”, específicamente, durante enero-mayo de 1979 y 1995-2022 (r= 0.47; p < 0.05) donde los años 1998, 1999, 2000, 2007, 2008 y 2011 coinciden con lo reportado por Villanueva-Díaz et al. (2018) en P. oocarpa del centro-occidente de México, siendo estos años considerados como episodios de “La Niña”, sin embargo, la presencia de “La Niña” en el sitio tuvo un efecto dipolar sobre la influencia del crecimiento radial de la especie, donde la ausencia de condiciones húmedas y frías ocasionaron una reducción en el crecimiento radial de P. martinezii, es decir, lo opuesto a lo esperado para la zona centro de México (Magaña, Vázquez, Pérez, & Pérez, 2003). Por otra parte, la influencia de IME durante junio-diciembre de 1986 y 1987 coincide con lo reportado por Villanueva-Díaz et al. (2018) en P. oocarpa del centro-occidente de México, siendo estos años, considerados como episodios de “El Niño”, donde, al igual que en la fase de “La Niña”, se presentó una dipolaridad de ENSO sobre el crecimiento radial de la especie, esto provocado por el aumento en la cantidad de precipitación acumulada durante junio-diciembre y al descenso de la temperatura máxima.
Conclusiones
Los árboles muestreados de P. rzedowskii presentan un crecimiento radial heterogéneo, con una baja capacidad para registrar las variaciones de temperatura y precipitación, así como de la influencia de ENSO, probablemente debido a la presencia de factores ecológicos ajenos al clima como el manejo forestal (prácticas silvícolas), tipo de suelo y las condiciones microambientales del sitio, que limitaron la formación de anillos sensibles, por lo cual, los árboles analizados no son aptos para efectuar reconstrucciones paleoclimáticas.
Para el caso de los árboles muestreados de P. martinezii, el aumento de la temperatura máxima invernal tiene un efecto negativo significativo sobre el crecimiento radial de la especie, es decir, a mayor temperatura máxima registrada durante el invierno, menor crecimiento radial, lo que ocasiona un estrés fisiológico en el árbol, debido al incremento de la evapotranspiración y la pérdida de humedad en el suelo por el efecto de las altas temperaturas.
Se presentó una dipolaridad de ENSO sobre el crecimiento radial de P. martinezii, donde episodios de “El Niño” provocaron un aumento en la precipitación acumulada de junio-diciembre, así como un descenso de la temperatura máxima de ese periodo, mientras que los episodios de “La Niña” ocasionaron condiciones secas y cálidas durante enero-mayo.
Esta dicotomía hallada en P. rzedowskii y P. martinezii sobre sus distintas respuestas climáticas y oceánicas es fundamental para planear futuras estrategias de manejo y conservación de ambas especies, las cuales presentan poblaciones pequeñas, fragmentadas y aisladas en Michoacán.

