


 nova página do texto(beta)
 Espanhol (pdf)
 Artigo em XML
 Referências do artigo

 Tradução automática
 Enviar este artigo por email
 Citado por SciELO
 Similares em
SciELO

 Permalink

INTRODUCCIÓN
México es el principal país productor y exportador de aguacate (Persea americana Mill.). En 2023 registró una producción de 2.97 millones de toneladas métricas y más de 1.3 t de fruta exportada, principalmente a EUA y Canadá. Las ganancias alcanzaron 3500 millones de dólares, beneficio que se refleja en toda la cadena agrocomercial (FAOSTAT 2023).
Los portainjertos de aguacate con raíces sanas y vigorosas obtienen con mayor eficacia los nutrientes necesarios para los cultivares con los que son injertados y favorecen la adaptación postrasplante y la productividad de los huertos comerciales (Barrientos et al. 2000, Peraza 2021). Sin embargo, existen complejos de hongos y pseudohongos patógenos de raíces que reducen su viabilidad entre el 60 y 100 % en la etapa de vivero. Las especies de hongos comúnmente reportadas, solas o en combinación, incluyen P. cinnamomi (Rands), Fusarium sp. (Link ex Grey), Rhizoctonia sp. (De Candolle), Verticillium (Nees), Pythium sp. (Dick) y Cylindrocladium sp. (Morgan), entre otras (Saltarén y Varón 1997, Truong et al. 2011, Ramírez y Morales 2013, Garbanzo y Coto 2017). Su diversidad y virulencia dependen de las características edáficas y agroecológicas de cada región productora. Exhiben una alta importancia económica por causar enfermedades y epidemias significativas en aguacate y en muchos cultivos hortícolas, frutales, ornamentales y forestales (Pegg y Brady 2002, Agrios 2005, Schroeder et al. 2013, Hernández y Brito 2014, de Cock et al. 2015).
El manejo sanitario convencional de complejos fungosos del suelo se basa principalmente en la fumigación con bromuro de metilo (CH3Br) y metam sodio (N-methil ditiocarbamato de sodio) (Nyoni et al. 2019, Rudolph et al. 2019), moléculas altamente tóxicas a la salud humana, perjudiciales para la fertilidad y contaminantes del suelo y el agua (Rudolph et al. 2015, 2019; Daneel et al. 2018, Ntalli et al. 2018). En este contexto, la biofumigación con extractos de especies botánicas representa un manejo alternativo de las enfermedades fungosas más compatible con la salud humana y la calidad del suelo; además, favorece la conservación e incremento de poblaciones microbianas benéficas, principalmente de Bacillus spp. (Cohn), y actinobacterias (Motisi et al. 2010, Wang et al. 2014, Barnes et al. 2020, Hanschen y Winkelmann 2020).
El aceite de neem, cuyo ingrediente activo es la azadiractina y se obtiene del árbol del neem (Azadirachta indica A. Juss.), se ha utilizado comúnmente para controlar plagas insectiles (Pijoan 2004, Lucantoni et al. 2006). Sin embargo, también se ha documentado su actividad in vitro contra fitopatógenos fungosos de importancia económica. La técnica del alimento envenenado es un procedimiento de rutina utilizado para evaluar la actividad antifúngica de aceites esenciales y consiste en evaluar el crecimiento o la viabilidad de los organismos en cajas de Petri con medio papa-dextrosa-agar (PDA) suplementado con los compuestos de interés (Geethanjali et al. 2023). En este ámbito, Keta et al. (2019) reportaron de 54.8 a 96.5 % de inhibición del crecimiento micelial de Aspergillus spp. (P. Micheli ex Haller), patógeno del arroz (Oryza sativa L.), con dosis de 5-15 mL/L de extracto etanólico de neem. Similarmente, Mossini et al. (2014) redujeron la esporulación de Penicillium verrucosum (Dierckx) y P. brevicompactum (Dierckx) en 82.6 y 80.09 % con aceite de neem a concentraciones de 0.12 y 0.50 %. Asimismo, Barros et al. (2014) demostraron que el macerado vegetativo y la mostaza de neem, aplicados a dosis de 1.5 g/m de suelo, también poseen actividad contra nemátodos fitopatógenos del género Meloidogyne (Goeldi), al limitar en 97 % las poblaciones de J2, mientras que con dosis de 4.8 y 9.4 g/m redujeron la densidad de agallas y huevecillos en 68.5 y 69-82.5 %, respectivamente. La esterilización química empobrece las poblaciones microbianas nativas asociadas a la capacidad de promover el crecimiento y el desarrollo de los suelos agrícolas. Por esta razón, la biofumigación con enmiendas orgánicas se propone como una opción ecológica para el control de enfermedades con origen en el suelo (Mocali et al. 2015). Por ejemplo, la incorporación de residuos de plantas que contienen glucosinolatos tiene un efecto biocida sobre distintos patógenos fungosos de cereales, incluido Gaeumannomyces graminis (Sacc.) von Arx & D.L. Olivier, y, en algunos casos, también puede preservar poblaciones importantes de comunidades microbianas benéficas (Kirkegaard et al. 2000, Mocali et al. 2015). Los objetivos de este estudio fueron: a) estudiar la etiología de la pudrición de raíces en portainjertos de aguacate nativo, P. americana var. drymifolia (Schltdl. & Cham.) Blake, asociada a hongos y pseudohongos en Tetela del Volcán, Morelos, México; b) evaluar la sensibilidad in vitro de los organismos causales al aceite de neem (PROGRANIC Nimicide 80), incluyendo la determinación de las DE50 y DE90, y c) evaluar el efecto biofumigante del aceite de neem incorporado en un sustrato orgánico convencional de uso local.
MATERIALES Y MÉTODOS
Área de estudio y material vegetativo
El experimento de campo se realizó de septiembre de 2021 a abril de 2024 en el vivero comercial de aguacate Los Dos Diamantes, en Tetela del Volcán, Morelos, México (18.851664, -98.736291 y 2085 msnm), con temperatura promedio de 24 ºC, precipitación media anual de 2300 mm y humedad relativa del 65 %. Los portainjertos experimentales se propagaron a partir de semillas de genotipos nativos cosechados en la región. Las muestras de raíces se obtuvieron de plantas de 10 meses de edad, injertadas con varetas del cultivar (cv.) ‘Hass’ por el método de incrustación (Izquierdo y Hosfield 1982). Las actividades biológicas se desarrollaron en el Laboratorio de Enfermedades de Frutales y Epidemiología-Lanref del Colegio de Postgraduados y en el Laboratorio Nacional de Investigación y Servicio Agroalimentario y Forestal de la Universidad Autónoma Chapingo.
Aislamiento e identificación cultural de hongos y pseudohongos
Se recolectaron muestras de raíces de 45 plantas injertadas con el cv. ‘Hass’ de 10 meses de edad; cinco fueron asintomáticas y 40 exhibieron marchitez, amarillamiento y necrosis radical (Fig. 1). Fragmentos de raíces de aproximadamente 1 cm de largo, obtenidos de ramificaciones independientes, se lavaron con agua corriente, se desinfestaron con hipoclorito de sodio (NaClO) al 1 % por 30 s y se lavaron con agua destilada estéril por 1 min. Posteriormente, se secaron con papel Sanitas (Fapsa, TI2250, Mexicali, B.C, México) estéril e incubaron a 27 ºC por ocho días en cajas de Petri con medios de cultivo harina de maíz-NARPH, adicionados con natamicina, ampicilina, rifampicina, pimaricina e himexazol, de acuerdo con Erwin y Ribeiro (1996) y PDA (Difco Laboratories, Detroit, Michigan, EUA) suplementado con ácido láctico (0.5 mL/L). Los organismos obtenidos a los diez días de edad y purificados por la técnica de punta de hifa (Pérez y García-Godos 2019) se identificaron preliminarmente con base en características culturales de las colonias y en morfométricas de hifas y estructuras reproductivas en medio PDA, utilizando las claves taxonómicas propuestas por Erwin y Ribeiro (1996), Barnett y Hunter (1998) y Cabral et al. (2012).
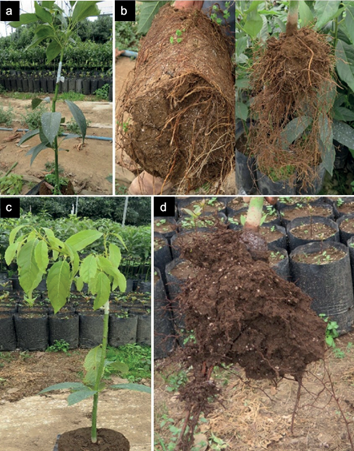
Fig. 1 Plantas de aguacate cv. ‘Hass’ (Persea americana) de 10 meses de edad, injertadas sobre portainjertos de raza mexicana (P. americana var. drymifolia) en un vivero comercial ubicado en Tetela del Volcán, Morelos, México. (a) Planta asintomática con follaje turgente y vigoroso, y (b) raíces sanas; (c) planta enferma que muestra amarillamiento y marchitez; y (d) necrosis radical asociada a hongos y pseudohongos del suelo.
Prueba de patogenicidad
De cada cultivo puro obtenido de hongos y pseudohongos se preparó un inóculo de acuerdo con el protocolo sugerido por Jemai et al. (2021), con modificaciones. Frascos de vidrio de 6 × 15 cm ancho-largo (W-L) con 50 g de semilla de Avena sativa L. var. Turquesa y 50 mL de agua destilada se esterilizaron dos veces en autoclave a 120 ºC por 1 h, con un periodo de reposo de 3 h entre cada esterilización. En cada uno se depositaron cinco discos de PDA de 5 mm de diámetro, con crecimiento fungoso de tres días de edad, y se incubaron por 30 días. La patogenicidad se verificó en plántulas de aguacate propagadas a partir de semillas de 30-40 g, provenientes del genotipo nativo ‘El Religioso’, localizado en Cuapexco, Puebla, México. Las semillas se desinfestaron con NaClO al 2 % por 5 min y se lavaron con agua destilada estéril. La siembra se realizó en charolas de plástico de 25 × 40 cm W-L con sustrato a base de musgo de turbera (Sphagnum sp.) (Kekkila DSM, Grupo INVECO, Zapopan, Jalisco, México) y perlita en proporción 2:1 y esterilizado en autoclave a 120 ºC por 3 h. Después de 40 días, las plántulas se trasplantaron a bolsas de polietileno con capacidad de 2.2 kg que contenían suelo combinado a base de tierra de monte y hoja de aguacate en descomposición en proporción 3:1 v/v esterilizado con metam sodio (33 % de ingrediente activo), a dosis de 100 mL/m2. Cuando las plantas alcanzaron 35 cm de altura y desarrollaron ocho hojas verdaderas, se inocularon con el método de sustrato infestado propuesto por Scandiani et al. (2011), con modificaciones. En cada contenedor se colocaron 3.0 g de semillas colonizadas adyacentes a la corona, a las cuales se les realizaron cinco punciones de 3.0 mm de profundidad con una aguja de disección desinfectada con alcohol al 70 %. Se inocularon ocho plantas por cada especie de microorganismo y cada prueba se repitió dos veces. El tratamiento testigo se inoculó con semillas de avena estériles. Las plantas tratadas se mantuvieron en invernadero a 23 ± 3 ºC y humedad relativa > 80 %. La patogenicidad se estimó con base en la incidencia de síntomas (pudrición de corona, raíces y marchitez). Para cumplir los postulados de Koch, tejido radical de plantas enfermas y asintomáticas se procesó para reaislamiento e identificación de los organismos inoculados con los procedimientos morfológicos ya señalados.
Sensibilidad in vitro de hongos y pseudohongos al aceite de neem
La sensibilidad de microorganismos al aceite de neem con 80% de ingrediente activo (Progranic Nimicide 80, Ultraquímica Agrícola, Jiutepec, Morelos, México) se evaluó in vitro con las siguientes dosis (tratamientos): 1) 0.7 mL/L, 2) 1.4 mL/L, 3) 3.0 mL/L y 4) testigo (PDA sin aceite de neem), mediante la técnica de alimento envenenado (Geethanjali et al. 2023). Se esterilizó el medio de cultivo PDA a 120 ºC por 15 min (Peñuelas-Rubio et al. 2015). El extracto botánico se adicionó al medio de cultivo disuelto en acetona (1:1 v/v); la mezcla se homogeneizó y se vertió en cajas de Petri. En el centro de cada una se colocó un disco de PDA con crecimiento micelial de tres días de edad por organismo aislado e incubó a 27 ºC por ocho días. Cada caja con 20 mL de PDA, con o sin aceite de neem y crecimiento fungoso, fue una unidad experimental. Cada tratamiento tuvo ocho repeticiones y el experimento se replicó tres veces.
Aceite de neem como biofumigante
La actividad biocida del aceite de neem se contrastó con metam sodio al 33 % (Busan1020, Summit Agro México). El sustrato utilizado incluyó suelo de origen local adicionado con residuos de hojas de aguacate parcialmente descompuestas en proporción 3:1 (v/v). El sustrato tuvo textura franco-arcillosa, contenido medio (2.24 %) de materia orgánica, pH de 6.8 sin problemas de salinidad, deficiencias ni excesos de N, P, K, Ca, B, Mn, Zn, Mg, Fe y Cu. En cada contenedor (bolsa de plástico de 25 × 40 cm W-L), con sustrato previamente irrigado con agua común, se depositaron 1000 mL de una solución con aceite de neem a dosis de 3 mL/L o metam sodio a concentración de 5 mL/L (tratamientos), y se cubrieron con plástico blanco lechoso de 4.20 × 6.0 m W-L, calibre 720 (IMAAS, Texcoco, Estado de México) por 30 días. Posteriormente, los contenedores se descubrieron y ventilaron por 20 días para liberar los residuos del producto. Contenedores sin biofumigante e irrigados solo con agua constituyeron el tratamiento testigo. El experimento se replicó dos veces.
Variables evaluadas
Sensibilidad in vitro de hongos y pseudohongos al aceite de neem
Las variables registradas fueron las siguientes: inhibición del crecimiento micelial de colonias (%) según Tetlow y Vincent (1947); densidad de esporulación (conidios/mL) y viabilidad (%) de acuerdo con Vélez et al. (1997) y Viera et al. (2018); caracterización morfológica, macro y microscópica de hifas, conidios, fiálides y clamidosporas según Barnett y Hunter (1998), Erwin y Ribeiro (1996) y Cabral et al. (2012); días a inicio de formación de clamidosporas y oosporas (Alcalá et al. 2005); y determinación de las DE50 y DE90 (Ming-Tsung et al. 2008, Molina y Melo 2010). La viabilidad de conidios se estimó únicamente con Fusarium sp. e Ilyonectria sp. (Chaverri y Salgado) en una alícuota de 10 µL, obtenida de 1.0 mL de una dilución 10-3 (equivalente a una concentración de 6.1 y 2.67 × 10⁹ esporas), utilizando un microscopio compuesto y una cámara de Neubauer (Viera et al. 2018). Cada variable se evaluó cinco veces por unidad experimental (caja de Petri) y experimento replicado.
Aceite de neem como biofumigante
Se estimó la densidad de unidades formadoras de colonias (UFC/g en suelo seco) de poblaciones residuales de bacterias, actinobacterias y hongos totales. Sesenta y dos días después de aplicados los tratamientos, se recolectaron 5 g de sustrato por contenedor, de un total de 20 contenedores por tratamiento seleccionados al azar, para formar tres muestras compuestas. Se usó la técnica de dilución en serie en placas de Petri (Báez et al. 2019), considerando las diluciones 10-3 para hongos y 10-4 para bacterias y actinobacterias. De cada una se obtuvo un volumen de 100 µL que se depositó en placas de Petri con medio de cultivo PDA-TS (Steiner y Watson 1965), adicionado con ácido láctico (0.5 mL/L) y tetraciclina (Biotricina, Bioresearch de México) a dosis de 100 mg/L para cuantificación de hongos o en agar nutritivo (Bioxon, Becton Dickinson de México) suplementado con benomilo (Promyl 50 %, Promotora Técnica Industrial, Jiutepec, Morelos, México) a concentración de 75 mg/L para bacterias y actinobacterias. Las cajas se incubaron durante seis días a 27 ºC (Ramírez et al. 2013). Las UFC se determinaron visualmente por cuantificación directa en placa. De cada dilución (10-3 y 10-4) se realizaron cuatro repeticiones por tratamiento, donde cada caja DE Petri individual fue una repetición. El experimento se replicó tres veces.
Diseño experimental y análisis estadístico
La sensibilidad de los patógenos in vitro y la actividad biofumigante del neem se evaluaron mediante un diseño completamente al azar. Se realizaron análisis de normalidad usando las pruebas de Shapiro-Wilk (α = 0.001) (Shapiro y Wilk 1965) y de varianza (Proc GLM) para las siguientes variables: inhibición de colonias; densidad de esporulación; viabilidad e inicio de formación de estructuras; y UFC de hongos, bacterias y actinobacterias. Las dosis efectivas DE50 y DE90 se determinaron por análisis Probit a partir de la proporción de inhibición del crecimiento micelial de colonias de hongos y pseudohongos, de acuerdo con Ming-Tsung et al. (2008) y Molina y Melo (2010). Los indicadores coeficiente de variación (CV), valor de probabilidad (p-Value) y coeficiente de determinación (R2) permitieron conocer la precisión del modelo, la probabilidad de error para rechazar la hipótesis nula (ausencia de diferencias entre tratamientos) y la variabilidad debida a tratamientos, respectivamente. Todos los análisis se realizaron con el programa estadístico SAS v. 9.0 (SAS 2002).
RESULTADOS
Aislamiento e identificación cultural de hongos y pseudohongos
De portainjertos con marchitez se obtuvieron 970 aislados de hongos y pseudohongos. Con base en características culturales y morfométricas, las especies identificadas fueron Fusarium sp., Rhizoctonia sp., Ilyonectria sp., Pythium sp. y P. cinnamomi (Cuadro I).
CUADRO I CARACTERIZACIÓN CULTURAL Y MORFOMÉTRICA DE HONGOS Y PSEUDOHONGOS AISLADOS DE RAÍCES DE PORTAINJERTOS DE AGUACATE (Persea americana var. drymifolia) CON MARCHITEZ Y CULTIVADOS EN MEDIO DE CULTIVO PAPA-DEXTROSA-AGAR (PDA).
| Fusarium sp. | Rhizoctonia sp. | Ilyonectria sp. | Pythium sp. | Phytophthora cinnamomi |
| Colonia radial, algodonosa, aérea, abundante y con anillos. Micelio blanco-púrpura claro a oscuro. Fiálides de 15-25 × 3.5-5 μm, hialinas con forma de botella. Microconidios de 5-12.5 × 2.5-3.75 μm, unicelulares, 0 septas, hialinos, elipsoides, ovoides o reniformes, agrupados en falsas cabezuelas sobre monofiálides cortas. Macroconidios de 20-32.5 × 3.75-5 μm, con 1-3 septos, hialinos, lisos, con forma lunata o falcada. Clamidosporas de 7.5-10 μm, dispuestas en parejas y series. Esporodoquios ausentes. | Colonia radial, homogénea, en anillos. Micelio rastrero regular y algodonoso, blanco-amarillo claro. Hifas de 30-175 × 7.5-10 μm del origen de la ramificación a la siguiente, gruesas, septadas, subhialinas. Ramificación en ángulos rectos a agudos, con una ligera constricción en el sitio de origen y septo cercano al punto de ramificación. | Colonia radial homogénea, con presencia de anillos. Micelio aéreo abundante, algodonoso y afelpado, beige a canela. Fiálides de 12.5-32.5 × 1.5-2.5 μm, ramificadas alrededor de conidióforos, de 1-4 (generalmente 3) son rectas a ligeramente curvadas con forma cilíndrica o de botella con septo cerca del origen. Microconidios de 3.75-12.5 × 1.25-2.5 μm, unicelulares, 0-1 septados, lisos, hialinos, elipsoidales, ovoides o subcilíndricos, a menudo agregados en falsas cabezas. Macroconidios de 25-48.5 × 3.5-5 μm, con 1-3 septos, hialinos, lisos, de forma cilíndrica. Clamidosporas globosas de 8.5 × 12.7 μm, lisas, con apariencia rugosa, dispuestas en parejas, hialinas a marrón dorado. | Colonia con crecimiento irregular (cameloide). Micelio aéreo, regular, hialino, cenocítico, ligeramente hinchado, algodonoso y color blanco. Esporangios de 10-15 μm, esféricos, globosos, terminales e intercalados. Oospora de 20-30 μm de diámetro, simple, con pared gruesa, lisa y doble membrana. | Colonia con crecimiento irregular en roseta. Micelio aéreo abundante, hialino, cenocítico, toruloso con textura venosa y color blanco. Clamidosporas de 20-40 μm, esféricas con pared gruesa. |
Prueba de patogenicidad
Las plántulas exhibieron síntomas iniciales de amarillamiento y marchitez de las hojas 10 días después de inoculadas (ddi) con sustrato infestado y por heridas (Fig. 2b), y a los 79 ddi mostraron colapso total. Los síntomas variaron según el organismo inoculado e incluyeron necrosis de la corona (Rhizoctonia sp.), de los ápices de raíces alimenticias (P. cinnamomi) o de cotiledones y raíces (Ilyonectria sp., Fusarium sp.). En algunos casos se observó a Pythium sp. e Ilyonectria sp. causando pudrición combinada de corona y raíces) (Fig. 2d-h), mientras que las plantas inoculadas con sustrato estéril y heridas permanecieron asintomáticas (Fig. 2a, c). Los patógenos se reaislaron únicamente de plantas inoculadas y su identidad se confirmó con los criterios morfológicos ya descritos, mismos que corroboraron los postulados de Koch.
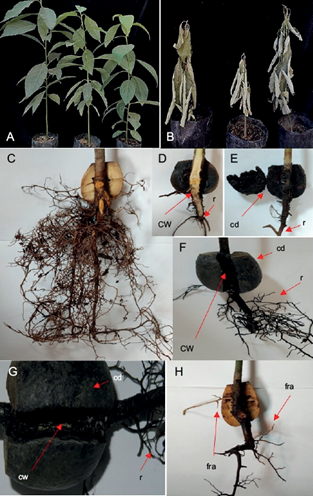
Fig. 2 Marchitez, amarillamiento y necrosis radical en portainjertos de aguacate nativo Persea americana var. drymifolia, inoculados con hongos y pseudohongos del suelo. (a) Planta asintomática; (b) portainjertos con marchitez y amarillamiento; (c) sistema radical sano de planta asintomática; (d) necrosis de corona y raíz causada por Rhizoctonia sp.; (e) necrosis de cotiledones y raíces inducida por Fusarium sp. e Ilyonectria sp.; (f) necrosis de cotiledones, corona y raíces por Pythium sp. y (g) por Ilyonectria sp.; y (h) necrosis de ápices de raíces alimenticias causada por Phytophthora cinnamomi. (cw: necrosis de corona; cd: cotiledones; r: raíz; fra: ápices de raíces alimenticias.)
Sensibilidad in vitro de hongos y pseudohongos al aceite de neem
Con excepción de Pythium sp. los microorganismos aislados fueron altamente sensibles al aceite de neem en todas las dosis probadas. Sin embargo, la más alta (3.0 mL/L) inhibió en mayor grado la expansión de colonias de Rhizoctonia sp. e Ilyonectria sp., con valores de 96.9 y 81.6 %, respectivamente, pero no se encontraron diferencias (Tukey p > 0.05) entre las dosis media y alta para Fusarium sp. y P. cinnamomi. El análisis probit demostró que es necesaria una dosis de 1 mL/L del extracto botánico para inhibir en 50 % (DE50) el desarrollo de colonias de cualesquiera de los patógenos identificados, mientras que para alcanzar la DE90 se requieren dosis diferentes para cada microorganismo, las cuales fluctuaron entre 1.86 y 4.85 mL/L, como se observa en el cuadro II y la figura 3 (p ≤ 0.05). El aceite de neem aplicado a la dosis más alta (3.0 mL/L) también redujo la esporulación y germinación conidial de Fusarium sp. en 15.9 y 6.7 % e Ilyonectria sp. en 10.8 y 2.7 %, respectivamente (Cuadro III). Asimismo, modificó el color, textura y patrón de crecimiento de las colonias y redujo la relación largo-ancho de conidios, clamidosporas, fiálides e hifas (Cuadro IV, Figs. 4, 5). Todas las dosis de azadiractina retrasaron la formación de clamidosporas de P. cinnamomi, con un periodo tres veces más prolongado (21 días) con la dosis de 3.0 mL/L en comparación con los siete días registrados en el tratamiento testigo. En el caso de Fusarium sp. e Ilyonectria sp., todas las concentraciones inhibieron la formación de estas estructuras, mientras que, en ausencia de neem, su desarrollo inició a los ocho y siete días. El extracto de neem no limitó la formación de oosporas de Pythium sp., como se muestra en el cuadro V (p ≤ 0.05).
CUADRO II SENSIBILIDAD IN VITRO AL ACEITE DE NEEM DE UN COMPLEJO FUNGOSO Y Phytophthora cinnamomi, AISLADOS DE PORTAINJERTOS DE AGUACATE (Persea americana var. drymifolia) CON MARCHITEZ, AMARILLAMIENTO Y NECROSIS RADICAL, EN TETELA DEL VOLCÁN, MORELOS, MÉXICO.
| Tratamiento* | Fusarium sp. | Rhizoctonia sp. | Ilyonectria sp. | P. cinnamomi |
| Inhibición** | Inhibición** | Inhibición** | Inhibición** | |
| T0 | 8.5 ± 0.0 c | 8.5 ± 0.0 d | 8.5 ± 0.0 d | 8.5 ± 0.0 c |
| T1 | 5.53 ± 0.09 b | 4.48 ± 0.05 c | 5.98 ± 0.02 c | 4.20 ± 0.05 b |
| T2 | 2.08 ± 0.10 a | 1.32 ± 0.11 b | 2.35 ± 0.02 b | 2.07 ± 0.03 a |
| T3 | 1.65 ± 0.02 a | 0.26 ± 0.04 a | 1.56 ± 0.01 a | 1.61 ± 0.05 a |
| DE50*** | 0.72 | 0.90 | 1.02 | 0.59 |
| DE90*** | 3.97 | 1.86 | 3.75 | 4.85 |
| Valor p | < 0.0001 | < 0.0001 | < 0.0001 | < 0.0001 |
| CV (%) | 10.9 | 12.5 | 2.75 | 7.16 |
| R2 | 0.84 | 0.91 | 0.99 | 0.94 |
*Tratamientos y coeficientes estadísticos: T0: testigo (sin aceite de neem); T1: 0.7 mL/L de aceite de neem (Azadirachta indica); T2: 1.4 mL/L; T3: 3.0 mL/L; **inhibición del desarrollo micelial (cm) en medio de cultivo papa-dextrosa-agar (PDA) mezclado con aceite de neem; ***dosis efectiva (mL/L) para 50 % (DE50) y 90 % (DE90) de inhibición de crecimiento micelial (cm).
Valor p: probabilidad de error para rechazo de hipótesis nula (ausencia de diferencias significativas); CV: coeficiente de variación asociado a la precisión del modelo; R2: coeficiente de determinación que muestra la variabilidad debida a tratamientos.
Medias con la misma letra dentro de columnas no difieren estadísticamente (Tukey, p ≤ 0.05). Cada valor representa un valor medio de ocho unidades experimentales por tratamiento en un ensayo replicado tres veces
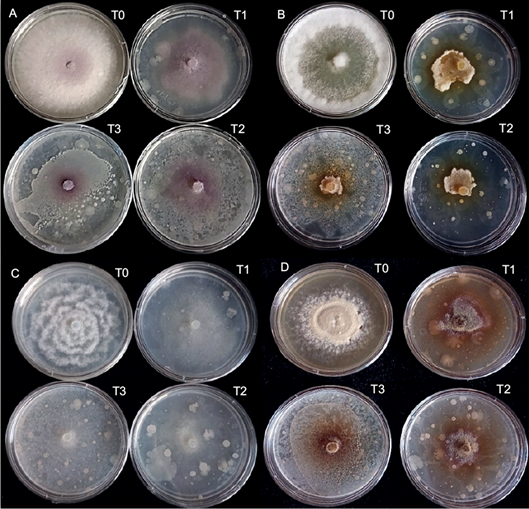
Fig. 3 Sensibilidad in vitro al aceite de neem de un complejo fungoso y Phytophthora cinnamomi, aislados de portainjertos de aguacate nativo Persea americana var. drymifolia, con marchitez, amarillamiento y necrosis radical en Tetela del Volcán, Morelos, México. (a) Fusarium sp., (b) Rhizoctonia sp., (c) P. cinnamomi y (d) Ilyonectria sp. Colonias de ocho días de edad evaluadas en medio de cultivo PDA adicionado con cuatro dosis del extracto botánico: T1 (0.7 mL/L), T2 (1.4 mL/L), T3 (3.0 mL/L) y T0 (testigo, sin aceite de neem).
CUADRO III EFECTO DETRIMENTAL DEL ACEITE DE NEEM EN LA ESPORULACIÓN Y VIABILIDAD CONIDIAL DE Fusarium sp. e Ilyonectria sp. AISLADOS DE PORTAINJERTOS DE AGUACATE (Persea americana var. drymifolia) CON MARCHITEZ, AMARILLAMIENTO Y NECROSIS RADICAL, EN TETELA DEL VOLCÁN, MORELOS, MÉXICO.
| Esporulación** (%) | Viabilidad** (%) | |||
| Tratamiento* | Fusarium sp. | Ilyonectria sp. P. | Fusarium sp. | Ilyonectria sp. |
| Conidios/mL | Conidios/mL | UFC/mL | UFC/mL | |
| T0 | 6.1 × 10⁹ ± 0.13 a | 2.67 × 10⁹ ± 0.13 a | 6.1 × 10⁹ ± 0.13 a | 2.67 × 10⁹ ± 0.13 a |
| T1 | 4.15 × 10⁹ ± 0.16 b | 4.48 × 10⁸ ± 0.16 b | 3.33 × 10⁹ ± 0.16 b | 3.04 × 10⁸ ± 0.16 b |
| T2 | 2.89 × 10⁹ ± 0.16 c | 2.43 × 10⁸ ± 0.16 c | 1.95 × 10⁹ ± 0.16 c | 1.37 × 10⁸ ± 0.16 c |
| T3 | 9.69 × 10⁸ ± 0.13 d | 1.78 × 10⁸ ± 0.13 d | 6.48 × 10⁸ ± 0.13 d | 7.02 × 10⁷ ± 0.13 d |
| Valor p | < 0.0001 | < 0.0001 | < 0.0001 | < 0.0001 |
| CV (%) | 0 | 0 | 0 | 0 |
| R2 | 1.0 | 1.0 | 1.0 | 1.0 |
*Tratamientos y coeficientes estadísticos: T0: testigo (sin aceite de neem); T1: 0.7 mL/L de aceite de neem (Azadirachta indica); T2: 1.4 mL/L; T3: 3.0 mL/L; **esporulación y viabilidad estimadas en 1.0 mL de una dilución 10-3 (equivalente a 6.1 y 2.67 × 10⁹ esporas).
UFC: unidades formadoras de colonias; valor p: probabilidad de error para rechazo de hipótesis nula (ausencia de diferencias significativas); CV: coeficiente de variación asociado a la precisión del modelo; R2: coeficiente de determinación que muestra la variabilidad debida a tratamientos.
Medias con la misma letra dentro de columnas no difieren estadísticamente (Tukey, p ≤ 0.05). Cada valor representa un valor medio de ocho unidades experimentales por tratamiento en un ensayo replicado tres veces.
CUADRO IV EFECTO DEL ACEITE DE NEEM EN LAS CARACTERÍSTICAS CULTURALES Y MORFOMÉTRICAS DE HONGOS Y PSEUDOHONGOS AISLADOS DE RAÍCES DE PORTAINJERTOS DE AGUACATE (Persea americana var. drymifolia) CON MARCHITEZ Y CULTIVADOS EN MEDIO DE CULTIVO PAPA-DEXTROSA-AGAR (PDA).
| Fusarium sp. | Rhizoctonia sp. | Ilyonectria sp. | Pythium sp. | Phytophthora cinnamomi |
| Colonia radial irregular, algodonosa, aérea, escasa y sin anillos. Micelio púrpura claro a oscuro. Fiálides de 5-11.25 × 1.25-3.75 μm, hialinas, en forma de botella. Microconidios de 5-7.5 × 1.25-2.5 μm, unicelulares, 0 septas, hialinos, obovoides a ligeramente elipsoides, sin agrupación en falsas cabezuelas. Macroconidios de 10-12.5 × 1.25 - 2.5 μm, con 1-2 septos, hialinos, lisos, con forma fusiformes a cilíndricos. Esporodoquios y clamidosporas ausentes. | Colonia radial, heterogénea, sin anillos. Micelio aéreo abundante, irregular y algodonoso, blanco-amarillo claro. Hifas de 12.5-80 × 10-12.5 μm del origen de la ramificación a la siguiente, ligeramente más gruesas, rugosas y compactadas, septadas, subhialinas. Ramificación en ángulos rectos a agudos, con constricción ligera en el sitio de origen y septo cercano al punto de ramificación. | Colonia radial, heterogénea, sin anillos. Micelio aéreo, irregular, afelpado, café oscuro. Fiálides de 11.25-27.5 × 1.25-2.5 μm, ramificadas alrededor de conidióforos, de 1-3, son rectas a ligeramente curvas con forma cilíndrica o de botella, con septo cercano al origen. Microconidios de 3.75-5 × 1.25-1.87 μm, unicelulares, lisos, hialinos, ovoides a cilíndricos, sin agrupación en falsas cabezuelas. Macroconidios de 21.5-37.5 × 2.5-3.2 μm, con 1-2 septos, hialinos, lisos, de forma cilíndrica. Ausencia de clamidosporas | Colonia con crecimiento irregular (cameloide). Micelio aéreo, regular, hialino, cenocítico, ligeramente hinchado, algodonoso, blanco. Esporangios de de 10-15 μm, esféricos, globosos, terminales e intercalados. Oospora de 20-30 μm de diámetro, simple, con pared gruesa, lisa y doble membrana. | Colonia con crecimiento semirradial sin forma arosetada. Micelio aéreo abundante, hialino, cenocítico, ligeramente toruloso con textura algodonosa y color blanco. Clamidosporas de 15-25 μm, esféricas con pared gruesa. |
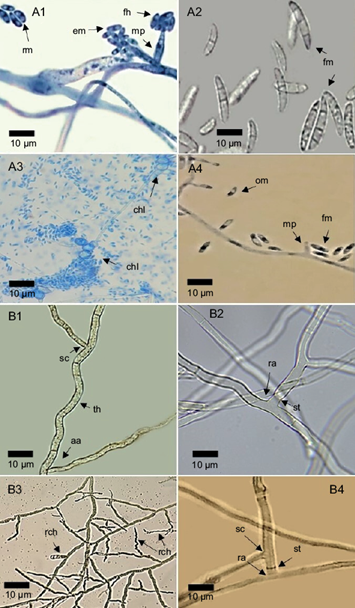
Fig. 4 Efecto del aceite de neem adicionado en medio PDA sobre la morfología de hongos aislados de raíces de portainjertos de aguacate nativo Persea americana var. drymifolia con marchitez. (a1-a3) Fusarium sp. (tratamiento sin aceite de neem) mostró monofiálides cortas en forma de botella (mp), microconidios elipsoidales (em) o reniformes (rm) agrupados en falsas cabezuelas (fh), macroconidios falcados (fm) y clamidosporas dispuestas en parejas y series (chl). (a4) La adición de neem indujo monofiálides más cortas (mp), así como macroconidios fusiformes (fm) y microconidios obovoides (om). (b1-b2) En el tratamiento de testigo, Rhizoctonia sp. exhibió hifas gruesas (th) ramificadas en ángulos rectos (ra) a agudos (aa), ligeramente constreñidas en la base (sc) y presencia de septo en la base de la ramificación (st). (b3-b4) El aceite de neem indujo hifas ligeramente más gruesas, rugosas y compactadas (rch), aunque el hongo conservó la ramificación típica en ángulo recto (ra, sc, st).
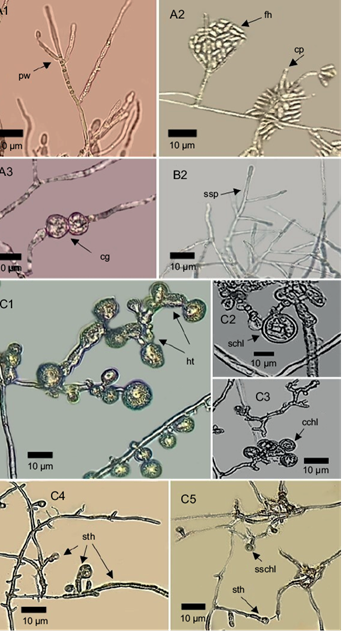
Fig. 5 Efecto del aceite de neem en la morfología de hongos y Phytophthora cinnamomi aislados de raíces de portainjertos de aguacate nativo Persea americana var. drymifolia, con marchitez en medio PDA. (a1-a3) Ilyonectria sp. sin aceite de neem mostró fiálides en verticilos (pw) y conidios agrupados en falsas cabezuelas (fh) sobre fiálides con forma cilíndrica (cp) o botella (bsp) con septo cercano al origen, clamidosporas globosas dispuestas en pares (cg); (b1) con neem, las fiálides fueron ligeramente más cortas (ssp). (c1-c3) P. cinnamomi sin aceite de neem mostró hifas cenocíticas con apariencia notoriamente torulosa (ht) y clamidosporas solitarias, apicales (schl) o agrupadas en racimos (cchl). (c4-c5) En contraste, el aceite de neem promovió hifas ligeramente torulosas (sth) y clamidosporas solitarias apicales de menor tamaño (sschl).
CUADRO V EFECTO DEL ACEITE DE NEEM EN EL INICIO DEL PERIODO DE FORMACIÓN DE CLAMIDOSPORAS Y/O OOSPORAS EN Fusarium sp., Ilyonectria sp., Phytophthora cinnamomi y Pythium sp. EN MEDIO DE CULTIVO PAPA-DEXTROSA-AGAR (PDA).
| Inicio de formación de estructuras de resistencia (días)* | ||||
| Tratamiento** | Fusarium sp. | Ilyonectria sp. | P. cinnamomi | Pythium sp. |
| T0 | 8.0 ± 0.19 a | 7.0 ± 0.13 a | 7.0 ± 0.50 a | 7.0 ± 0.46 a |
| T1 | 0.0 ± 0.00 b | 0.0 ± 0.00 b | 11.0 ± 0.71 b | 7.0 ± 0.65 a |
| T2 | 0.0 ± 0.00 b | 0.0 ± 0.00 b | 16.0 ± 1.00 c | 7.0 ± 0.80 a |
| T3 | 0.0 ± 0.00 b | 0.0 ± 0.00 b | 21.0 ± 1.31 d | 7.0 ± 0.57 a |
| Valor p | < 0.0001 | < 0.0001 | < 0.0001 | 1.000 |
| CV (%) | 23.3 | 23.3 | 18.4 | 24.6 |
| R2 | 0.96 | 0.95 | 0.84 | 0.89 |
*Días posteriores a la inoculación de Fusarium sp., Ilyonectria sp., P. cinnamomi y Pythium sp. en cajas Petri, adicionadas con aceite de neem (Azadirachta indica A. Juss.); **Tratamientos y coeficientes estadísticos: T0: testigo (sin aceite de neem); T1: 0.7 mL/L de aceite de neem (Azadirachta indica); T2: 1.4 mL/L; T3: 3.0 mL/L.
Valor p: probabilidad de error para rechazo de hipótesis nula (ausencia de diferencias significativas); CV: coeficiente de variación asociado a la precisión del modelo; R2: coeficiente de determinación que muestra la variabilidad debida a tratamientos.
Medias con la misma letra dentro de columnas no difieren estadísticamente (Tukey, p ≤ 0.05). Cada valor representa el valor medio de ocho unidades experimentales por tratamiento en un ensayo replicado tres veces.
Aceite de neem como biofumigante
El aceite de neem en dosis de 3 mL/L superó al metam sodio al reducir hasta en 63.4 % la densidad de UFC de bacterias nativas (Fig. 6a), aunque ambos tratamientos fueron igualmente efectivos al limitar la flora fungosa global hasta en 95 y 100 % (Fig. 6c). Los únicos géneros sobrevivientes después de la biofumigación fueron Aspergillus spp. y Penicillium spp. (Fig. 6 d). Las poblaciones de actinobacterias nativas (Fig. 6b) no fueron afectadas por ninguno de los tratamientos de fumigación (p > 0.05).
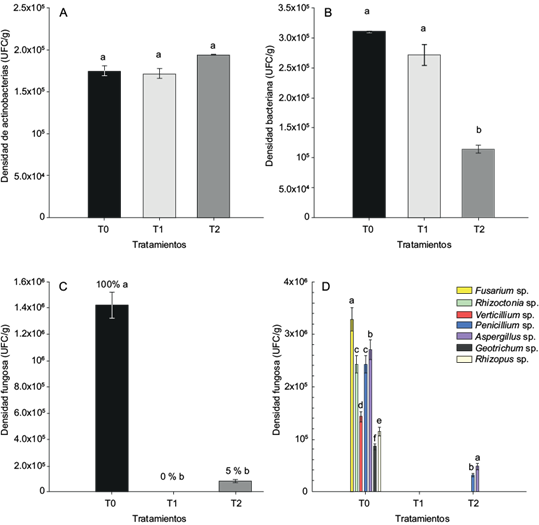
Fig. 6 (a) Densidad de actinobacterias, (b) densidad de bacterias, y (c y d), densidad fungosa (de hongos nativos) en un sustrato orgánico utilizado en un vivero de aguacate nativo Persea americana var. drymifolia, 62 días después de la aplicación de los tratamientos de fumigación ([c] poblaciones de hongos totales y [d] población residual de géneros fungosos). Las líneas de error representan los intervalos de confianza del valor medio. Barras con la misma letra no difieren estadísticamente (Tukey, p ≤ 0.05). (T2: suelo adicionado con aceite de neem [azadiractina]; T1: sustrato tratado con metam sodio [N-methil ditiocarbamato de sodio]; T0: sustrato sin fumigación.)
DISCUSIÓN
Se aisló un complejo de patógenos a partir de raíces de portainjertos de aguacate con marchitez, cuyas características culturales, morfológicas y coinfectivas fueron concordantes con los reportes realizados en Chile, Portugal y EUA. Estos patógenos fueron Fusarium sp. (Tapia y Amaro 2014), Rhizoctonia sp. (Sneh et al. 1991, Misra et al. 1994), Ilyonectria sp. (Cabral et al. 2012, Martínez-Díaz et al. 2018), y Pythium sp. y P. cinnamomi (Jeffers y Martin 1986, Erwin y Ribeiro 1996). Estos organismos, solos o en combinación, causan la pérdida de 28.2 a 63 % de los portainjertos de aguacate propagados en viveros comerciales de distintos países (Garbanzo y Coto 2017, Ramírez-Gil et al. 2017). El ataque simultáneo de especies observado en esta investigación explica la alta letalidad de la enfermedad, que causa necrosis del cuello, de los cotiledones y de las raíces. Se ha demostrado que la diversidad y densidad de microorganismos presentes en viveros de aguacate dependen de factores como tipo de suelo, pH, contenido de materia orgánica, densidad y composición de la flora nativa, entre otros (Bures 1993, Ramírez-Gil et al. 2017). Para las condiciones físicas y químicas del sustrato utilizado en este estudio (textura franco-arcillosa, MO 2.24 %, pH 6.8 y sin problemas de salinidad), Fusarium sp. y Rhizoctonia sp. fueron las especies aisladas con mayor frecuencia en portainjertos asintomáticos o con marchitez.
Los resultados mostraron que todos los microorganismos aislados fueron altamente sensibles a la azadiractina, con una mayor inhibición a la dosis más alta (3.0 mL/L). Esta actividad in vitro se ha estudiado frente a distintos patógenos fungosos de importancia económica (Jabeen et al. 2013, Kumari et al. 2013, Shrivastava y Swarnkar 2014). De acuerdo con Ferreira et al. (2010), los diámetros de colonias de F. oxysporum f. sp. medicaginis (W.C. Snyder & H.N. Hansen) y F. subglutinans (Wollenw & Reinking) se redujeron de 50.5 a 59.75 % con extracto de neem (BioNeem) al 1 %. Similarmente, concentraciones de 0.5 a 3.5 % de extracto metanólico de neem inhibieron de 86 a 90 % el desarrollo de biomasa de Sclerotium rolfsii (Sacc.) en plantas de garbanzo (Khan et al. 2020). Un efecto óptimo fue reportado por Duong et al. (2014) y Nnam et al. (2022), quienes redujeron en la misma proporción el crecimiento de R. solani (J.G. Kühn), S. rolfsii y A. flavus (Link) con extracto de neem al 100 %, mientras que la efectividad de este fluctuó entre 90.35 y 95 % contra Colletotrichum spp. (Corda), P. capsici (Leonian), A. niger (Tiegh), P. notatum (Thom) y Rhizopus nigricans (Ehrenb.).
Esta investigación muestra el potencial del aceite de neem para su incorporación en tecnologías de manejo de hongos patógenos de raíces con dosis que pueden fluctuar de 1-1.86 mL/L (DE50) a 4.85 mL/L (DE90). Este hallazgo coincidió con los de Duong et al. (2014), quienes obtuvieron la DE50 con dosis de 7.4, 3.0, 5.1 y 43.3 g/L de extracto de neem al 20 % contra R. solani, S. rolfsii, Colletotrichum spp. y P. capsici, respectivamente. Asimismo, según Mohamed et al. (2017), se requieren 13.67 y 14.71 ppm/L de nanoemulsiones de extracto de neem para inhibir en la misma proporción el desarrollo de R. solani y S. rolfsii.
El aceite de neem también afectó negativamente algunos procesos relacionados con la fisiología reproductiva de los patógenos estudiados. La dosis más alta (3.0 mL/L) redujo en mayor grado la esporulación y germinación de conidios de Fusarium sp. (15.9 y 6.7 %) e Ilyonectria sp. (10.8 y 2.7 %), respectivamente. En estudios previos se documentó que el aceite de neem, aplicado a 62.5 ppm de azadiractina al 55 %, redujo en 11 % la germinación de esporas de Sphaerotheca fuliginea (Schltdl.) Pollacci, y, sucesivamente, en 27.9-100, 43.2-100 y 70.3-100 % la viabilidad conidial de C. gloeosporioides (Penz) f. sp. mangiferae, Curvularia lunata (R.R. Nelson & F.A. Haasis) y Helminthosporium pennisetti (A.P. Misra) con azadiractina a concentraciones de 0.20 a 1.0 % (Coventry y Allan 2001, Kumari et al. 2013). A su vez, Ferreira et al. (2010) y da Costa et al. (2010) restringieron la esporulación de F. oxysporum f. sp. medicagenis, F. subglutinans y A. flavus en 70.22, 18.89-75.78 y 89 %, así como la viabilidad de conidios en 37.33, 79.55-85.33 y 96.25 %, respectivamente. Por otro lado, Alcalá et al. (2005) encontraron que el extracto de neem redujo la densidad de esclerocios de S. rolfsii en 49.3 % y retrasó en 21 días el inicio de la formación de estas estructuras, mientras que en el tratamiento testigo dicho lapso fue de ocho días. En esta investigación, la azadiractina modificó los patrones de crecimiento, textura, coloración, forma y tamaño de hifas, conidios, fiálides o clamidosporas, así como la densidad de esporulación y viabilidad en Fusarium sp., Ilyonectria sp., Rhizoctonia sp. y P. cinnamomi. Los resultados fueron concordantes con da Costa et al. (2010), quienes al usar aceite de neem (0.5-4 %) observaron conidióforos anormales o indiferenciados y patrón de ramificación de hifas atípico en el desarrollo de A. flavus. Estas observaciones evidencian el potencial antifúngico del neem, debido a que contiene azadiractina, un tetranor-triterpenoide inhibidor de la síntesis de quitinasa, la cual interviene en el desarrollo de la pared celular y la ramificación de hifas, así como en procesos de autólisis durante la esporulación y germinación de esporas (Campos et al. 2016); asimismo, limita la producción de tirosinasa necesaria para la diferenciación adecuada de estructuras reproductivas y esporas (Sheng 2009). Adicionalmente, este terpenoide modifica la composición de ácidos grasos de la membrana celular de bacterias, causando hidrofobicidad e inhibiendo la formación de peptidoglicano, lo que limita su supervivencia (Abd-Elmonsef et al. 2024). No obstante, en este trabajo el extracto de azadiractina no inhibió el desarrollo de Pythium sp. Es posible que esta especie no muestre sensibilidad a ciertos compuestos orgánicos específicos, como documentaron Sarwar et al. (1998), quienes también registraron ausencia de sensibilidad de este microorganismo a biofumigantes a base de especies de Brassicaceae en un complejo fungoso encontrado en cereales. La capacidad inhibitoria del aceite de neem observada in vitro también se reflejó en el sustrato de vivero tratado. La dosis de 3 mL/L redujo, en proporción directa respecto a las concentraciones inferiores evaluadas, la densidad de poblaciones totales de bacterias (hasta en 63.4 %) y hongos nativos (95 %), pero no de actinobacterias. Resultados similares fueron obtenidos por Wang et al. (2014) y Mocali et al. (2015), quienes, al incorporar residuos de Brassica napus (Linnaeus) y B. carinata (A. Braun) al 0.4 % en dosis de 2.1 g/contenedor, redujeron la densidad de microorganismos parásitos en 33.8 % y simultáneamente incrementaron los nematodos bacteriófagos (77 %) y micófagos (6 %), así como las alfaproteobacterias, actinobacterias y Firmicutes en 32 %. En contraste, con dazomet al 0.03% y Vapam al 42 %, en dosis de 2.31 mL/contenedor, abatieron poblaciones de microorganismos parásitos hasta en 50 %, aunque sólo aumentaron la microflora benéfica en 21 %. Los mismos autores consignaron el efecto diferenciado de la biofumigación sobre la diversidad microbiana del suelo, ya que mientras con el tratamiento orgánico predominaron principalmente organismos no patógenos pertenecientes únicamente a los filos Basidiomycota y Ascomycota, así como nematodos del orden Dorylaimida, en el suelo tratado químicamente sólo se encontraron colonias de F. oxysporum (Schltdl.) y F. solani (Mart.) Sacc. De manera similar, Hu et al. (2015) documentaron que el uso de diferentes isotiocianatos redujo las poblaciones de hongos patógenos hasta 15 %, y aunque las bacterias gramnegativas, en general, no fueron afectadas, aumentaron hasta en 38% la diversidad de especies de Firmicutes y Actinobacteria, promotoras del crecimiento vegetal y antagonistas contra algunos patógenos con origen en el suelo (Czaban et al. 2004a, b, Huang et al. 2018). A su vez, Ibrahim (2021), redujo las UFC de F. lateritium (Ness) en 23.4 % e incrementó simultáneamente poblaciones benéficas nativas de Aspergillus spp. y Penicillium spp., con residuos de diferentes especies de Brassicaceae (Burnett).
CONCLUSIONES
Los resultados obtenidos mostraron que el aceite de neem puede inhibir directamente la germinación de esporas y el crecimiento micelial de hongos y pseudohongos que atacan las raíces de portainjertos de aguacate en Morelos, México, a la vez que incrementa la flora microbiana benéfica, al servir como alimento, y reduce la contaminación de los recursos naturales. Aun cuando la efectividad biofumigante del aceite de neem contra bacterias fue de 63.4 % y en hongos de 95 %, su eficiencia puede potenciarse si se combina con otras medidas de control físico o cultural, incorporadas en un modelo de manejo integrado de plagas (MIP). También se observó que es factible incrementar la dosis de aceite de neem para usarlo con mayor eficiencia en patosistemas de aguacate donde Fusarium sp. y P. cinnamomi son más prevalentes.

