


Services on Demand
Journal
Article
 text in
 English (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
Indicators
-
 Cited by SciELO
-
 Access statistics
Related links
-
 Similars in
SciELO
Share

 Permalink

Ciencias marinas
Print version ISSN 0185-3880
Cienc. mar vol.51 Ensenada Jan./Dec. 2025 Epub Apr 04, 2025
https://doi.org/10.7773/cm.y2025.3498
Artículos de Investigación
Caracterización morfológica y molecular de Symbiodinium natans-clado A de vida libre (Dinophyceae) de la Bahía de La Paz, Golfo de California
1
 http://orcid.org/0009-0000-3652-3565
1
2
http://orcid.org/0000-0001-9904-1512
1Departamento de Plancton y Ecología Marina, Instituto Politécnico Nacional, Centro Interdisciplinario de Ciencias Marinas, 23079 La Paz, Baja California Sur, Mexico.
2Programa de Investigadoras e Investigadores por México, Secretaría de Ciencia, Humanidades, Tecnología e Innovación, Mexico City, Mexico.
3Laboratorio de Botánica Marina y Planctología, Instituto de Ciencias Marinas y Pesquerías, Universidad Veracruzana, 94294 Boca del Río, Veracruz, Mexico.
El género Symbiodinium es un grupo de dinoflagelados mayoritariamente endosimbiontes, comúnmente conocidos como zooxantelas, que viven asociados a invertebrados y protistas marinos. El objetivo del presente estudio fue la identificación morfológica y molecular de 2 cepas de Symbiodiniales (SNCETMAR-1 y SNCETMAR-2) aisladas de la anémona Actinostella sp. de la Bahía de La Paz, Golfo de California. La identificación se realizó a partir de cultivos empleando microscopía fotónica, incluyendo de epifluorescencia y electrónica de barrido. Se obtuvo una secuencia de la cepa SNCETMAR-2 de la región 28S del ADNr. La combinación de métodos permitió la identificación de las cepas como Symbiodinium natans-clado A. Este taxón es un grupo de organismos de vida libre, lo que facilitó el cultivo de las cepas en el laboratorio. El ciclo de vida de este grupo presentó 2 fases, una fase móvil y otra inmóvil en estado cocoide, siendo este el último estadio donde se presentó la división sexual y asexual. Este estudio amplía los reportes del clado A de la familia Symbiodiniaceae en el Golfo de California, proporcionando información valiosa para su cultivo, identificación y análisis filogenético.
Palabras clave: Actinostella; endosimbionte; Golfo de California; estados reproductivos; Symbiodinium; zooxantelas
The genus Symbiodinium is a group of mostly endosymbiotic dinoflagellates, commonly known as zooxanthellae, which live in association with marine invertebrates and protists. The objective of the present study was the morphological and molecular identification of 2 strains of Symbiodiniales (SNCETMAR-1 and SNCETMAR-2) isolated from the anemone Actinostella sp. from Bahía de La Paz, Gulf of California. Culture identification was conducted via photomicroscopy, including epifluorescence and scanning electron microscopy. A sequence of the SNCETMAR-2 strain was obtained from the 28S rDNA region. The combination of methods allowed the strains to be identified as Symbiodinium natans-clade A. This taxon is a group of endosymbiotic and free-living organisms, which facilitated the cultivation of the strains in the laboratory. The life cycle of this group presented 2 phases, a motile and a non-motile phase in the coccoid state, the last stage where both sexual and asexual division occur. This study extends the reports of clade A of the family Symbiodiniaceae in the Gulf of California and provides valuable information for its culture, identification, and phylogenetic analysis.
Key words: Actinostella; endosymbiont; Gulf of California; life stages; Symbiodinium; zooxanthellae
INTRODUCCIÓN
Symbiodinium Gert Hansen & Daugbjerg es un género fotosintético con clados y subclados oportunistas y de vida libre, distribuidos en zonas tropicales y subtropicales (Takabayashi et al. 2012, Granados-Cifuentes et al. 2015, Hoppenrath et al. 2023). El nombre del género es considerado como neutro y significa ‘‘viviendo juntos’’ y ‘‘girando’’ (LaJeunesse et al. 2018). A estos organismos también se les ha denominado Zooxanthella K. Brandt (Guiry y Andersen 2018). Esto hace referencia a la simbiosis mutualista que presenta el alga, en este caso, a la simbiosis del dinoflagelado con invertebrados como cnidarios, almejas, copépodos, platelmintos, esponjas y algunos protozoarios como foraminíferos, radiolarios y ciliados (Baker 2003, Hirose et al. 2008, LaJeunesse et al. 2018). También, se les clasifica como citobiontes o simbiontes intracelulares (Taylor y Harrison 1983).
Especies de la familia Symbiodiniaceae (e.g., Symbiodinium microadriaticum LaJeunesse y Symbiodinium pilosum Trench & R.J. Blank ex La Jeunesse) presentan respuestas fotosintéticas distintas en condiciones idénticas de laboratorio. Estas diferencias fotosintéticas explican la presencia de esta familia en nichos diversos que pueden ocupar (Iglesias-Prieto y Trench 1994). La especificidad huésped-simbionte demuestra la capacidad de un simbionte para estar especializado a cierto huésped que habite en una región en concreto, además, se muestran variaciones en dicha especificidad en amplios rangos geográficos. Las variables físicas (temperatura e irradiancia) y biológicas (diversidad y abundancia de huésped, y diversidad y abundancia de simbiontes) modulan la especificidad entre simbionte y huésped (Iglesias-Prieto et al. 1992, 2004; Iglesias-Prieto and Trench 1994, 1997). Además de su rol como simbiontes, se han reportado que extractos de cepas de la familia Symbiodiniaceae aislados de la anémona Stichodactyla haddoni (Saville-Kent) son citotóxicos para el crustáceo Artemia salina (Linnaeus) (Bigham-Soostani et al. 2021).
La familia Symbiodiniaceae es un grupo diverso que comprende varios clados genéricos y subgenéricos, cada uno de ellos formado por un número desconocido de subespecies o subclados (Iglesias-Prieto et al. 2004, LaJeunesse et al. 2018). Las reconstrucciones filogenéticas con genes ribosomales (28S y 23S) y de cloroplastos (psbA) han revelado 9 clados (A al I) (Hirose et al. 2008, Hansen y Daugbjerg 2009, Pochon y Gates 2010, Yamashita y Koike 2013, LaJeunesse et al. 2018). Se han propuesto nuevos géneros con respecto a las agrupaciones filogenéticas: Symbiodinium Gert Hansen & Daugbjerg (clado A), Breviolum J.E. Parkinson & LaJeunesse (clado B), Cladocopium (clado C), Durusdinium LaJeunesse (clado D), Effrenium LaJeunesse & H.J. Jeong (clado E), Fugacium LaJeunesse (clado F) y Gerakladium LaJeunesse (clado G) (LaJeunesse et al. 2018). Son pocos los clados donde existe una aparente diferencia morfológica: el clado B que presenta tamaños celulares de 6 a 12 µm, y el clado C que presenta un surco apical llamado acrobase (LaJeunesse et al. 2018).
Las cepas analizadas en este estudio pertenecen al clado A, correspondiente al linaje más antiguo de la familia Symbiodiniaceae, que está integrado por S. microadriaticum, Symbiodinium necroappetens LaJeunesse, S. Y. Lee, Knowlton & H. J. Jeong, Symbiodinium tridacnidarum S. Y. Lee, H. J. Jeong, N. S. Kang & LaJeunesse, Symbiodinium natans Gert Hansen & Daugbjerg y Symbiodinium linucheae (Hansen y Daugbjerg 2009, LaJeunesse et al. 2018). El clado A incluye especies de vida libre como S. pilosum y S. natans (Yamashita y Koike 2013, LaJeunesse et al. 2015), además de grupos con formas transitorias, oportunistas, de vida libre y simbióticas que se pueden encontrar asociados a un hospedador invertebrado o protista (LaJeunesse et al. 2018). También puede habitar diferentes sustratos como la arena (Carlos et al. 1999, Hoppenrath et al. 2023), y formar simbiosis con corales blandos (e.g., Stereonephthya cundabiluensis Verseveldt), corales pétreos o corales duros como Orbicella faveolata (Ellis & Solander) (Hirose et al. 2008, Kemp et al. 2014).
MATERIALES Y MÉTODOS
Aislamiento y condiciones de cultivo
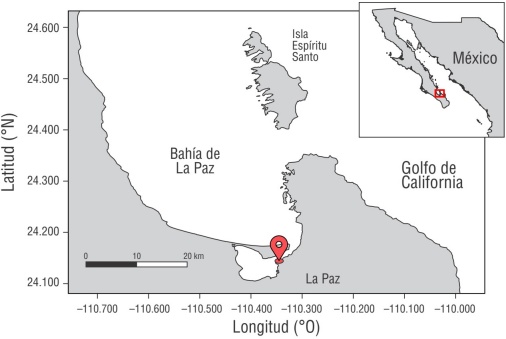
Las células fueron aisladas de la columna de la anémona solitaria Actinostella sp. (Hexacorallia: Actinaria: Actiniidae; Fig. 1) que fue recolectada por Ana E Ramos-Santiago el 9 de agosto de 2018 en la playa del CETMAR (24°08′39.2″ N, 110°20′41.0″ W; Fig. 2), Bahía de La Paz, en el suroeste del Golfo de California, México. Las células no móviles fueron aisladas en un microscopio invertido AXIO Vert.A1 (Carl Zeiss, Oberkochen, Alemania), con ayuda de capilares con punta reducida. Se realizó un escalamiento progresivo hasta obtener cultivos de 25 mL en tubos planos de 50 mL de volumen. Las cepas SNCETMAR-1 y SNCETMAR-2 se mantuvieron en medio GSe con extracto de lombricomposta (Bustillos-Guzmán et al. 2015) y medio K (Keller et al. 1987) modificado con la adición de extracto de lombricomposta (Keller et al. 1987), a una salinidad de 34, temperatura de 24 °C ± 1 °C, con iluminación continua de 150 μmol E·m-2·s-1 y un ciclo de 12 h luz:12 h oscuridad.
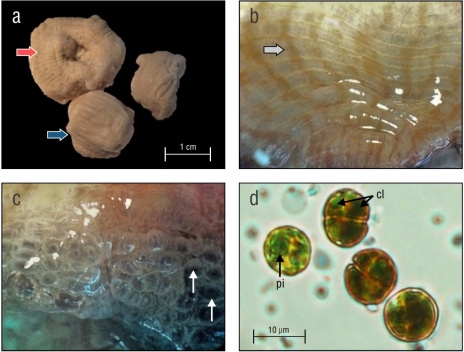
Figura 1 Symbiodinium-clado A y la anémona hospedera Actinostella sp. Ejemplar de la anémona Actinostella sp. preservado en formalina al 4%, se observa la vista superior del collar y disco oral con tentáculos retraídos (flecha roja); vista lateral de la columna (flecha azul) (a). Detalle de Actinostella sp. viva, se observa coloración, detalle inferior del collar con verrugas pequeñas alineadas (flecha gris) (b). Vista lateral de la columna con verrugas grandes y numerosas (flechas blancas) (c). Células de Symbiodinium sp. (cepa SNCETMAR-2) recién aisladas, con cloroplastos verde-amarillos (cl) y pirenoide (pi) (flechas negras) (d).
Identificación morfológica
La identificación de las cepas se realizó con ayuda de literatura especializada (LaJeunesse et al. 2015, 2018; Hoppenrath et al. 2023). Se evaluó la morfometría y se obtuvieron micrografías de células vivas en el microscopio fotónico invertido Axio Vert.A1 (Carl Zeiss) en campo claro. También se empleó el microscopio de epifluorescencia Axio Scope.A1 (Carl Zeiss) con una cámara digital Axiocam 506 color de 6 megapíxeles para observar células teñidas con el marcador fluorescente DAPI (4',6-diamidino-2-fenilindol; Sigma) y visualizar la posición y tamaño del núcleo. Para realizar el procesamiento de muestras para microscopio electrónico de barrido (MEB) se siguió el protocolo empleado por Ramos-Santiago (2023) para dinoflagelados desnudos. La metodología consistió, grosso modo, en un proceso de prefijación de las células con glutaraldehído al 4%, postfijación con tetróxido de osmio (OsO4) al 2%, lavados intermedios para eliminar los residuos de los fijadores, deshidratación con un gradiente de etanol (EtOH) al 10%, 20%, 30%, 40%, 50%, 60%, 70%, 80%, 90% y 2 veces al 99% y un proceso de secado de las muestras con hexametildisilazano (HMDS). Las muestras se enviaron al Servicio Académico de Microscopía Electrónica de Barrido (SAMEB) del Instituto de Ciencias del Mar y Limnología (ICMyL), Universidad Nacional Autónoma de México (UNAM), Ciudad de México, México.
Identificación molecular
Extracción y amplificación de ADN
Se realizó la extracción de ADN de las cepas SNCETMAR-1 y SNCETMAR-2, utilizando el kit Quick-ADN Miniprep Plus Universal (Zymo Research, Irvine, EE. UU.). Para la amplificación se empleó una mezcla de 6.25 µL de DreamTaq Green PCR 2X (Thermo Fisher Scientific, Waltham, EE. UU.), 2 µL de H2O milli-Q, 1 µL de cada iniciador (F y R) y 1 µL de ADN. Se usaron los iniciadores para 28S del ADNr (Hosoi-Tanabe et al. 2006). Las condiciones de amplificación consistieron en un paso de desnaturalización a 95 °C durante 5 min, seguido de 35 ciclos a 95 °C durante 1 min, a una temperatura de alineamiento de 52 °C durante 1 min, 72 °C durante 2 min y, finalmente, una extensión a 72 °C por 7 min. Las muestras de PCR se verificaron mediante electroforesis en gel de agarosa al 1.5% con Buffer TBE 1X. Se digitalizó la imagen bajo el sistema ChemiDoc XRS+ de Bio-Rad (Hercules, EE. UU.). Los productos de PCR se enviaron para su purificación y secuenciación a la compañía Macrogen (Seúl, Corea del Sur). Es importante destacar que la extracción de ADN fue exitosa en ambas cepas; sin embargo, la amplificación únicamente se logró con la cepa SNCETMAR-2.
Análisis filogenético
La secuencia se editó con el programa Sequencher v. 4.1.4. Se realizó un análisis BLAST de la secuencia consenso (Forward + Reverse) con secuencias de la base de datos del GenBank. Se seleccionaron secuencias de los diferentes clados de la familia Symbiodiniaceae de la región 28S del ADNr para la reconstrucción de los árboles filogenéticos. La alineación de las secuencias se realizó con el programa MEGA v. 10.0.5, usando el algoritmo de alineamiento MUSCLE. Con JModel test v. 2.1.10, se seleccionó el modelo que describió mejor las tasas de sustitución nucleotídica de las secuencias, siendo el modelo general de tiempo reversible (GTR) el que se utilizó para el análisis filogenético, el cual se llevó a cabo con los algoritmos de máxima verosimilitud (MV) y máxima parsimonia (MP) en el programa MEGA v. 10.0.5, y con inferencia bayesiana (IB) con el programa MrBayes v. 3.2.7a. La construcción de los árboles se realizó con un bootstrap de 1,000 réplicas para MV y 3 × 10⁶ generaciones para IB. Los árboles fueron editados con el programa Photoshop CS6 v. 13.1.2.
RESULTADOS
Morfología de Symbiodinium-clado A
Células solitarias, de coloración rojiza, con movimiento giratorio, las cuales se distribuyen en el fondo y paredes del tubo de cultivo (Fig. 3a, b). Cloroplastos reticulados, parduzcos y periféricos (Fig. 3c). El pirenoide se encuentra en la zona central de la célula y tiene un diámetro de 2.65 ± 0.52 µm (Fig. 3c-e). Las células mastigote (móviles) tienen forma de hongo, comprimidas lateralmente, con el epicono ligeramente más grande que el hipocono (Fig. 3c-i). Las células móviles miden de 10.93 ± 0.98 µm de largo y 7.79 ± 1.06 µm de ancho (media ± DE; n = 30) en la cepa SNCETMAR-1 (Tabla S1), y 11.78 ± 1.05 µm de largo y 8.02 ± 1.38 µm de ancho (media ± DE; n = 30) en la cepa SNCETMAR-2 (Tabla S1). El núcleo está localizado en la parte anterior de la célula (Fig. 3h, l). Otro morfotipo observado fueron células no móviles cocoides, con un diámetro de 12.01 ± 0.83 µm (media ± DE; n = 30; Fig. 3j-l). El morfotipo no móvil carece de rasgos morfológicos típicos de las células móviles.
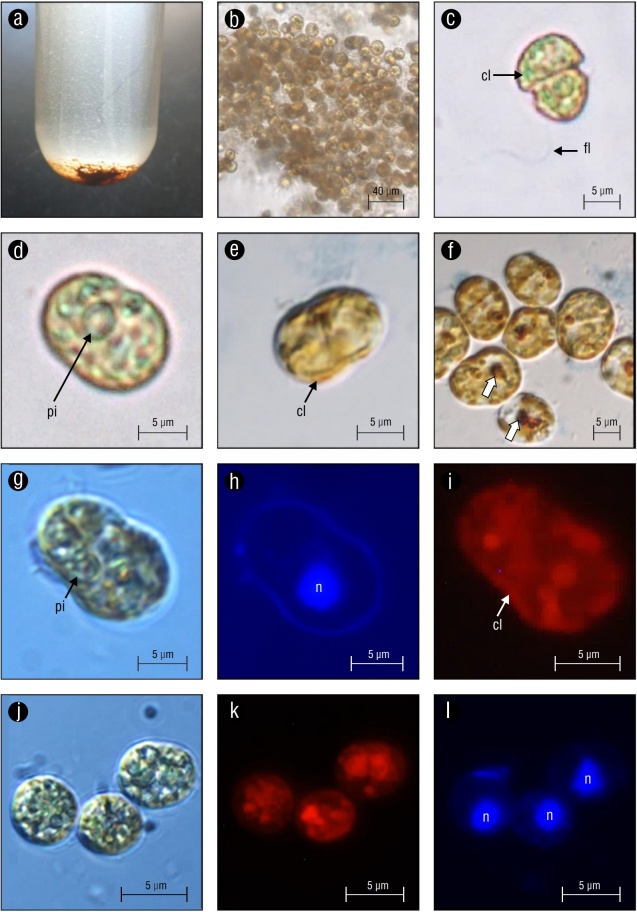
Figura 3 Subclado Symbiodinium natans-clado A de la Bahía de La Paz. Cepa SNCETMAR-2 en medio GSe (a). Cepa SNCETMAR-1 (c-f). Cepa SNCETMAR-2 (b, g-l). Células cocoides, no móviles, agrupadas por medio de mucílago (b). Vista ventral de células móviles con la forma típica de hongo (c-e). Quistes reproductivos redondeados y alargados, presentan sustancias de reserva o una mancha ocular (flecha blanca) (f). Células no móviles en forma de hongo y estado cocoide (g, j). Con tinción DAPI se muestra la posición y forma del núcleo (n) en las 2 fases del ciclo de vida de Symbiodinium sp. (h, l). Imágenes de epifluorescencia de los cloroplastos (i, k). cl = cloroplastos, pi = pirenoide, fl = flagelo longitudinal.
Se documentaron 2 formas de vida en ambas cepas de Symbiodinium, células móviles y células inmóviles en estado cocoide, siendo esta última la fase dominante. Se observaron células no móviles en predivisión (Fig. 4a-c). Se documentaron diferentes fases de los procesos de división, díadas que habían duplicado los pirenoides y la presencia de un cuerpo de acumulación, por otro lado, células con 2 cuerpos de acumulación que podrían indicar la fusión de 2 gametos (Fig. 4c-f). También, se observaron células formando agrupaciones en tríadas y tétradas (Fig. 3g-j) y la presencia de cigotos formados por fusión (singamia) de gametos (Fig. 4k, l). En células cocoides en proceso de reproducción se observaron cuerpos de acumulación de color rojo-naranja, probablemente lípidos como sustancias de reserva o una mancha ocular (Fig. 5).
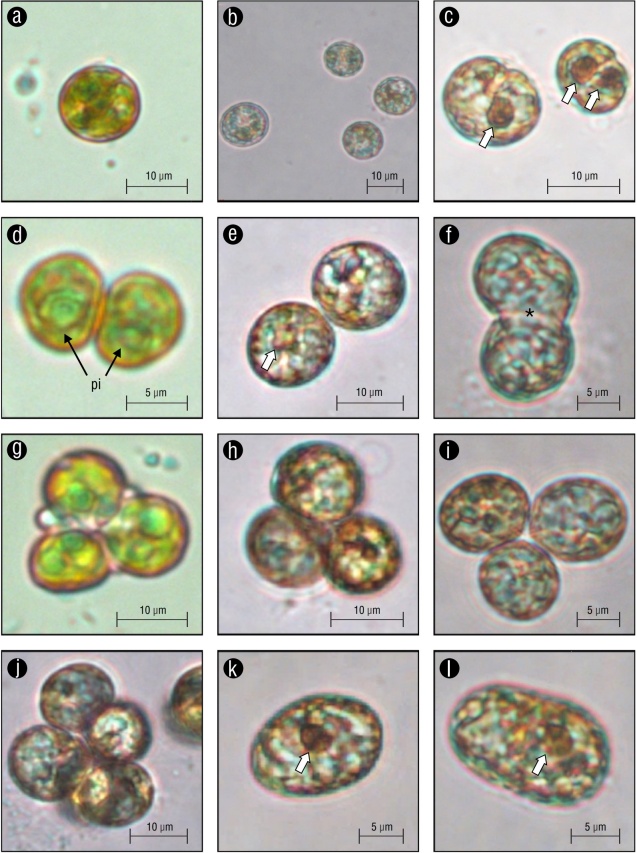
Figura 4 Quistes de Symbiodinium natans-clado A de la Bahía de La Paz. Cepa SNCETMAR-1 (e, h, j-l). Cepa SNCETMAR-2 (a, b, c, d, f, g, i). Quiste de predivisión inmóvil o estadio cocoide (a-c). Quiste de división bicelular (fase díada) (d-f). Meiosis I, fase de tríada (g-i). Meiosis II, fase de tétrada, donde se forman 4 células haploides (j). Cigoto (diploide) (k, l). Flecha blanca con margen = sustancias de reserva (lípidos) o una mancha ocular, asterisco (*) = proceso de fisión binaria.
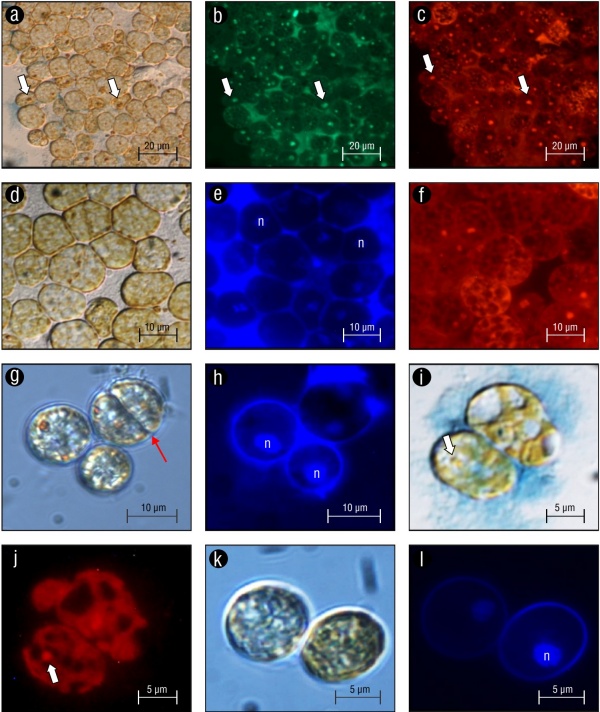
Figura 5 Células de Symbiodinium-clado A (cepa SNCETMAR-2) en microscopio de epifluorescencia. Micrografías ópticas de quiste inmóvil (a, d, g, i, k). Autofluorescencia del cloroplasto en vista ventral de la célula (b, c, f, j). Tinción DAPI del núcleo (n) (e, h, l). Flecha blanca con margen = lípidos como productos de reserva o mancha ocular, flecha roja = plano de división.
Con MEB se corroboró la morfología de las células móviles y los estados reproductivos anteriormente mencionados, así como el cingulum, el cual es descendente, desplazado aproximadamente un ancho del cingulum (Fig. 6). El arreglo de placas del anfiesma no se logró observar con esta técnica.
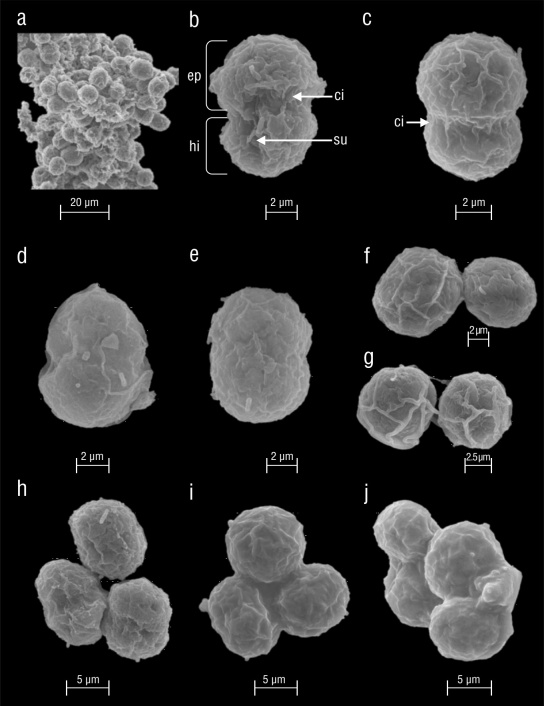
Figura 6 Células vegetativas de Symbiodinium natans-clado A en microscopio electrónico de barrido. Cepa SNCETMAR-1 (b, c, g, h). Cepa SNCETMAR-2 (a, d, e, f, i, j). Quistes vegetativos, fase dominante de Symbiodinium sp. (a). Vista ventral (b). Vista dorsal (c, e). Zoosporangio con detalle del cingulum donde se alberga el flagelo transversal (d). Proceso de fisión binaria (f, g). Meiosis I (h, i). Meiosis II (j). ci = cingulum, su = sulcus, ep = epicono, hi = hipocono.
Identificación molecular
Se obtuvo una secuencia de 514 pb de la región 28S del ADNr de la cepa SNCETMAR-2 (PP563703). En los análisis BLAST realizados en este estudio, la secuencia mostró un 100% de identidad con la secuencia OQ449283, identificada como S. natans. Sin embargo, se procuró que las secuencias seleccionadas provinieran de estudios publicados o de investigaciones posteriores en las que su identificación molecular haya sido corroborada. Para la reconstrucción filogenética de este grupo taxonómico se incluyeron secuencias de los 9 clados que se aceptan para la familia Symbiodiniaceae (Tabla 1). La secuencia de este estudio se agrupó dentro del clado A con valores de soporte de bootstrap del 91 y 97 para MP y MV, y probabilidad posterior de 0.98 con IB (Fig. 7). La secuencia de la cepa SNCETMAR-2 formó un subclado con secuencias de S. natans con valores de soporte de bootstrap del 70 al 89 (Fig. 7). Se compararon 2 secuencias de S. natans (AB704055 y AB704058) con la secuencia SNCETMAR-2; se observó que en la secuencia AB704055 hay una transición (C por T) en la posición 416, mientras que en la secuencia AB704058 existe una transición (A por G) en la posición 461. El análisis de las divergencias genéticas por pares entre las secuencias identificadas como clado A reveló valores bajos, que oscilaron entre 0.025 y 0.032. En contraste, las divergencias con secuencias de otros clados fueron superiores a 0.141 (Tabla 2).
Tabla 1 Secuencias de la familia Symbiodiniaceae incluidas en el análisis filogenético de la región 28S del ADNr y de Gymnodinium catenatum que se usó como grupo externo.
| GenBank ID | Taxón | Cepa | Origen de aislamiento | Localidad | Referencia |
| PP563703 | Symbiodinium natans | SNCETMAR-2 | Actinostella sp. | Bahía de La Paz, México | Este estudio |
| AB704058 | Symbiodinium natans | FGS-D6-Sy | Arena | Isla Gahi, Okinawa, Japón | Yamashita y Koike (2013) |
| AB704055 | Symbiodinium natans | GTP-A6-Sy | Poza de marea | Isla Gahi, Okinawa, Japón | Yamashita y Koike (2013) |
| EU315917 | Symbiodinium natans | CAT2393 | SD | Tenerife, España | Hansen y Daugbjerg (2009) |
| KT634312 | Symbiodinium sp. | zs12xd | Zoanthus sp. | Tavernier, Cayos de Florida, EE. UU. | Graham et al. (2015) |
| LK934674 | Symbiodinium sp. | CCMP2456 | Alveopora japonica Eguchi, 1965 | Jeju, Corea | Sin publicar |
| AB778578 | Symbiodinium sp. | KMG004-a-02 | Pteraeolidia ianthina (Angas, 1864) | Chiba, Japón | Yorifuji et al. (2015) |
| KF740671 | Symbiodinium pilosum | rt-185 | Zoanthus sociatus (Ellis, 1768) | Jamaica | Jeong et al. (2014) |
| ON263282 | Symbiodinium necroappetens | A13 | SD | SD | Sin publicar |
| MK692538 | Symbiodinium linucheae | SSA01 | SD | SD | Sin publicar |
| KM972549 | Symbiodinium microadriaticum | rt-061 | Cassiopea xamachana Bigelow, 1892 | Florida, EE. UU. | Lee et al. (2015) |
| LK934669 | Symbiodinium microadriaticum | CCMP2467 | Alveopora japonica | Jeju, Corea | Sin publicar |
| KT149349 | Symbiodinium minutum | Mf1.05b | SD | Caribe | Parkinson et al. (2015) |
| LK934670 | Symbiodinium minutum | CCMP830 | Alveopora japonica | Jeju, Corea | Sin publicar |
| KT149351 | Symbiodinium psygmophilum | PurPFlex | SD | Caribe | Parkinson et al. (2015) |
| KF364606 | Symbiodinium sp. | RCC 1521 | Arrastre de red superficial | Blanes, Mar Mediterráneo | Jeong et al. (2014) |
| AF060899 | Gymnodinium varians | CCMP 421 | SD | SD | Wilcox (1998) |
| AJ291539 | Symbiodinium sp. | 1584 | Amphisorus sp. | Guam | Pawlowski et al. (2001) |
| AJ291536 | Symbiodinium sp. | 1643 | Marginopora | Luminao, Guam | Pawlowski et al. (2001) |
| KF740689 | Symbiodinium sp. | MTB4 | Orbicella faveolata (Ellis & Solander, 1786) | EE. UU. | Jeong et al. (2014) |
| KF740686 | Symbiodinium sp. | Tha09-57 | Oulastrea crispata (Lamarck, 1816) | Tailandia | Jeong et al. (2014) |
| FN561562 | Symbiodinium sp. | nr-i4 | Foraminífero subfamilia Soritinae Ehrenberg | Oahu, Hawái, EE. UU. | Pochon y Gates (2010) |
| AJ291513 | Symbiodinium sp. | 751 | Sorites sp. | Florida, EE. UU. | Pawlowski et al. (2001) |
| KF740682 | Symbiodinium sp. | Zam03-3m-83 | Millepora Linnaeus, 1758 | Japón | Jeong et al. (2014) |
| FJ529530 | Symbiodinium sp. | C3nt | Seriatopora hystrix Dana, 1846 | Australia | Sampayo et al. (2009) |
| AJ830916 | Symbiodinium sp. | MS26_5244x | Amphisorus hemprichii Ehrenberg, 1965 | Guam | Sin publicar |
| AJ291525 | Symbiodinium sp. | 1635 | Marginopora sp. | Piti, Guam | Pawlowski et al. (2001) |
| KU359161 | Symbiodinium kawagutii | symka | SD | SD | Sin publicar |
| AF360577 | Symbiodinium kawagutii | Clado C | Montipora verrucosa (Lamarck, 1816) | Hawái, EE. UU. | Santos et al. (2001) |
| SD | Gymnodinium catenatum | BAPAZ 16 | SD | Bahía de La Paz, BCS, México | Sin publicar |
| +SD: Sin dato. | |||||
Tabla 2 Distancias genéticas por pares basadas en 13 secuencias de la familia Symbiodiniaceae seleccionadas de la región 28S del ADNr. Las divergencias genéticas observadas entre la secuencia de este estudio (*) perteneciente al clado A y los otros clados se muestran en negritas. Las letras A-I indican los clados de la familia Symbiodiniaceae.
| A | B | C | D | E | F | G | H | I | Symbiodinium kawagutii | |||||
| KF740671 | PP563703* | KT634312 | AB778578 | KT149349 | FJ529530 | KF740689 | AF060899 | AJ830916 | AJ291539 | AJ291513 | FN561562 | AF360577 | ||
| A | KF740671 | |||||||||||||
| PP563703* | 0.025 | |||||||||||||
| KT634312 | 0.028 | 0.014 | ||||||||||||
| AB778578 | 0.032 | 0.018 | 0.004 | |||||||||||
| B | KT149349 | 0.237 | 0.240 | 0.240 | 0.244 | |||||||||
| C | FJ529530 | 0.208 | 0.208 | 0.212 | 0.216 | 0.134 | ||||||||
| D | KF740689 | 0.198 | 0.219 | 0.219 | 0.216 | 0.208 | 0.170 | |||||||
| E | AF060899 | 0.155 | 0.141 | 0.155 | 0.159 | 0.216 | 0.187 | 0.194 | ||||||
| F | AJ830916 | 0.212 | 0.212 | 0.216 | 0.219 | 0.120 | 0.092 | 0.198 | 0.201 | |||||
| G | AJ291539 | 0.265 | 0.265 | 0.265 | 0.261 | 0.226 | 0.184 | 0.177 | 0.233 | 0.216 | ||||
| H | AJ291513 | 0.187 | 0.191 | 0.194 | 0.198 | 0.124 | 0.049 | 0.159 | 0.180 | 0.085 | 0.184 | |||
| I | FN561562 | 0.205 | 0.212 | 0.219 | 0.219 | 0.159 | 0.134 | 0.177 | 0.205 | 0.141 | 0.201 | 0.127 | ||
| Symbiodinium kawagutii | AF360577 | 0.449 | 0.452 | 0.449 | 0.452 | 0.484 | 0.470 | 0.473 | 0.466 | 0.491 | 0.516 | 0.459 | 0.456 | |
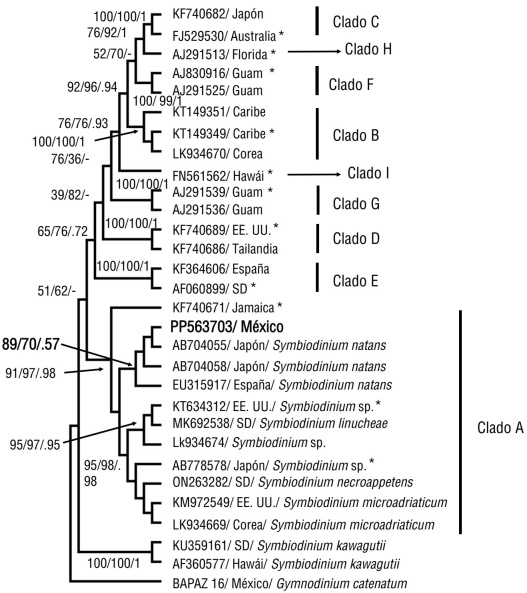
Figura 7 Árbol filogenético de Symbiodinium de la región 28S del ADNr. En negritas se indica la secuencia de la cepa SNCETMAR-2 (PP563703) de este estudio. El análisis se dedujo utilizando el método de máxima parsimonia (MP), máxima verosimilitud (MV) e inferencia bayesiana (IB). En los nodos se muestra el porcentaje de soporte de bootstrap y probabilidad posterior de los clados y subclados. El análisis incluyó 30 secuencias, analizando secuencias parciales de 558 pb. Las secuencias seleccionadas para el análisis de divergencia genética de la Tabla 2 se indican con asteriscos. SD = sin dato.
DISCUSIÓN
El tamaño de las células móviles de S. natans-clado A pueden ir de 9.5 a 11.5 µm de largo y de 7.4 a 9 µm de ancho (Hansen y Daugbjerg 2009, LaJeunesse et al. 2015, Lee et al. 2015, Guiry y Guiry 2024), lo que concuerda con lo reportado en este estudio. Los subclados que presentan una morfología similar son S. necroappetens y S. microadriaticum; sin embargo, estos presentan tamaño celular que va de 9 a 12 µm (mayor que S. natans) y de 7 a 10 µm (menor a S. natans), respectivamente (LaJeunesse et al. 2015).
La identificación morfológica y molecular actual dentro de la familia Symbiodiniaceae es compleja. Las características morfológicas descriptivas para el grupo son el número, forma y posición de las placas anfiesmales; sin embargo, estas no son suficientes para una identificación específica, ya que pueden ser similares o diferentes dentro y entre los grupos que componen los clados (Lee et al. 2015, LaJeunesse et al. 2018). Por otra parte, la información morfológica de las placas anfiesmales en la fase móvil (mastigote) de clados poco emparentados, puede arrojar información morfológica distinta, como en los clados A y E (Lee et al. 2015). Otros caracteres morfológicos anteriormente empleados fueron la forma y tamaño del pirenoide, cloroplastos y núcleo; sin embargo, en la familia Symbiodiniaceae estos caracteres son compartidos y tampoco funcionan para diferenciar entre clados o subclados (Lee et al. 2015). Solo existe un carácter de autopomorfía, que es la reducción de una vesícula apical alargada pronunciada (acrobase o surco apical), característica presente en el clado C (LaJeunesse et al. 2018). No obstante, los miembros pertenecientes al clado A carecen de dicho carácter, por lo que dicha estructura no es relevante en las cepas analizadas en este estudio.
La morfología del grupo puede variar dependiendo de la fase en la que se encuentre, pudiendo observar su fase cocoide típica de la reproducción asexual, formas elipsoidales a formas de hongo (fase móvil). Las células cocoides pueden medir de 8 a 10 µm de diámetro (LaJeunesse et al. 2018), mientras que las células móviles pueden tener un tamaño promedio de 6 a 12 µm de largo (Hansen y Daugbjerg 2009, LaJeunesse et al. 2018). En cultivo se observaron células formando agrupaciones en tríadas y tétradas, lo que corresponde a la meiosis I y meiosis II tardía de la reproducción sexual, respectivamente. Estos estados reproductivos han sido reportados por Figueroa et al. (2021) en una cepa de Symbiodinium del clado C (Cladocopium latusorum Turnham, Sampayo & LaJeunesse) proveniente de Moorea de la Polinesia Francesa, Océano Pacífico Sur.
Las reconstrucciones filogenéticas con genes ribosomales (28S y 23S) y de cloroplastos (psbA) revelan 9 clados (A al I) evolutivamente divergentes (véase Tabla 2, Pochon y Gates 2010, LaJeunesse et al. 2018). Los valores de divergencia genética por pares altos y bajos en este estudio fueron muy similares a los de Pochon y Gates (2010), debido a que se incluyeron algunas secuencias de la subunidad larga identificadas por estos autores como clado E (AF060899), clado F3 (AJ830916, AJ291525), clado G (AJ291539), clado H (AJ291513) y clado I (FN561562). Los diferentes clados de la familia Symbiodiniaceae presentan diferentes atributos genéticos, fisiológicos y ecológicos; por lo que estos clados se pueden subdividir por un número desconocido de filoespecies (Hirose et al. 2008, De Palmas et al. 2015, LaJeunesse et al. 2018). En estudio con el análisis de la región 28S se obtuvieron los 9 clados aceptados para el grupo. La secuencia de este estudio tuvo mayor afinidad genética con secuencias del clado A, y específicamente con secuencias de la especie de vida libre S. natans de Japón y España (Yamashita y Koike 2013, LaJeunesse et al. 2015). A pesar de que este clado presenta una gran diversidad genética (alrededor de 15 subclados), el marcador 28S nos ayudó a identificar el clado A y la presencia de 4 subclados dentro de este; sin embargo, se ha visto que un marcador altamente variable como el conjunto ITS ayudarían a identificar especificidades con respecto a los ambientes donde se desarrollan estos microrganismos (pelágico y bentónico) y sus asociaciones simbióticas para comprender esta divergencia dentro de un mismo clado o grupo (Mordret et al. 2016).
El clado A presenta una amplia distribución en los océanos Atlántico, Pacífico, Índico y Mar Rojo; sin embargo, algunos subclados pueden estar limitados a ciertas cuencas oceánicas, por ejemplo, el Mar Caribe, de donde se tienen el mayor número de reportes (LaJeunesse et al. 2015). El clado se ha reportado en Callao Salvaje, Tenerife, Islas Canarias (Hansen y Daugbjerg 2009, Guiry y Guiry 2024); en Japón y Hawái (Carlos et al. 1999, Hirose et al. 2008, Yamashita y Koike 2013); en los Cayos de Florida, EE. UU. (Lee et al. 2015); y Puerto Morelos, en el Caribe mexicano (Kemp et al. 2014).
En el sur del Golfo de California se han reportado el clado C (abundante y ampliamente distribuido) como huésped de Pavona gigantea (Verrill), y el clado D (extremófilos, su distribución se centra en el Indo-Occidente del Pacífico) asociado con el coral Pocillopora verrucosa (Ellis & Solander) (Iglesias-Prieto et al. 2004, LaJeunesse et al. 2018, Méndez-Méndez 2020). Este estudio amplía el listado de clados de Symbiodinium presentes en el Golfo de California, al describir la presencia del clado A asociado con la anémona Actinostella sp.
El clado A de Symbiodinium suele estar asociado a corales de aguas poco profundas en el Caribe y pozas de mareas, lo que ha generado la hipótesis de que este clado está adaptado a zonas someras (menores a 1 m), ya que presentan vías de fotoaclimatación y fotoprotección que les permite contrarrestar altas irradiancias y temperaturas elevadas que pueden darse en estos ambientes (Iglesias-Prieto y Trench 1997, Hirose et al. 2008, Takahashi et al. 2009, Yamashita y Koike 2013, Kemp et al. 2014). Los resultados del presente estudio concuerdan con dicha hipótesis, ya que el dinoflagelado fue aislado en la Bahía de La Paz, a una profundidad menor de 1 m (hábitat bentónico), en una zona con alta irradiancia y temperaturas elevadas que en verano pueden alcanzar de 27 a 32 °C (Sea temperature 2024).
Se ha demostrado que el clado A es uno de los más sencillos de cultivar debido a sus características fisiológicas y ecológicas, pudiendo ser no simbióticos de vida libre. Este estudio aporta información para el cultivo en laboratorio de dinoflagelados simbiontes del clado A de la Bahía de La Paz, cultivos que se han mantenido desde el 2018 hasta la actualidad, pudiéndose emplear medios especializados (e.g., ASP-8A), además de los convencionales utilizados para dinoflagelados planctónicos y bentónicos, como IMK, L1, GSe modificado y K modificado (este estudio, Hirose et al. 2008, LaJeunesse et al. 2015, Lee et al. 2015).
CONCLUSIONES
Los resultados de los análisis morfométricos combinados con el análisis filogenético son concluyentes para el taxón Symbiodinium-clado A. El análisis filogenético de la región 28S mostró 9 clados actualmente aceptados para la familia Symbiodiniaceae. El clado A se dividió en diferentes subclados de filoespecies, mostrando que la secuencia PP563703 de la cepa SNCETMAR-2, tiene afinidad filogenética con secuencias de S. natans (taxón actualmente aceptado). Este estudio reportó para la Bahía de La Paz, Golfo de California, la primera descripción detallada de S. natans-clado A, siendo un dinoflagelado que alterna entre 2 fases de vida, una fase de vida libre (planctónica) y otra simbiótica no obligada (bentónica) que presentó asociación con la anémona de mar Actinostella sp.
Agradecimientos
Los autores agradecen a LE Gómez-Lizárraga por el servicio de Microscopía Electrónica de Barrido de la Universidad Nacional Autónoma de México y a SU Cortés-Jiménez por su ayuda en la identificación de la anémona Actinostella sp. Agradecemos a los revisores anónimos por sus valiosas contribuciones, las cuales fueron fundamentales para mejorar este manuscrito.
REFERENCIAS
ABaker AC. 2003. Flexibility and specificity in coral-algal symbiosis: diversity, ecology, and biogeography of Symbiodinium. Annu Rev Ecol Evol Syst. 34(1):661-689. https://doi.org/10.1146/ANNUREV.ECOLSYS.34.011802.132417 [ Links ]
Bigham-Soostani S, Yousefzadi M, Zarei-Darki B, Ranjbar MS. 2021. Evaluation of cytotoxic and antibacterial properties of Symbiodinium sp. isolated and purified from Stichodactyla haddoni in the Persian Gulf and Gulf of Oman. Aquat Physiol Biotechnol. 9(2):125-144. https://doi.org/10.22124/JAPB.2021.18141.1401 [ Links ]
Bustillos-Guzmán J, Band-Schmidt CJ, Durán-Riveroll LM, Hernández-Sandoval FE, López-Cortés DJ, Núñez-Vázquez EJ, Cembella A, Krock B. 2015. Paralytic toxin profile of the marine dinoflagellate Gymnodinium catenatum Graham from the Mexican Pacific as revealed by LC-MS/MS. Food Addit Contam. 32A(3):1-14. https://doi.org/10.1080/19440049.2014.1000978 [ Links ]
Carlos AA, Baillie BK, Kawachi M, Maruyama T. 1999. Phylogenetic position of Symbiodinium (Dinophyceae) isolates from tridacnids (Bivalvia), cardiids (Bivalvia), a sponge (Porifera), a soft coral (Anthozoa), and a free‐living strain. J Phycol. 35(5):1054-1062. https://doi.org/10.1046/j.1529-8817.1999.3551054.x [ Links ]
De Palmas S, Denis V, Ribas-Deulofeu L, Loubeyres M, Woo S, Hwang SJ, Song JI, Chen CA. 2015. Symbiodinium spp. associated with high-latitude scleractinian corals from Jeju Island, South Korea. Coral Reefs. 34:919-925. https://doi.org/10.1007/s00338-015-1286-y [ Links ]
Figueroa RI, Howe-Kerr LI, Correa AMS. 2021. Direct evidence of sex and a hypothesis about meiosis in Symbiodiniaceae. Sci Rep. 11:18838. https://doi.org/10.1038/s41598-021-98148-9 [ Links ]
Graham ER, Parekh A, Devassy RK, Sanders RW. 2015. Carbonic anhydrase activity changes in response to increased temperature and pCO2 in Symbiodinium-zoanthid associations. J Exp Mar Biol Ecol. 473:218-226. https://doi.org/10.1016/j.jembe.2015.08.017 [ Links ]
Granados-Cifuentes C, Neigel J, Leberg P, Rodriguez-Lanetty M. 2015. Genetic diversity of free-living Symbiodinium in the Caribbean: the importance of habitats and seasons. Coral Reefs. 34(3):927-939. https://doi.org/10.1007/s00338-015-1291-1 [ Links ]
Guiry MD, Andersen RA. 2018. Validation of the generic name Symbiodinium (Dinophyceae, Suessiaceae) revisited and the reinstatement of Zooxanthella K. Brandt. Notulae Algarum. 58:1-5. [ Links ]
Guiry MD, Guiry GM. 2024. AlgaeBase. World-wide electronic publication. Galway (Ireland): National University of Ireland; [accessed Feb 2024]. https://www.algaebase.org/search/genus/detail/?genus_id=44695 [ Links ]
Hansen G, Daugbjerg N. 2009. Symbiodinium natans sp. nov.: a “free-living” dinoflagellate from Tenerife (Northeast-Atlantic Ocean). J Phycol. 45(1):251-263. https://doi.org/10.1111/j.1529-8817.2008.00621.x [ Links ]
Hirose M, Reimer JD, Hidaka M, Suda S. 2008. Phylogenetic analyses of potentially free-living Symbiodinium spp. isolated from coral reef sand in Okinawa, Japan. Mar Biol. 155:105-112. https://doi.org/10.1007/s00227-008-1011-2 [ Links ]
Hoppenrath M, Chomerat N, Horiguchi T, Murray SA, Rhodes L. 2023. Marine benthic dinoflagellates - their relevance for science and society. 2nd ed. Stuttgart (Germany): E. Schweizerbart’sche Verlagsbuchhandlung (Nägele u. Obermiller) and Senckenberg Geselschaft für Naturforschung. 376 p. [ Links ]
Hosoi-Tanabe S, Otake I, Sako Y. 2006. Phylogenetic analysis of noxious red tide flagellates Chattonella antiqua, C. marina, C. ovata, and C. verruculosa (Raphidophyceae) based on the rRNA gene family. Fish Sci. 72:1200-1208. https://doi.org/10.1111/j.1444-2906.2006.01277.x [ Links ]
Iglesias-Prieto R, Beltrán VH, LaJeunesse TC, Reyes-Bonilla H, Thomé PE. 2004. Different algal symbionts explain the vertical distribution of dominant reef corals in the eastern Pacific. Proc R Soc Lond B Biol Sci. 271:1757-1763. https://doi.org/10.1098/rspb.2004.2757 [ Links ]
Iglesias-Prieto R, Matta JL, Robins WA, Trench RK. 1992. Photosynthetic response to elevated temperature in the symbiotic dinoflagellate Symbiodinium microadriaticum in culture. Proc Natl Acad Sci. 89(21):10302-10305. https://doi.org/10.1073/pnas.89.21.10302 [ Links ]
Iglesias-Prieto R, Trench RK. 1994. Acclimation and adaptation to irradiance in symbiotic dinoflagellates. I. Responses of the photosynthetic unit to changes in photon flux density. Mar Ecol Prog Ser. 113:163-175. https://doi.org/10.3354/meps113163 [ Links ]
Iglesias-Prieto R, Trench RK. 1997. Acclimation and adaptation to irradiance in symbiotic dinoflagellates. II. Response of chlorophyll-protein complexes to different photon-flux densities. Mar Biol. 130(1):23-33. https://doi.org/10.1007/s002270050221 [ Links ]
Jeong HJ, Lee SY, Kang NS, Yoo YD, Lim AS, Lee MJ, Kim HS, Yih W, Yamashita H, LaJeunesse TC. 2014. Genetics and morphology characterize the dinoflagellate Symbiodinium voratum, n. sp., (Dinophyceae) as the sole representative of Symbiodinium Clade E. J Eukaryot Microbiol. 61(1):75-94. https://doi.org/10.1111/jeu.12088 [ Links ]
Keller MD, Selvin RC, Claus W, Guillard RRL. 1987. Media for the culture of oceanic ultraplankton. J Phycol. 23(4):633-638. https://doi.org/10.1111/j.1529-8817.1987.tb04217.x [ Links ]
Kemp DW, Hernandez-Pech X, Iglesias-Prieto R, Fitt WK, Schmidt GW. 2014. Community dynamics and physiology of Symbiodinium spp. before, during, and after a coral bleaching event. Limnol Oceanogr. 59(3):788-797. https://doi.org/10.4319/lo.2014.59.3.0788 [ Links ]
LaJeunesse TC, Lee SY, Gil-Agudelo DL, Knowlton N, Jeong HJ. 2015. Symbiodinium necroappetens sp. nov. (Dinophyceae): an opportunist ‘zooxanthella’ found in bleached and diseased tissues of Caribbean reef corals. Eur J Phycol. 50(2):223-238. https://doi.org/10.1080/09670262.2015.1025857 [ Links ]
LaJeunesse TC, Parkinson JE, Gabrielson PW, Jeong HJ, Reimer JD, Voolstra CR, Santos SR. 2018. Systematic revision of Symbiodiniaceae highlights the antiquity and diversity of coral endosymbionts. Curr Biol. 28(16):2570-2580.e6. https://doi.org/10.1016/j.cub.2018.07.008 [ Links ]
Lee SY, Jeong HJ, Kang NS, Jang TY, Jang SH, Lajeunesse TC. 2015. Symbiodinium tridacnidorum sp. nov., a dinoflagellate common to Indo-Pacific giant clams, and a revised morphological description of Symbiodinium microadriaticum Freudenthal, emended Trench & Blank. Eur J Phycol. 50(2):155-172. https://doi.org/10.1080/09670262.2015.1018336 [ Links ]
Méndez-Méndez SM. 2020. Expresión diferencial de genes en Cladocopium sp. de dos especies de coral en el Golfo de California [dissertation]. [Mexico]: CIBNOR. 80 p. [ Links ]
Mordret S, Romac S, Henry N, Colin S, Carmichael M, Berney C, Audic S, Richter DJ, Pochon X, de Vargas C, et al. 2016. The symbiotic life of Symbiodinium in the open ocean within a new species of calcifying ciliate (Tiarina sp.) The ISME J. 10(6):1424-1436. https://doi.org/10.1038/ismej.2015.211 [ Links ]
Parkinson JE, Coffroth MA, LaJeunesse TC. 2015. New species of Clade B Symbiodinium (Dinophyceae) from the greater Caribbean belong to different functional guilds: S. aenigmaticum sp. nov., S. antillogorgium sp. nov., S. endomadracis sp. nov., and S. pseudominutum sp. nov. J Phycol. 51(5):850-858. https://doi.org/10.1111/jpy.12340 [ Links ]
Pawlowski J, Holzmann M, Fahrni JF, Pochon X, Lee JJ. 2001. Molecular identification of algal endosymbionts in large miliolid Foraminifera: 2. Dinoflagellates. J Eukaryot Microbiol. 48(3):368-373. https://doi.org/10.1111/j.1550-7408.2001.tb00326.x [ Links ]
Pochon X, Gates RD. 2010. A new Symbiodinium clade (Dinophyceae) from soritid foraminifera in Hawai’i. Mol Phylogenet Evol. 56(1):492-497. https://doi.org/10.1016/j.ympev.2010.03.040 [ Links ]
Ramos-Santiago AE. 2023. Taxonomía morfológica y molecular de dinoflagelados epibentónicos del Golfo de California [dissertation]. [Mexico]: CICIMAR-IPN. 203 p. [ Links ]
Sampayo EM, Dove S, LaJeunesse TC. 2009. Cohesive molecular genetic data delineate species diversity in the dinoflagellate genus Symbiodinium. Mol Ecol. 18(3):500-519. https://doi.org/10.1111/j.1365-294X.2008.04037.x [ Links ]
Santos SR, Taylor DJ, Coffroth MA. 2001. Genetic comparisons of freshly isolated versus cultured symbiotic dinoflagellates: Implications for extrapolating to the intact symbiosis. J Phycol. 37(5):900-912. https://doi.org/10.1046/j.1529-8817.2001.00194.x [ Links ]
Sea temperature. 2024. Water temperature in La Paz (BCS); [accessed Feb 2024]. https://seatemperature.info/august/mexico/la-paz-water-temperature.html [ Links ]
Takabayashi M, Adams LM, Pochon X, Gates RD. 2012. Genetic diversity of free-living Symbiodinium in surface water and sediment of Hawai̔i and Florida. Coral Reefs. 31(1):157-167. http://doi.org/10.1007/s00338-011-0832-5 [ Links ]
Takahashi S, Whitney SM, Badger MR. 2009. Different thermal sensitivity of the repair of photodamaged photosynthetic machinery in cultured Symbiodinium species. Proc Natl Acad Sci. 106:3237-3242. https://doi.org/10.1073/pnas.0808363106 [ Links ]
Taylor FJR, Harrison PJ. 1983. Ecological aspects of intracellular symbiosis. In: Schenk HEA, Schwemmler W, Intracellular Space as Oligogenetic Ecosystem. Berlin (Germany): De Gruyter. p. 828-842. https://doi.org/10.1515/9783110841237-086 [ Links ]
Wilcox TP. 1998. Large-subunit ribosomal RNA systematics of symbiotic dinoflagellates: morphology does not recapitulate phylogeny. Mol Phylogenet Evol. 10(3):436-448. [ Links ]
Yamashita H, Koike K. 2013. Genetic identity of free-living Symbiodinium obtained over a broad latitudinal range in the Japanese coast. Phycol Res. 61(1):68-80. https://doi.org/10.1111/pre.12004 [ Links ]
Yorifuji M, Takeshima H, Mabuchi K, Watanabe T, Nishida M. 2015. Comparison of Symbiodinium dinoflagellate flora in sea slug populations of the Pteraeolidia ianthina complex. Mar Ecol Prog Ser. 521:91-104. https://doi.org/10.3354/meps11155 [ Links ]
DECLARACIONES FINALES
Material suplementario: El material suplementario de este trabajo se puede descargar del siguiente enlace: https://www.cienciasmarinas.com.mx/index.php/cmarinas/article/view/3498/420421132
Fondos
Este estudio fue financiado con proyectos de la Secretaría de Ciencia, Humanidades, Tecnología e Innovación (SECIHTI) A1-S-14968, SECIHTI Proyecto Nacional de Investigación e Incidencia, Programas Nacionales Estratégicos SSyS 319104 y los proyectos institucionales SIP 2024-0544 y SIP 2024-0486. AER-S fue beneficiaria de las becas SECIHTI 1151607 y B210365 de la Beca de Estímulo Institucional de Formación de Investigadores. CJB-S es becario del Programa de Estímulos al Desempeño de los Investigadores y Comisión de Operación y Fomento de Actividades Académicas del Instituto Politécnico Nacional.
Disponibilidad de datos: Se pueden obtener los datos para este estudio a través del autor correspondiente bajo petición razonable.
Recibido: 10 de Junio de 2024; Aprobado: 13 de Diciembre de 2024
 This is an open-access article distributed under the terms of the Creative Commons Attribution License
