


Serviços Personalizados
Journal
Artigo
 texto em
 Inglês (pdf)
 Artigo em XML
 Referências do artigo

 Tradução automática
 Enviar este artigo por email
Indicadores
-
 Citado por SciELO
-
 Acessos
Links relacionados
-
 Similares em
SciELO
Compartilhar

 Permalink

Ciencias marinas
versão impressa ISSN 0185-3880
Cienc. mar vol.50 no.1b Ensenada 2024 Epub 20-Maio-2025
https://doi.org/10.7773/cm.y2025.3495
Artículo de Investigación
Comparación de la riqueza y abundancia de peces arrecifales criptobentónicos en microhábitats coralinos y rocosos en Bahía de los Ángeles, Golfo de California
1
 http://orcid.org/0000-0002-3966-3624
1
http://orcid.org/0000-0003-1970-4289
1Programa de posgrado en Ecología Marina, Centro de Investigación Científica y de Educación Superior de Ensenada (CICESE), Carretera Ensenada-Tijuana, Zona Playitas, 22860 Ensenada, Baja California, Mexico.
2Centro de Investigación Científica y de Educación Superior de Ensenada (CICESE), Carretera Ensenada-Tijuana, Zona Playitas, 22860 Ensenada, Baja California, Mexico.
Los ecosistemas rocosos-coralinos poseen hábitats altamente heterogéneos y comunidades de peces funcionalmente diversas. En estos ecosistemas, los microhábitats coralinos juegan un papel importante al proporcionar un subconjunto de los recursos disponibles a la criptofauna, entre los que destacan los peces arrecifales criptobentónicos (PACB) por su alta abundancia y diversidad. Este grupo íctico, que mide menos de 5 cm de longitud en su etapa adulta, presenta un camuflaje visual y conductual altamente especializado, lo que a menudo resulta en su subrepresentación en los estudios. Debido a la escasez de estudios y la alta complejidad taxonómica de los PACB, exploramos la asociación entre los PACB y el coral masivo Porites panamensis en Bahía de los Ángeles, Golfo de California, y el sustrato rocoso. Hipotetizamos que la densidad de PACB será mayor en microhábitats coralinos debido a que estos microhábitats son tridimensionalmente más complejos. Se realizaron 2 muestreos extractivos en marzo y octubre de 2022 (n = 16). En total, se recolectaron 238 individuos de 14 especies de peces pertenecientes a 5 familias; el 76.62% de la abundancia total estuvo representada por 5 especies, y las familias Gobiidae, Tripterygiidae y Chaenopsidae fueron las mejor representadas. La densidad promedio de PACB en los microhábitats de P. panamensis fue 2 veces mayor que en los microhábitats rocosos (W = 46.5, P = 0.036). Además, la estructura y composición del ensamblaje de PACB fue diferente entre los microhábitats (Pseudo-F = 4.41, P = 0.004). Los resultados demuestran la importancia de P. panamensis como microhábitat y su influencia en la configuración bentónica de los PACB. Ante el creciente deterioro de la cobertura coralina y la pérdida de la complejidad estructural del hábitat, los resultados de este estudio son cruciales para entender los cambios a largo plazo en la criptofauna.
Palabras clave: microhábitat; endemismo; complejidad del hábitat; criptofauna; peces arrecifales criptobentónicos; Gobiidae; Tripterygiidae; Chaenopsidae
Rocky-coral ecosystems host highly heterogeneous habitats and functionally diverse fish communities. Within these systems, coral microhabitats play a pivotal role by offering a subset of the available resources to cryptofauna, particularly cryptobenthic reef fishes (CRF), which are notable for their abundance and diversity. This group of fishes, with adult lengths of less than 5 cm, shows highly specialized visual and behavioral camouflage, which often leads to their underrepresentation in studies. Due to the scarcity of research and the significant taxonomic complexity of CRF, this study investigated the association between CRF and the massive coral Porites panamensis in Bahía de los Ángeles, Gulf of California, and rocky substrate. We hypothesized that CRF densities would be higher in coral microhabitats because of their superior three-dimensional complexity. Two extractive sampling efforts were conducted in March and October 2022 (N = 16). A total of 238 individuals were collected, representing 14 species from 5 fish families. Five species accounted for 76.62% of the total abundance, with the families Gobiidae, Tripterygiidae, and Chaenopsidae being the most represented. The average density of CRF in P. panamensis microhabitats was twice that observed in rocky microhabitats (W = 46.5, P = 0.036). Moreover, CRF assemblage structure and composition differed significantly between microhabitats (Pseudo-F = 4.41, P = 0.004). These findings highlight the critical role of P. panamensis as a microhabitat and its influence on the benthic organization of CRF. Given the ongoing degradation of coral cover and the decline in structural habitat complexity, these results are essential to understand long-term shifts in cryptofaunal communities.
Key words: microhabitat; endemism; habitat complexity; cryptofauna; cryptobenthic reef fishes; Gobiidae; Tripterygiidae; Chaenopsidae
INTRODUCCIÓN
Los ecosistemas arrecifales coralinos y sus complejas interacciones ecológicas albergan una gran diversidad de especies marinas, dentro de los cuales se encuentran los peces. La relación entre los peces de arrecife y la cobertura coralina ha sido ampliamente documentada (Muruga et al. 2024), destacando la importancia de las colonias coralinas como áreas de refugio que facilitan la convergencia de diversos procesos ecológicos (Komyakova et al. 2013). Estos procesos e interacciones, junto con el uso y la distribución de los recursos, desempeñan un papel clave en la estructuración de las comunidades bentónicas. A nivel global, se han identificado más de 320 especies de peces que utilizan a los corales vivos como su principal hábitat y refugio, lo que representa aproximadamente el 8% de la diversidad total de los peces de arrecife (Coker et al. 2014). Estas interacciones pueden ser debidas a la búsqueda o establecimiento de un refugio (i.e., Cirrhitidae), alimentación (i.e., Stegastes) y depredación (i.e., Scaridae), entre otros procesos ecológicos (Depczynski y Bellwood 2003). Sin embargo, un gran número de especies de peces arrecifales no son dependientes obligados de los corales vivos, por lo que realizan un amplio uso del ecosistema e influyen en la trofodinámica de los arrecifes (Depczynski y Bellwood 2003, Cooker et al. 2014).
La mayoría de los estudios sobre las asociaciones entre peces y corales se han concentrado en regiones de alta diversidad y amplias extensiones de cobertura coralina, como el Caribe (Olán-González et al. 2020) o el Indo-Pacífico (Holbrook et al. 2008, Coker et al. 2014, Moynihan et al. 2022). En ambas regiones, se ha observado que la diversidad de peces aumenta con la presencia y cobertura de coral (Coker et al. 2014). En este contexto, en el Pacífico Oriental Tropical (POT), se ha evaluado la influencia de las características bentónicas en la estructuración de la fauna íctica (Dominici-Arosemena y Wolff 2006, Galván-Villa et al. 2011, Ricart et al. 2016, Salas-Moya et al. 2021), no obstante, el efecto del hábitat sobre la ictiofauna en el POT no es del todo claro, ya que algunos autores han sugerido que la diversidad íctica aumenta con una mayor complejidad del hábitat (Benfield et al. 2008), mientras que otros han mencionado que la diversidad de peces disminuye a medida que aumenta la cobertura de coral (Olán-González et al. 2020). Sumado a lo anterior, los arrecifes del POT se consideran parches aislados de coral, denominados arrecifes rocosos-coralinos bordeantes, principalmente debido a la estrecha plataforma continental que impide el desarrollo de grandes extensiones de arrecifes (Reyes-Bonilla 2003), ya que la mayoría de las especies formadoras de arrecifes coralinos (i.e., Pocillopora) no se desarrollan más allá de los 8 m de profundidad (López-Pérez et al. 2024).
En los peces arrecifales existe un grupo denominado peces arrecifales criptobentónicos (PACB), que son peces pequeños que no superan los 5 cm de longitud total en su etapa adulta (Depczynski y Bellwood 2003, Brandl et al. 2018). Los PACB poseen dispersión limitada, baja longevidad, ciclos generacionales cortos y una alta especialización sobre sus preferencias de hábitat (Hastings y Galland 2010, Brandl et al. 2018). Además, los PACB pueden representar más del 40% de la diversidad de especies ícticas en arrecifes tropicales (Ackerman y Bellwood 2000) y hasta el 85% de la abundancia total (Galland et al. 2017). Sin embargo, evaluar el ensamblaje de los PACB no es sencillo debido a la dificultad para obtenerlos, la extrema miniaturización de sus estructuras anatómicas que complica su identificación y la gran variación de color en sus diferentes etapas de crecimiento (Brandl et al. 2018). Por lo tanto, los PACB dependen en gran medida de la disponibilidad de microhábitats específicos debido a su especialización en las preferencias de hábitat. Los microhábitats son áreas pequeñas dentro de un hábitat de mayor tamaño que se diferencian del entorno circundante por características estructurales, faunísticas, ecológicas o climáticas (Morrison et al. 2012, Shi et al. 2016). Por lo que, al estudiar a los PACB, los microhábitats suelen clasificarse en función de las características de las estructuras bentónicas presentes (i.e., grietas, escombro coralino o canto rodado) o por el tipo de morfología coralina (Depczynski y Bellwood 2004, Brooks et al. 2007, Troyer et al. 2018).
En la región centro-norte del Golfo de California, los arrecifes rocosos están constituidos principalmente por la especie Porites panamensis que forma colonias y parches aislados (Reyes-Bonilla y López-Pérez 2009), con valores promedio del porcentaje de cobertura de alrededor del 1% (Glynn et al. 2017), aunque en algunas regiones del Golfo de California, como en Bahía de los Ángeles, esta cifra se incrementa hasta alcanzar el 3.5% (Norzagaray‐López et al. 2015). Esta especie de coral podría ser clave en la generación de microhábitats coralinos, contribuyendo notablemente a la biodiversidad del Golfo de California, un ecosistema que alberga aproximadamente 4,852 especies de invertebrados y 911 especies de peces (Brusca 2010), y entre 16 y 20 especies de corales escleractinios, con los géneros Pocillopora y Porites siendo los más abundantes (Reyes-Bonilla et al. 2005, Glynn et al. 2017). Debido a esto, el estudio de los peces asociados a microhábitats coralinos es fundamental para entender su papel ecológico.
En los últimos años, el uso de herramientas de modelado 3D y fotogrametría ha revolucionado el estudio de las estructuras coralinas. Estas tecnologías permiten obtener datos precisos sobre la tridimensionalidad y la complejidad de las estructuras del fondo marino, lo que ha transformado la investigación de los arrecifes coralinos (Storlazzi et al. 2016, Urbina‐Barreto et al. 2022). Además, permiten superan las limitaciones a pequeña escala de los métodos tradicionales al permitir la reconstrucción 3D de colonias coralinas individuales y de microhábitats (Urbina-Barreto et al. 2021), lo que ha facilitado el estudio de la criptofauna asociada (Curtis et al. 2023). Considerando estos antecedentes, utilizamos herramientas de modelado 3D para evaluar la complejidad e importancia del coral masivo P. panamensis y su influencia en la estructuración de los PACB. Para ello, se recolectaron los peces en microhábitats constituidos por coral y roca para posteriormente evaluar su asociación a estas estructuras. Por lo tanto, el objetivo de este estudio fue comparar la densidad, estructura y composición de la comunidad de PACB entre microhábitats conformados por el coral P. panamensis y microhábitats rocosos. Hipotetizamos que la riqueza y la densidad de PACB serán mayores en microhábitats coralinos debido a que estos microhábitats son tridimensionalmente más complejos. Este estudio proporciona evidencia empírica para comprender mejor la asociación de los PACB con los microhábitats presentes en el Golfo de California.
MATERIALES Y MÉTODOS
Área de estudio
El estudio se llevó a cabo en un arrecife rocoso-coralino somero ubicado en la parte sur de la Isla La Llave (Fig. 1a). Esta isla se ubica dentro de la Reserva de la Biósfera Zona Marina Bahía de los Ángeles, Canales de Ballenas y de Salsipuedes, en la región centro-norte del Golfo de California. Esta región se caracteriza por su clima árido y presenta amplias variaciones climáticas estacionales. En el periodo comprendido entre febrero y abril, la temperatura superficial del mar puede descender a menos de 16 °C, mientras que, en los meses de agosto y septiembre, puede superar los 27 °C (Martínez-Fuentes et al. 2022).
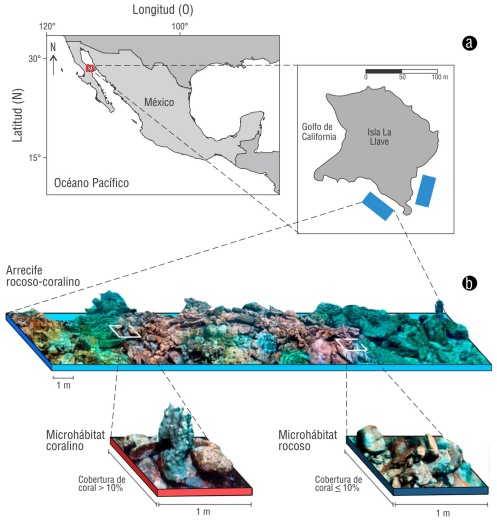
Figura 1 Área de estudio. Los polígonos azules indican las áreas en donde se realizó el muestreo en Isla La Llave, Reserva de la Biósfera Zona Marina Bahía de los Ángeles, Canales de Ballenas y de Salsipuedes (a). Dibujo esquemático de arrecife rocoso-coralino compuesto de microhábitats coralinos (Porites panamensis) y microhábitats rocosos (b).
Trabajo de campo
Para comparar los ensamblajes de PACB en los microhábitats coralinos y rocosos, se realizaron 2 salidas de campo, la primera en marzo de 2022 y la segunda en octubre de 2022. En cada temporada se obtuvieron 8 unidades muestrales (Tabla S1). Los microhábitats coralinos se definieron como áreas de 1 m de ancho por 1 m de largo, con un porcentaje de cobertura coralina de P. panamensis superior al 10% (Fig. 1b). En contraste, los microhábitats rocosos se clasificaron como áreas con una cobertura coralina igual o inferior al 10%, y una predominancia de roca. Es importante mencionar que P. panamensis es la única especie de coral escleractinio observada en el área de estudio.
Se analizaron 16 microhábitats a profundidades promedio de ∼5.7 m con equipo de buceo autónomo: 5 microhábitats coralinos y 11 microhábitats rocosos (Tabla S1). En primer lugar, se colocó una referencia métrica de 12 cm de diámetro y se realizaron grabaciones de 1 min mediante un barrido circular para capturar la estructura tridimensional de cada microhábitat. Las grabaciones se realizaron con una cámara GoPro Hero 10 (GoPro, San Mateo, EE. UU.) configurada a una resolución de 2,704 × 1,520 pixeles (2K) y una velocidad de 60 fotografías por segundo. Posteriormente, se extrajeron los peces de cada microhábitat utilizando una red cónica con un área de abertura de 0.42 m2, con luz de malla de 0.5 mm (Fig. S1), y utilizando una disolución compuesta por 100 mL de aceite de clavo concentrado (eugenol) y 900 mL de etanol al 96% como anestésico (Depczynski y Bellwood 2004). Se esperó alrededor de 1 min para que el anestésico hiciera efecto y se recolectaron todos los peces que se encontraban dentro de la red. En el laboratorio, cada individuo se identificó a nivel de especie con base en los trabajos de Ginsburg (1938), Rosenblatt y Taylor (1971), Bussing (1990) y Robertson et al. (2024). Para elaborar el listado final, el nombre de cada especie se corroboró y se validó usando el catálogo de Eschmeyer (Fricke et al. 2023).
Procesamiento de imágenes
Para generar modelos 3D de los microhábitats en el software Agisoft Metashape (Agisoft LLC, San Petersburgo, Rusia), se extrajeron los fotogramas de cada video del microhábitat siguiendo las metodologías de Burns et al. (2015) y Fukunaga et al. (2019). La estimación de la cobertura de coral se realizó a partir de los ortomosaicos del modelo 3D con el software Coral Point Count with Excel extensions (Kohler y Gill 2006), superponiendo 30 puntos aleatorios en cada microhábitat (Tabugo et al. 2016). La rugosidad 3D se estimó a partir de los modelos 3D con la metodología de Ventura et al. (2020), empleando la siguiente fórmula:
donde R 3D es la rugosidad 3D como proxy de la complejidad del hábitat, SA 3D es el área tridimensional del modelo del microhábitat y A 2D es el área planar o el área de la base ocupada por el modelo del microhábitat.
Análisis de datos
La comparación de la rugosidad 3D, riqueza y densidad de PACB entre microhábitats coralinos y rocosos se realizó mediante un análisis Mann-Whitney-Wilcoxon usando la paquetería ‘stats’. En cambio, la comparación de la composición y estructura del ensamblaje de PACB entre los microhábitats se realizó con un análisis multivariado de varianza permutacional (PERMANOVA, por sus siglas en inglés) de un factor utilizando una matriz de disimilitud de Bray-Curtis basada en los datos transformados de la densidad de PACB (
Finalmente, la evaluación de la preferencia de las especies por los microhábitats coralinos y rocosos se realizó mediante un análisis de porcentajes de similitud (SIMPER, por sus siglas en inglés) y se ilustró gráficamente realizando un diagrama aluvial. El análisis SIMPER permite discriminar entre 2 grupos de especies basándose en las disimilitudes de Bray-Curtis y provee la contribución promedio por especie (Oksanen et al. 2019):
donde δ
jk
i es la disimilitud asociada a la i-ésima especie entre las muestras j y k. Al promediar δ
jk
i, se obtiene la contribución promedio por especie (
RESULTADOS
Se recolectaron 238 PACB de 14 especies; 76.62% estuvo representado por 5 especies: Elacatinus puncticulatus, Crocodilichthys gracilis, Lythrypnus pulchellus, Lythrypnus dalli y Barbulifer pantherinus (Fig. 2). La riqueza promedio de PACB fue ligeramente mayor en los microhábitats coralinos en comparación con los microhábitats rocosos, con valores de 5.6 ± 1.3 (
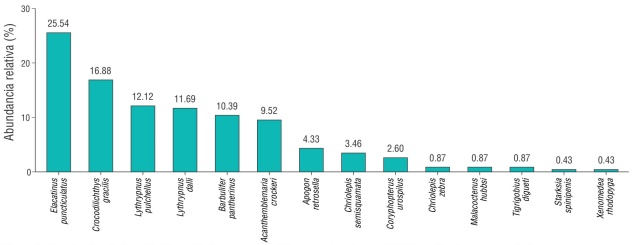
Figura 2 Abundancia relativa (%) del total de los peces arrecifales criptobentónicos (PACB) analizados en este trabajo.
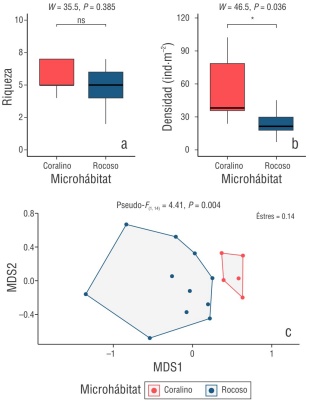
Figura 3 Comparación de la riqueza (a) y densidad (b) de peces arrecifales criptobentónicos (PACB) en microhábitats coralinos (Porites panamensis) y microhábitats rocosos. Análisis de la composición del ensamblaje mediante el escalamiento multidimensional no métrico (NMDS, por sus siglas en inglés) de la densidad de las 14 especies de PACB en los 16 microhábitats analizados (c). En la parte superior del gráfico se muestran los resultados de los análisis de Mann-Whitney-Wilcoxon y análisis multivariado de varianza permutacional (PERMANOVA, por sus siglas en inglés).
El análisis PERMANOVA mostró diferencias significativas en la estructura y composición del ensamblaje de PACB entre los microhábitats coralinos y rocosos (Pseudo-F = 4.4, P = 0.004). Del mismo modo, el NMDS mostró un ordenamiento diferencial de 2 grupos claramente definidos, evidenciando de manera gráfica la disimilitud en la estructura y composición del ensamblaje de PACB para cada microhábitat (Fig. 3c). El análisis SIMPER permitió identificar a las especies de PACB que más contribuyeron con esta disimilitud entre microhábitats (Tabla 1). Las especies E. puncticulatus, Acanthemblemaria crockeri y L. dalli fueron las principales responsables de las diferencias entre los microhábitats. A su vez, estas fueron las que presentaron valores más altos de densidad en microhábitats coralinos, mientras otras especies, como C. gracilis, Apogon retrosella, Chriolepis semisquamata y Coryphopterus urospilus, presentaron valores más altos en microhábitats rocosos (Tabla 1, Tabla S2). Complementariamente, el diagrama aluvial permitió la representación gráfica de la estructura típica de los ensamblajes de PACB en microhábitats coralinos y rocosos (Fig. 4). En cuanto a la complejidad del hábitat, la rugosidad 3D en los microhábitats coralinos alcanzó un valor promedio de 2.03 ± 0.56, mientras que en los microhábitats rocosos fue de 1.69 ± 0.40. No obstante, estas diferencias entre microhábitats no fueron significativas (Mann-Whitney-Wilcoxon, W = 38, P = 0.257).
Tabla 1 Densidad promedio y análisis del porcentaje de similitud (SIMPER) de todas las especies de peces arrecifales criptobentónicos (PACB) recolectados en microhábitats coralinos (Porites panamensis) y microhábitats rocosos. *Especies endémicas de la provincia biogeográfica de Cortez (Palacios-Salgado et al. 2012).
| Especie | Densidad promedio (ind·m-2) | |||
| Contribución promedio (%) | Valor P | Coralino
( |
Rocoso
( |
|
| Elacatinus puncticulatus | 19.05 ± 7.26 | 4.11 ± 1.25 | 17.66 | 0.020 |
| Acanthemblemaria crockeri* | 9.05 ± 1.75 | 0.65 ± 0.46 | 12.21 | 0.001 |
| Lythrypnus dalli | 9.05 ± 4.15 | 1.73 ± 0.79 | 10.70 | 0.008 |
| Barbulifer pantherinus* | 7.62 ± 3.48 | 1.73 ± 0.56 | 7.37 | 0.094 |
| Crocodilichthys gracilis* | 4.76 ± 1.99 | 6.28 ± 1.99 | 7.27 | 0.995 |
| Lythrypnus pulchellus | 4.29 ± 2.65 | 4.11 ± 2.73 | 6.80 | 0.967 |
| Apogon retrosella | 2.16 ± 0.50 | 3.11 | 0.713 | |
| Chriolepis semisquamata* | 1.73 ± 0.85 | 2.35 | 0.991 | |
| Coryphopterus urospilus | 1.30 ± 0.67 | 2.21 | 0.981 | |
| Tigrigobius digueti | 0.95 ± 0.95 | 0.76 | 0.023 | |
| Chriolepis zebra* | 0.43 ± 0.29 | 0.63 | 0.981 | |
| Malacoctenus hubbsi* | 0.43 ± 0.43 | 0.54 | 0.987 | |
| Starksia spinipenis | 0.48 ± 0.48 | 0.47 | 0.021 | |
| Xenomedea rhodopyga* | 0.48 ± 0.48 | 0.47 | 0.021 | |
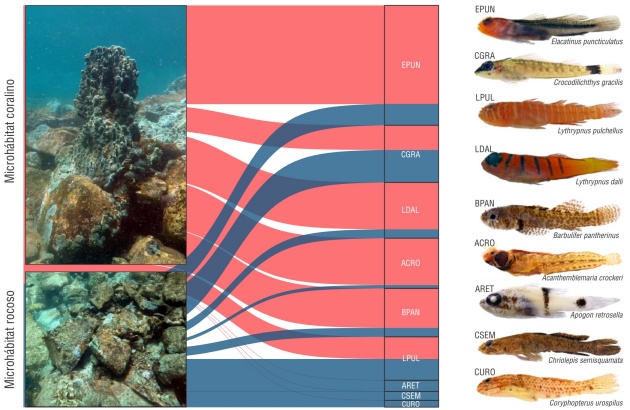
Figura 4 Diagrama aluvial de la preferencia de las especies de peces arrecifales criptobentónicos más abundantes y sus afinidades hacia los microhábitats coralinos y rocosos. EPUN = Elacatinus puncticulatus, CURO = Coryphopterus urospilus, CGRA = Crocodilichthys gracilis, LPUL = Lythrypnus pulchellus, LDAL = Lythrypnus dalli, BPAN = Barbulifer pantherinus, ACRO = Acanthemblemaria crockeri, ARET = Apogon retrosella, CSEM = Chriolepis semisquamata. El grosor de las líneas es proporcional a la densidad promedio de cada especie en cada microhábitat.
DISCUSIÓN
En el Pacífico mexicano, numerosos estudios han explorado la influencia de la complejidad del hábitat en la estructuración del ensamblaje de peces (i.e., Aburto-Oropeza y Balart 2001, López-Pérez et al. 2013). Sin embargo, estas investigaciones generalmente han involucrado especies conspicuas y evaluado características relativamente generales de los arrecifes, como la cobertura coralina, rugosidad del fondo o variables derivadas de análisis de la diversidad funcional (Olán-González et al. 2020, Dubuc et al. 2023). Han sido escasos los trabajos en el POT que han analizado, en una escala espacial muy fina (i.e., 1 × 1 m), la influencia de los microhábitats (i.e., corales blandos, corales duros, roca y escombro) en la estructuración del ensamblaje de peces crípticos (Alzate et al. 2014, Galland et al. 2017, González-Murcia et al. 2023). Este estudio analizó la importancia del coral P. panamensis en la estructuración de PACB del centro-norte del Golfo de California, y los resultados ofrecen una ventana para explorar la importancia de este grupo de peces poco evaluados y como pueden verse influenciados por las características del microhábitat, particularmente en corales formadores de arrecifes.
Los corales del género Porites pueden desarrollar hábitats de gran complejidad, llegando a medir más de 6 m de diámetro y albergar una abundancia y diversidad notable de peces arrecifales (Nanami y Nishihira 2004). Se ha documentado que las colonias de Porites con morfología columnar ramificada albergan una riqueza funcional de peces aún mayor en comparación con los corales del género Pocillopora (Richardson et al. 2017). En este estudio, no se observaron diferencias en la riqueza de PACB entre microhábitats rocosos y coralinos, lo cual difiere a lo reportado en el Pacífico de Panamá por Dominici-Arosemena y Wolff (2006), quienes observaron diferencias en la diversidad de peces entre microhábitats de corales masivos, corales ramificados y escombros coralinos. Sin embargo, en este trabajo probablemente no observamos diferencias significativas entre microhábitats debido al bajo número de especies registradas. En microhábitats rocosos, se registró una riqueza específica acumulada de 11 especies, y en microhábitats coralinos, la riqueza acumulada fue de 9 especies (Tabla 1). Es bien conocido que la riqueza específica depende del esfuerzo de muestreo (Magurran 2003), por lo que estudios espacio-temporales a largo plazo redundarán notablemente en mejorar la calidad del inventario biológico de ambos microhábitats.
Por otra parte, en este estudio, la densidad promedio de PACB en microhábitats rocosos fue de 24.68 ± 4.06 ind·m-2, la cual fue muy similar a los 20.9 ± 1.7 ind·m-2 reportados por González-Cabello y Bellwood (2009) en Bahía de Loreto, Golfo de California. Contrario a nuestros resultados, estos autores observaron densidades relativamente bajas en colonias coralinas, en donde las especies Protemblemaria bicirris (20.66%) y A. crockeri (14.37%) fueron las especies dominantes. En cambio, en este trabajo, observamos que A. crockeri presentó mayor densidad en microhábitats con cobertura coralina (9.05 ± 1.75 ind·m-2), en comparación con microhábitats rocosos (0.65 ± 0.46 ind·m-2), mientras que González-Cabello y Bellwood (2009) observaron un patrón opuesto para esta especie, siendo más abundante en roca (5.00 ± 1.24 ind·m-2) que en las cabezas de coral (Pocillopora) (1.50 ± 0.85 ind·m-2). Esto sugiere que factores locales, junto con la disponibilidad y la estructura del hábitat, influyen tanto en la distribución como en las preferencias de hábitat de las especies (Arias-González et al. 2006). Por lo tanto, nuestra hipótesis se confirmó de manera parcial. Aunque se registraron valores más altos de densidad en los microhábitats coralinos, esto no se reflejó en un incremento en la riqueza. Esperábamos que la complejidad del hábitat fuera un factor determinante bajo la premisa de que los corales presentarían mayor complejidad estructural. Sin embargo, los análisis no mostraron diferencias significativas en la rugosidad 3D, lo que sugiere que los corales no fueron estructuralmente más complejos que los microhábitats rocosos.
Es importante enfatizar en que únicamente se ha detectado a P. panamensis como una especie importante en la construcción de arrecifes coralinos someros en Bahía de los Ángeles, mientras que más al sur (i.e., Loreto), se ha reportado que otras especies de corales duros formadores de arrecifes coralinos son más importantes en términos de cobertura coralina (i.e., Pocillopora). Por lo que, los resultados de González-Cabello y Bellwood (2009) y los de este trabajo podrían indicar que existen ensamblajes de PACB para cada especie de coral. Troyer et al. (2018) determinaron que existe una estructuración de PACB para cada tipo de sustrato en arrecifes someros del Mar Rojo, en donde la abundancia, diversidad y riqueza de especies fue mayor en microhábitats de escombro que en arrecifes de coral o sustrato arenoso; sin embargo, a nivel del ensamblaje de especies, identificaron especies particulares para cada tipo de microhábitat. De hecho, Brandl et al. (2018) y Brandl et al. (2020) han descrito ensamblajes únicos para cada tipo de sustrato o microhábitat y han determinado que, además de una marcada diferenciación en el ensamblaje de especies, existe una marcada partición del nicho trófico intra o interespecífica.
En el norte del Golfo de California, es probable que P. panamensis desempeñe un papel funcional crucial como microhábitat de PACB, similar a lo observado en especies criptobentónicas en otras regiones del mundo (Brandl et al. 2018, Troyer et al. 2018). Aunque en este trabajo no se evaluó la importancia de los PACB en la trofodinámica del arrecife, es bien conocido que los PACB del Golfo de California contribuyen sustancialmente al reciclamiento de materia y energía. Galland et al. (2017) demostraron que, en el Golfo de California, los PACB representaron más del 40% en promedio de la riqueza de especies por sitio, más del 95% de la abundancia total de peces y hasta el 56% de los requerimientos metabólicos en un arrecife. Estos autores dividieron el Golfo de California en norte y sur (Bahía de los Ángeles está en el norte de esta división), y reportaron que existe una mayor contribución de PACB en biomasa, abundancia y metabolismo en el norte. Por lo tanto, los autores sugieren que los PACB son un grupo de peces cruciales en el reciclamiento de materia y energía, aunque esta contribución parece tener mayor relevancia en las islas del norte del Golfo de California que en el sur. Incluso, Ackerman y Bellwood (2000) habían obtenido resultados similares en la Isla Orfeo, Australia; estos autores determinaron que los peces de menos de 10 cm de longitud pueden utilizar más del 57% del metabolismo del ecosistema. Brandl et al. (2018) también demostraron que los PACB poseen tasas metabólicas, de mortalidad y fecundidad muy altas, comparado con los peces conspicuos, y concluyeron que los PACB son un grupo biológico con una rotación muy alta en el ecosistema, incluso categorizando a los PACB como la parte “neurálgica” de los arrecifes.
CONCLUSIONES
El Golfo de California se encuentra entre los ecosistemas más diversos y productivos del mundo, en donde 104 especies son PACB (40% son endémicas del Golfo de California; Galland 2013). Los PACB carecen de valor comercial para consumo humano y, por ello, generalmente han sido excluidos de las evaluaciones ictiológicas en el Pacífico mexicano. Sin embargo, desempeñan papeles cruciales dentro de los ecosistemas al estar en estrecha asociación con el bentos, proporcionando vínculos energéticos cruciales entre el bentos y el necton y jugando un rol importante en la trofodinámica de los arrecifes de coral al proporcionar energía hacia consumidores más grandes (Galland et al. 2017). En este estudio obtuvimos que la estructura y composición de los ensamblajes de PACB difiere entre los microhábitats rocosos y coralinos, en donde la densidad de PACB fue mayor en microhábitats coralinos. Además, solo 5 especies contribuyeron con el 76.62% de la abundancia total. Este trabajo representa uno de los primeros esfuerzos en comprender la estructuración de los PACB en los arrecifes someros del Pacífico mexicano. Futuros esfuerzos deben estar enfocados en comprender el papel de los PACB en la trofodinámica de arrecifes en la región y sitios más al sur debido a que, en las últimas décadas en el centro-sur del Pacífico mexicano, se han propuesto programas de recuperación y restauración coralina, y probablemente los PACB jueguen un papel crucial en estos procesos, pero no están siendo evaluados. Además, la baja tolerancia ambiental, tiempos rápidos de recambio poblacional y escaso aprovechamiento de los PACB (Brandl et al. 2018), los convierte en un grupo modelo para generar hipótesis ecológicas en estudios ictiológicos en el Pacífico mexicano.
Agradecimientos
Al Centro de Investigación Científica y de Educación Superior de Ensenada, Baja California (CICESE) y a la Secretaría de Ciencia, Humanidades, Tecnología e Innovación (SECIHTI) por el apoyo institucional y financiero. También a Ofir Molina, Tania González, Marina Mondragón, Alejandra González y Alejandra Vela por su colaboraron en las salidas a campo y procesamiento de muestras. Agradecemos la diligencia de la Comisión Nacional de Áreas Naturales Protegidas (CONANP)-Reserva de la Biosfera Zona Marina (RBZM) Bahía de Los Ángeles, Canal de Ballenas y Salsipuedes. Agradecemos a Ricardo Arce (Ricardo’s Diving Tours) por su apoyo en campo. Mucha gracias a los revisores anónimos que han mejorado la versión de este trabajo. Agradecemos a la Comisión Nacional de Acuacultura y Pesca (CONAPESCA) por su diligencia en el trámite de los permisos de pesca de fomento PPF/DGOPA-035/21 y PPF/DGOPA-085/22.
REFERENCIAS
Aburto-Oropeza O, Balart EF. 2001. Community structure of reef fish in several habitats in the Gulf of California. Mar Ecol. 22:283-305. https://doi.org/10.1046/j.1439-0485.2001.01747.x [ Links ]
Ackerman JL, Bellwood DR. 2000. Reef fish assemblages: a re-evaluation using enclosed rotenone stations. Mar Ecol Prog Ser. 206:227-237. http://dx.doi.org/10.3354/meps206227 [ Links ]
Alzate A, Zapata FA, Giraldo A. 2014. A comparison of visual and collection-based methods for assessing community structure of coral reef fishes in the Tropical Eastern Pacific. Rev Biol Trop. 62:359-371. http://dx.doi.org/10.15517/rbt.v62i0.16361 [ Links ]
Arias-González JE, Done TJ, Page CA, Cheal A, Kininmonth S, Garza-Pérez JR. 2006. Towards a reefscape ecology: relating biomass and trophic structure of fish assemblages to habitat at Davies Reef, Australia. Mar Ecol Prog Ser. 320:29-41. https://doi.org/10.3354/meps320029 [ Links ]
Benfield S, Baxter L, Guzman HM, Mair JM. 2008. A comparison of coral reef and coral community fish assemblages in Pacific Panama and environmental factors governing their structure. J Mar Biol Assoc UK. 88(7):1331-1341. https://doi.org/10.1017/S0025315408002002 [ Links ]
Brandl SJ, Casey JM, Meyer CP. 2020. Dietary and habitat niche partitioning in congeneric cryptobenthic reef fish species. Coral Reefs. 39:305-317. https://doi.org/10.1007/s00338-020-01892-z [ Links ]
Brandl SJ, Goatley CH, Bellwood DR, Tornabene L. 2018. The hidden half: ecology and evolution of cryptobenthic fishes on coral reefs. Biol Rev. 93(4):1846-1873. https://doi.org/10.1111/brv.12423 [ Links ]
Brooks AJ, Holbrook SJ, Schmitt RJ. 2007. Patterns of microhabitat use by fishes in the patch-forming coral Porites rus. Raffles B Zool. 14:245-254. [ Links ]
Brusca RC. 2010. The Gulf of California: Biodiversity and Conservation. Tucson (USA): University of Arizona Press. 400 p. [ Links ]
Burns JHR, Delparte D, Gates RD, Takabayashi M. 2015. Integrating structure-from-motion photogrammetry with geospatial software as a novel technique for quantifying 3D ecological characteristics of coral reefs. PeerJ. 3:e1077. http://dx.doi.org/10.7717/peerj.1077 [ Links ]
Bussing WA. 1990. New species of gobiid fishes of the genera Lythrypnus, Elacatinus and Chriolepis from the eastern tropical Pacific. Rev Biol Trop. 38(1):99-118. https://revistas.ucr.ac.cr/index.php/rbt/article/view/24944 [ Links ]
Coker DJ, Wilson SK, Pratchett MS. 2014. Importance of live coral habitat for reef fishes. Rev Fish Biol Fisher. 24:89-126. https://doi.org/10.1007/s11160-013-9319-5 [ Links ]
Curtis JS, Galvan JW, Primo A, Osenberg CW, Stier AC. 2023. 3D photogrammetry improves measurement of growth and biodiversity patterns in branching corals. Coral Reefs. 42(3):623-627. https://doi.org/10.1007/s00338-023-02367-7 [ Links ]
Depczynski M, Bellwood DR. 2003. The role of cryptobenthic reef fishes in coral reef trophodynamics. Mar Ecol Prog Ser. 256:183-191. http://dx.doi.org/10.3354/meps256183 [ Links ]
Depczynski M, Bellwood DR. 2004. Microhabitat utilisation patterns in cryptobenthic coral reef fish communities. Mar Biol. 145(3):455-463. https://doi.org/10.1007/s00227-004-1342-6 [ Links ]
Dominici-Arosemena A, Wolff M. 2006. Reef fish community structure in the Tropical Eastern Pacific (Panamá): living on a relatively stable rocky reef environment. Helgol Mar Res. 60:287-305. https://doi.org/10.1007/s10152-006-0045-4 [ Links ]
Dubuc A, Quimbayo JP, Alvarado JJ, Araya-Arce T, Arriaga A, Ayala-Bocos A, Casas-Maldonado J, Chasqui L, Cortés J, Cupul-Magaña A, et al. 2023. Patterns of reef fish taxonomic and functional diversity in the Eastern Tropical Pacific. Ecography. 2023:e06536. https://doi.org/10.1111/ecog.06536 [ Links ]
Fricke R, Eschmeyer WN, van der Laan R. 2023. Eschmeyer’s catalog of fishes: genera, species, references; [accessed 2023 Mar 03]. http://researcharchive.calacademy.org/research/ichthyology/catalog/fishcatmain.asp [ Links ]
Fukunaga A, Burns JH, Craig BK, Kosaki RK. 2019. Integrating three-dimensional benthic habitat characterization techniques into ecological monitoring of coral reefs. J Mar Sci Eng. 7(2):27. https://doi.org/10.3390/jmse7020027 [ Links ]
Galland GR. 2013. The conservation and ecology of cryptobenthic fishes on rocky reefs in the Gulf of California, Mexico [dissertation]. San Diego (USA): University of California. 171 p. [ Links ]
Galland GR, Erisman B, Aburto-Oropeza O, Hastings PA. 2017. Contribution of cryptobenthic fishes to estimating community dynamics of sub-tropical reefs. Mar Ecol Prog Ser. 584:175-184. https://doi.org/10.3354/meps12364 [ Links ]
Galván-Villa CM, López-Uriarte E, Arreola-Robles JL. 2011. Diversidad, estructura y variación temporal del ensamble de peces asociados al arrecife coralino de playa Mora, bahía de Tenacatita, México. Hidrobiológica. 21(2):135-146. [ Links ]
Ginsburg I. 1938. Eight new species of gobioid fishes from the American Pacific coast. Allan Hancock Pacific Expedition 1932-40. 2(7):109-121. http://doi.org/10.25549/hancock-c82-14202 [ Links ]
Glynn PW, Alvarado JJ, Banks S, Cortés J, Feingold JS, Jiménez C, Maragos JE, Martínez P, Maté JL, Moanga DA, et al. 2017. Eastern Pacific Coral Reef Provinces, Coral Community Structure and Composition: An Overview. In: Glynn P, Manzello D, Enochs I (eds.), Coral Reefs of the Eastern Tropical Pacific. Coral Reefs of the World, vol 8. Dordrecht (Netherlands): Springer. p. 107-176. https://doi.org/10.1007/978-94-017-7499-4_5 [ Links ]
González‐Cabello A, Bellwood DR. 2009. Local ecological impacts of regional biodiversity on reef fish assemblages. J Biogeogr. 36(6):1129-1137. https://doi.org/10.1111/j.1365-2699.2008.02065.x [ Links ]
González-Murcia S, Alvarado-Larios R, Guerra J, Logan M. 2023. The good and the better, sampling tropical intertidal rock pool fishes: a comparison between visual census vs. rock pool bailing method. Cienc Mar. 49. https://doi.org/10.7773/cm.y2023.3404 [ Links ]
Hastings PA, Galland GR. 2010. Ontogeny of microhabitat use and two-step recruitment in a specialist reef fish, the Browncheek Blenny (Chaenopsidae). Coral Reefs. 29:155-164. https://doi.org/10.1007/s00338-009-0565-x [ Links ]
Holbrook SJ, Brooks AJ, Schmitt RJ, Stewart HL. 2008. Effects of sheltering fish on growth of their host corals. Mar Biol. 155:521-530. https://doi.org/10.1007/s00227-008-1051-7 [ Links ]
Kohler KE, Gill SM. 2006. Coral Point Count with Excel extensions (CPCe): A Visual Basic program for the determination of coral and substrate coverage using random point count methodology. Comput Geosci-UK. 32:1259-1269. https://doi.org/10.1016/j.cageo.2005.11.009 [ Links ]
Komyakova V, Munday PL, Jones GP. 2013. Relative importance of coral cover, habitat complexity, and diversity in determining the structure of reef fish communities. PLOS ONE. 8(12):e83178. https://doi.org/10.1371/journal.pone.0083178 [ Links ]
López-Pérez RA, Calderon-Aguilera LE, Zepeta-Vilchis RC, López-Pérez MI, López-Ortiz AM. 2013. Species composition, habitat configuration and seasonal changes of coral reef fish assemblages in western Mexico. J Appl Ichthyol. 29:437-448. https://doi.org/10.1111/jai.12029 [ Links ]
López-Pérez A, Granja-Fernández R, Ramírez-Chávez E, Valencia-Méndez O, Rodríguez-Zaragoza FA, González-Mendoza T, Martínez-Castro A. 2024. Widespread coral bleaching and mass mortality of reef-building corals in southern Mexican Pacific reefs due to 2023 El Niño warming. Oceans. 5(2):196-209. https://doi.org/10.3390/oceans5020012 [ Links ]
Magurran AE. 2003. Measuring biological diversity. Hoboken, NJ (USA): Wiley-Blackwell. 272 p. [ Links ]
Martínez-Fuentes LM, Norzagaray-López CO, Hernández-Ayón JM, Solana-Arellano ME, Uribe-López AG, Valdivieso-Ojeda JA, Camacho-Ibar V, Mejía-Trejo A, Delgadillo-Hinojosa F, Cabral-Tena RA. 2022. Influence of the advection of water masses in the Ballenas Channel on the CO2 system in Bahía de los Angeles (Mexico). Reg Stud Mar Sci. 55:102505. https://doi.org/10.1016/j.rsma.2022.102505 [ Links ]
Morrison ML, Marcot B, Mannan W. 2012. Wildlife-Habitat Relationships: Concepts and Applications. 3rd ed. Washington DC (USA): Island Press. 494 p. [ Links ]
Moynihan JL, Hall AE, Kingsford MJ. 2022. Interrelationships between soft corals and reef-associated fishes on inshore-reefs of the Great Barrier Reef. Mar Ecol Prog Ser. 698:15-28. https://doi.org/10.3354/meps14160 [ Links ]
Muruga P, Siqueira AC, Bellwood DR. 2024. Meta-analysis reveals weak associations between reef fishes and corals. Nat Ecol Evol. 8:676-685. https://doi.org/10.1038/s41559-024-02334-7 [ Links ]
Nanami A, Nishihira M. 2004. Microhabitat association and temporal stability in reef fish assemblages on massive Porites microatolls. Ichthyol Res. 51:165-171. https://doi.org/10.1007/s10228-004-0213-y [ Links ]
Norzagaray‐López CO, Calderón‐Aguilera LE, Hernández‐Ayón JM, Reyes‐Bonilla H, Carricart‐Ganivet JP, Cabral‐Tena RA, Balart EF. 2015. Low calcification rates and calcium carbonate production in Porites panamensis at its northernmost geographic distribution. Mar Ecol. 36(4):1244-1255. https://doi.org/10.1111/maec.12227 [ Links ]
Oksanen J, Simpson G, Blanchet F, Kindt R, Legendre P, Minchin P, O’Hara R, Solymos P, Stevens M, Szoecs E, et al. 2019. vegan: Community Ecology Package. R package version 2.5-6. https://CRAN.R-project.org/package=vegan [ Links ]
Olán-González M, Reyes-Bonilla H, Álvarez-Filip L, Pérez-España H, Olivier D. 2020. Fish diversity divergence between tropical eastern pacific and tropical western Atlantic coral reefs. Environ Biol Fish. 103:1323-1341. https://doi.org/10.1007/s10641-020-01026-y [ Links ]
Palacios-Salgado DS, Burnes-Romo LA, Tavera JJ, Ramirez-Valdez A. 2012. Endemic fishes of the Cortez biogeographic province (Eastern Pacific Ocean). Acta Ichthyol Piscat. 42(3):153-164. https://doi.org/10.3750/AIP2011.42.3.01 [ Links ]
R Core Team. 2022. R: A language and environment for statistical computing. Vienna (Austria): R Foundation for Statistical Computing; [accessed 2023 Mar 03]. https://www.R-project.org/ [ Links ]
Reyes-Bonilla H, Calderón-Aguilera LE, Cruz-Piñon G, Medina-Rosas P, López-Pérez RA, Herrero-Pérezrul MD, Leyte-Morales GE, Cupul-Magaña AL, Carriquiry-Beltrán JD. 2005. Atlas de corales pétreos (Anthozoa: Scleractinia) del Pacífico mexicano. Guadalajara (Mexico): Universidad de Guadalajara, TRICICLO. 124 p. [ Links ]
Reyes-Bonilla H, López-Pérez RA. 2009. Corals and coral-reef communities in the Gulf of California. In: Johnson ME, Ledesma-Vázquez J (eds.), Atlas of Coastal Ecosystems in the Western Gulf of California: Tracking Limestone Deposits on the Margin of a Young Sea. Tucson (USA): University of Arizona Press . p. 43-55. [ Links ]
Reyes-Bonilla H. 2003. Coral reefs of the Pacific coast of Mexico. In: Cortés, J. (eds.), Latin American Coral Reefs. Amsterdam (Netherlands): Elsevier Science. p. 331-349. https://doi.org/10.1016/B978-044451388-5/50015-1 [ Links ]
Ricart AM, Rodríguez-Zaragoza FA, González-Salas C, Ortiz M, Cupul-Magaña AL, Adjeroud M. 2016. Coral reef fish assemblages at Clipperton Atoll (Eastern Tropical Pacific) and their relationship with coral cover. Sci Mar. 80(4):479-486. https://doi.org/10.3989/scimar.04301.12B [ Links ]
Richardson LE, Graham NA, Pratchett MS, Hoey AS. 2017. Structural complexity mediates functional structure of reef fish assemblages among coral habitats. Environ Biol Fishes. 100:193-207. https://doi.org/10.1007/s10641-016-0571-0 [ Links ]
Robertson DR, Allen GR, Peña EC, Estape A. 2024. Peces Costeros del Pacífico Oriental Tropical: sistema de Información en línea. Balboa (Panamá): Smithsonian Tropical Research Institute; [accessed 2024 Nov 05]. http://biogeodb.stri.si.edu/sftep/es/pages [ Links ]
Rosenblatt RH, Taylor LR. 1971. The Pacific species of the clinid fish tribe Starksiini. Pac Sci. 25:436-463. [ Links ]
Salas-Moya C, Fabregat-Malé S, Vargas-Castillo R, Valverde JM, Vásquez-Fallas F, Sibaja-Cordero J, Alvarado JJ. 2021. Pocillopora cryptofauna and their response to host coral mortality. Symbiosis. 84(1):91-103. https://doi.org/10.1007/s13199-021-00771-7 [ Links ]
Shi H, Wen Z, Paull D, Guo M. 2016. A framework for quantifying the thermal buffering effect of microhabitats. Biol Conserv. 204:175-180. https://doi.org/10.1016/j.biocon.2016.11.006 [ Links ]
Storlazzi CD, Dartnell P, Hatcher GA, Gibbs AE. 2016. End of the chain? Rugosity and fine-scale bathymetry from existing underwater digital imagery using structure-from-motion (SfM) technology. Coral Reefs. 35(3):889-894. http://dx.doi.org/10.1007/s00338-016-1462-8 [ Links ]
Tabugo SRM, Manzanares DL, Malawani AD. 2016. Coral reef assessment and monitoring made easy using Coral Point Count with Excel extensions (CPCe) software in Calangahan, Lugait, Misamis Oriental, Philippines. Comput Ecol Softw. 6(1):21-30. [ Links ]
Troyer EM, Coker DJ, Berumen ML. 2018. Comparison of cryptobenthic reef fish communities among microhabitats in the Red Sea. PeerJ. 6:e5014. https://doi.org/10.7717/peerj.5014 [ Links ]
Urbina-Barreto I, Chiroleu F, Pinel R, Fréchon L, Mahamadaly V, Elise S, Kulbicki M, Quod JP, Dutrieux E, Garnier R, et al. 2021. Quantifying the shelter capacity of coral reefs using photogrammetric 3D modeling: From colonies to reefscapes. Ecol Indic. 121:107151. https://doi.org/10.1016/j.ecolind.2020.107151 [ Links ]
Urbina‐Barreto I, Elise S, Guilhaumon F, Bruggemann JH, Pinel R, Kulbicki M, Vigliola L, Mou-Tham G, Mahamadaly V, Facon M, et al. 2022. Underwater photogrammetry reveals new links between coral reefscape traits and fishes that ensure key functions. Ecosphere. 13(2):e3934. https://doi.org/10.1002/ecs2.3934 [ Links ]
Ventura D, Dubois SF, Bonifazi A, Jona-Lasinio G, Seminara M, Gravina MF, Ardizzone G. 2020. Integration of close‐range underwater photogrammetry with inspection and mesh processing software: a novel approach for quantifying ecological dynamics of temperate biogenic reefs. Remote Sens Ecol Conserv. 7(2):169-186. https://doi.org/10.1002/rse2.178 [ Links ]
Wickham H. 2016. ggplot2: Elegant Graphics for Data Analysis. 2nd ed. New York (USA): Springer-Verlag. 260 p. [ Links ]
DECLARACIONES FINALES
Material suplementario: El material suplementario de este trabajo se puede descargar del siguiente enlace: https://www.cienciasmarinas.com.mx/index.php/cmarinas/article/view/3495/420421146.
11Fondos: Este estudio fue financiado por Centro de Investigación Científica y de Educación Superior de Ensenada (CICESE) a través de los proyectos “Análisis de procesos ecológicos a diferentes escalas espaciales y temporales y la influencia del cambio climático” y “Biodiversidad de peces marinos del Pacífico Mexicano, Golfo de México y Caribe mexicano”. Luis Manuel Jáquez Domínguez (CVU 1125808) recibió una beca de maestría “Becas Nacional (Tradicional) 2021-2” por parte de la Secretaría de Ciencia, Humanidades, Tecnología e Innovación (SECIHTI), así como un apoyo económico por parte del Programa de Posgrado en Ecología Marina del CICESE.
13Contribuciones de autor: Conceptualización: Todos; Curación de datos: LMJD; Análisis formal: LMJD, OMV, LBL; Adquisición de financiamiento: OMV; Investigación: Todos; Metodología: LMJD, RDCO; Administración del proyecto: OMV; Recursos: OMV; Software: LMJD; Supervisión: OMV, LECA, LBL; Validación: OMV, LECA, LBL; Visualización: LMJD; Redacción-borrador original: LMJD, RDCO, LECA, OMV; Redacción-revisión y edición: OMV, LMJD, RDCO, LECA.
14Disponibilidad de datos: Se pueden obtener los datos para este estudio a través del autor de correspondencia bajo petición razonable.
15Aprobaciones y permisos éticos para estudios con animales: Para la realización de este estudio se contó con los permisos correspondientes de Pesca de Fomento PPF/DGOPA-035/21 y PPF/DGOPA-085/22. Asimismo se informó en cada salida de campo al personal de la Comisión Nacional de Áreas Naturales Protegidas (CONANP) de la reserva de la biósfera Bahía de los Ángeles, Canales de Ballenas y de Salsipuedes para obtener la aprobación de este, así como la documentación de no inconveniente.
16Uso de herramientas de IA: Los autores no utilizaron herramientas de inteligencia artificial en este trabajo.
Recibido: 05 de Junio de 2024; Aprobado: 07 de Enero de 2025
 This is an open-access article distributed under the terms of the Creative Commons Attribution License
