


 texto em
 Inglês (pdf)
 Artigo em XML
 Referências do artigo

 Tradução automática
 Enviar este artigo por email
 Citado por SciELO
 Similares em
SciELO

 Permalink

Introducción
La agroindustria de frutillas o berries en México representan un valor comercial de 3789 millones de dólares y generan una tasa de empleo, directo e indirecto, de las más altas del país (DGSIAP, 2025; González et al., 2019). La producción de fresa, primero nacional seguido de la zarzamora, ha mantenido un incremento sostenido con 582992.46 toneladas generadas en 13742.86 has en 2024 (DGSIAP, 2025). El sistema productivo de berries se caracteriza por alto dinamismo con cambio constante de variedades, incorporación de innovaciones tecnológicas con fines de rendimiento y un flujo intensivo de planta para renovación de plantaciones, en particular en fresa. Esto ha contribuido al incremento gradual de diversos problemas fitosanitarios en adición a la endémica ‘secadera’ causada por un complejo fungoso con prevalencia regional de Fusarium spp. y cuyas pérdidas pueden ascender hasta el 50 % (Garay-Serrano et al., 2021; Ceja-Torres et al., 2014; 2001). En 2017, con carácter epidémico de baja intensidad, se observaron en fresa síntomas no reportados previamente en México consistentes en pudrición de raíz-corona y tizón foliar en plantas jóvenes e inicio de fructificación en Albión, Festival y otras variedades de plantaciones comerciales de Jacona y Zamora, Mich. El primer diagnóstico, incluyendo postulados de Koch, lo realizó Raúl Soto demostrando la implicación de Neopestalotiopsis sp., posiblemente N. rosae, debido a reportes de esta especie en cv Festival en Egipto (Essa et al., 2018) (R. Soto. 2018. Comunicación Personal, Agroquímica Jacona). Con esta base, varios grupos de investigación iniciaron estudios confirmatorios con énfasis en fresa. Así, Rebollar-Alviter y colaboradores confirmó a Neopestalotiopsis rosae (Rebollar-Alviter et al., 2020). Sin embargo, en 2019 ya se había reportado Pestalotiopsis sp en cultivo de fresa en Puebla, México (Morales-Mora et al., 2019 y 2020), y previamente en 2005 en Rosa sp., otra especie rosácea (https://www.ncbi.nlm.nih.gov/nuccore/AY904051.1/). En uno de los primeros reportes en berries, este género se reportó en arándano en China asociado a tizón foliar (Luan et al., 2008).
En la más reciente revisión taxonómica de Pestalotiopsis (Maharachchikumbura et al., 2014), Neopestalotiopsis, junto con Pseudopestalotiopsis, emerge como un nuevo género con base en caracteristicas morfológicas y análisis genómico con LSU (Subunidad Grande del ADN Ribosomal) y multilocus con Internal transcribed spacer (ITS), β-tubulin (TUB) y traslation elongation factor 1-α (TEF). Debido a que estos tres géneros comparten conidios de cuatro septas, alargados, rectos o ligeramente curvos con 3-5 apéndices a partir de la célula aplicar hialina, la diferenciación morfológica es con base en la célula conidiógena y en la coloración de las tres células centrales combinado con las regiones génicas ITS, TUB y/o TEF dependiendo del nivel del estudio taxonómico requerido (Maharachchikumbura et al., 2014; 2012), es posible que Neopestaliotiopsis haya estado presente previo a los primeros reportes epidémicos en fresa en la región de Zamora, México. A partir de la propuesta de Maharachchikumbura y colaboradores et al., 2014),
En 2018 CP-LANREF, a partir de los trabajos de R. Soto, integró a su investigación etiológica-epidemiológica, con énfasis en Fusarium y Trichoderma, el estatus de N. rosae para lo cual realizó un muestreo regional en cultivos de fresa y zarzamora bajo la premisa que Neopestalotiopsis no podría estar restringido a fresa, debido a la predominancia de estos cultivos en la vertiente de berries de Michoacán y que posiblemente podría estar asociado con Fusarium debido al colapso eventual de la planta similar a ‘secadera’. Esta presunción etiológica tiene como fundamento que Pestalotia, el género (conidium 5-septas) a partir del cual se derivaron Pestalotiopsis, Neopestalotiopsis, y Pseudopestalotiopsis (Maharachchikumbura et al., 2014) incluyen hongos saprofitos, endófitos y parásitos generalmente considerados secundarios asociados a manchas foliares o de frutos de plantas perennes tropicales y subtropicales (Maharachchikumbura et al., 2014 y 2012), sin antecedentes a nivel vascular. Fue hasta recientemente, principalmente en fresa, que se han registrado síntomas a nivel vascular, inducidos pudrición de raíz y corona con eventual tizon foliar y marchitez causados por N. rosae (Olivares-Rodríguez et al., 2024; Lawrence et al., 2023; Sun et al., 2021; Wu et al., 2020; Rebollar-Alviter et al., 2020; Essa et al., 2018).
En 2019 se confirmó la presencia de N. rosae en fresa y zarzamora con base en estudios morfológicos e ITS (G. Mora. CP LANREF, No Publicado; Montes-Hernández et al., 2021). En este trabajo, el objetivo fue analizar con un enfoque etiológico-epidemiológico, la implicación de dos haplotipos-ITS de Neopestalotiopsis rosae, asociados a cinco aislados de fresa (Fragaria x ananasa) y zarzamora (Rubus sp) seleccionados por prevalencia en la prospección regional de CP-LANREF, en el proceso de patogénesis, agresividad y carga de inóculo en fresa cv. San Andreas. Reportes preliminares de este trabajo se publicaron en Suplemento SMF/RMF (Montes-Hernández et al., 2024a y 2024b).
Materiales y Métodos
Origen de aislados e identificación de Neopestalotiopsis rosae. En 2018, cinco aislamientos representativos se obtuvieron a partir de un diagnóstico epidemiológico extensivo en la región de Los Reyes - Zamora, Michoacán con 44 muestras de tejido y rizosfera. Las muestras se obtuvieron de 18 plantaciones de fresa (Fragaria x ananassa) y zarzamora (Rubus sp.) y fueron seleccionadas con manejo agrícola contrastante y diferentes variedades cultivadas (CP-LANREF, 2019. No publicado). Los aislados se identificaron morfológica y genómicamente con el gen ITS mediante los procesos moleculares y secuenciación descritos en secciones siguientes (Montes-Hernández et al., 2021). El experimento se realizó en invernadero en condiciones controladas ubicado en Tequila, Jalisco km 15 carr. Guadalajara - Tepic.
Preparación de inóculo. Para inducir el crecimiento de los cinco aislados (H1: F142P40S, F6P35R y F17P34R, H2: F142D93R y Z13P27R) se preparó medio V8 a partir de 150 g de jugo V8 Campbell, 40 g de agar y 1 000 mL de agua desmineralizada + 0.25 g de cloranfenicol después de esterilizar. Por cada aislado se sembraron cinco repeticiones y se incubaron a 25 °C durante 14 días para obtener conidiomas. Se rasparon colonias con agua estéril para remover los conidios. Se tomó 1 mL de la solución, se vertió en un tubo Falcon con 15 mL de agua estéril, se homogenizó y tomó una muestra de 100 µL para contabilizar los conidios hasta obtener la concentración de 1x10⁶ conidios por mL. Se obtuvo un total de 16 mL por aislado. Para el inóculo sólido, se emplearon cuadros de micelio de 5 x 5
mm. Los cinco aislados se sembraron en medio PDA (40 g de Potato Dextrosa Agar, 20 g de agar, 1 000 mL agua desmineralizada + cloranfenicol después de esterilizar) con tres repeticiones.
Ensayo de patogenicidad in vivo en hojas y corona. La prueba de patogenicidad se realizó en 48 plantas de fresa cv. San Andreas de tres meses de edad trasplantadas en macetas de 1 L con Peatmoss estéril y húmedo. Sobre la corona expuesta se colocó una placa acetato circular con la finalidad de evitar contaminación de micelio y esporas hacia tejido superior de la planta. Se utilizaron ocho plantas de fresa por aislado (40 plantas); cuatro destinadas a inoculación por aspersión en tejido foliar y cuatro para inoculación por herida en corona. En inoculación por aspersión foliar, se seleccionaron dos hojas trifoliadas por planta. La suspensión de conidios se asperjó sobre los foliolos seleccionados cubriendo totalmente el haz y envés. Por planta se aplicaron 4 mL de suspensión, inmediatamente después se colocó una bolsa de polipapel de 1 kg cubriendo la planta durante tres días, creando un microclima óptimo para garantizar el proceso de infección. Se evaluaron los síntomas visuales sobre el haz y envés, número de lesiones y lesiones esporulantes en cada uno de los foliolos. Se evaluaron en total 144 foliolos.
Para inoculación por herida en corona, se realizó una herida con bisturí estéril, posteriormente se colocó un cuadro de medio con la colonia incrustado con un palillo de madera estéril. En cada planta se evaluó la internalización del hongo observado al realizar el corte longitudinal de la corona. Se emplearon ocho plantas como testigo. La evaluación de experimento inició 72 horas después de la inoculación (hdi) y cada tres días se evaluaron seis variables: Unidades clorofila con SPAD 502 plus (KONICA MINOLTA), altura de planta, diámetro de corona con vernier digital marca (Truper), diámetro de lesión (mm), número de lesiones y número de lesiones esporulantes. Se estimó el Periodo de Incubación (Pi), Periodo de Latencia (Pl) y Periodo de Generación (Pg) sensu Vanderplank. Además, se registró temperatura (°C) y humedad relativa (HR) con datalogger HOBO U23 Pro V2 configurado para lecturas cada 30 min.
Reaislamiento de Neopestalotiopsis rosae y cultivo monospórico. Para finalizar los postulados de Koch, por planta inoculada se seleccionó un foliolo, tallo, corona y raíces con síntomas putativos para realizar cortes de 5 x 5 mm. Cada corte se desinfestó con alcohol 70 % e hipoclorito de sodio al 2 % durante 2 min por cada sustancia, y tres enjuagues con agua desmineralizada estéril. El tejido completamente seco se sembró en cajas de PDA (90 x 15 mm) colocando cinco fragmentos de tejido por caja. Se incubó en cámara bioclimática durante 5 días. Al observar crecimiento de micelio, se transfirió a nuevas cajas (90 x 15 mm) con medio PDA usando agujas de disección y se incubaron hasta la aparición de conidiomas. Para realizar el cultivo monospórico, se tomó parte del conidioma con un asa y se sembró en estría simple en medio Agar-Agua (20 g Agar, 20 mL ácido láctico, 1 L de agua, 0.250 g Cloranfenicol). La purificación de aislados se realizó mediante el método de punta de hifa, transferida a medio PDA y V8 para caracterización cultural. Las siembras se incubaron a 25 °C durante 16 días para favorecer el crecimiento micelial y desarrollo de conidiomas. Los resultados se compararon con estudios preliminares de caracterización de N. rosae en cinco medios de cultivo (Montes-Hernández et al., 2021). Se generó un acervo fotográfico de 96 colonias de 16 dds usando cámara Canon EOS Rebel T6. Finalmente, los aislados monospóricos se conservaron en tres métodos: tubos inclinados de PDA en refrigeración a 4 °C, sílica gel y glicerol 10 % en congelador a -20 °C (Mendoza-Ramos et al., 2021).
Extracción de ADN, PCR y secuenciación. Un total de 33 aislados monospóricos de Neopestalotiopsis rosae, a partir de los reaislamientos, fueron seleccionados por morfología colonial, fuente de aislamiento y prevalencia de colonia, nueve aislados de raíz, 10 de cuello, ocho de tallo y seis de foliolo. Se realizó la extracción de ADN usando el protocolo CTAB 2 % (Maharachchikumbura et al., 2011) con ligeras modificaciones. Los fragmentos de ADN fueron amplificados usando los iniciadores ITS1 (TCCGTAGGTGAACCTGCGG) / ITS4 (TCCTCCGCTTATTGATATGC) (White et al., 1990) utilizados en análisis multigénicos de este género (Maharachchikumbura et al., 2011). Para PCR punto final, el volumen final del mix de reacción fue 25 µL [1X de buffer de PCR (10X) INVITROGEN, 1 mM de MgCl2 (INVITROGEN 25mM), 0.50 mM de desoxinucleótidos trifosfato (dNTP’s) PROMEGA, 200 nM de cada iniciador, 0.2 unidades de Platinum® Taq DNA polimerasa (Invitrogen) y 2 µL de ADN (40 ng µL-1)]. Las condiciones de PCR en termociclador T-100 de BioRad consistieron en un ciclo inicial de desnaturalización a 95 °C por 5 min, seguido de 31 ciclos de amplificación a 94 °C por 1 min, 55 °C/1 min y 72 °C/1 min 30 s, y una extensión final a 72 °C/5 min. Los fragmentos amplificados se analizaron por electroforesis en gel de agarosa al 1.5 % y TBE 1X. Una vez confirmada la amplificación del fragmento de interés a 550 pb, los productos de PCR respectivo se secuenciaron con el servicio comercial de Macrogen Inc., Korea (http://www.magrogen.com).
Análisis estadístico. En MS Excel 2020, se integró una matriz con 12 variables totales. Se realizaron análisis temporales por variable clasificados por método de inoculación, haplotipo y aislado. En RStudio, se realizó un análisis de varianza en un diseño de parcelas divididas y comparación de medias con Tukey (p ≤ 0.05), para determinar los efectos del método de inoculación y aislado en el número de lesiones y lesiones esporulantes de Neopestalotiopsis rosae sobre Fragaria x ananassa.
Resultados y Discusión
La identificación morfológica y genómica de cinco aislados de N. rosae, cuatro de fresa y uno de zarzamora con 100 % de homología se asociaron a N. rosae en plantas de Fragaria x ananassa cv. San Andreas. Los aislados conformaron dos haplotipos (H), siendo F142P40S, F6P35R y F17P34R pertenecientes al H1; y Z13P27R (aislado de zarzamora) y F142D93R a H2. Los cinco aislados fueron diferencialmente patogénicos a Neopestalotiopsis rosae en plantas de Fragaria x ananassa cv. San Andreas (Figura 1).
Patogenicidad in vivo en hojas y corona. El experimento de patogenicidad en 40 plantas inoculadas y 33 aislados, obtenidos a partir de la prueba de patogenicidad, confirmaron con 100 % de homología a Neopestalotiopsis rosae. Por método de inoculación, la aspersión de 1x10⁶ conidios mL-1 de N. rosae en foliolos de plantas de fresa, exhibió síntomas asociados a lesiones circulares de color café claro con bordes oscuros y un halo rojizo en haz y envés del foliolo (Figura 1A y 1D). Estos síntomas concuerdan con Olivares-Rodríguez et al. (2024) en la misma variedad de fresa. En lesiones maduras se observó presencia de acérvulos con esporulaciones densas de conidios (Figura 1B, 1D y 1F). Los testigos absolutos no mostraron signos o síntomas (Figura 1E).
La inoculación por herida con cuadros de micelio colocados a nivel de corona, no mostraron síntomas de necrosis exterior. No obstante, los cortes longitudinales permitieron observar lesiones internas con coloración rojiza y direccionalidad descendente hacia el sistema radicular de la planta (Figura 2). La mayor patogenicidad para ambos métodos de inoculación se mostró con el aislado F142P40S de H1, mientras que F142D93R de H2 indujo mayor daño mediante la inoculación por aspersión. En raíz, se observó cambio de coloración a tono oscuro y clara reducción en la densidad de raíces (Figura 2). En general, no se evidenciaron diferencias cualitativas (características de síntomas) entre aislados; no obstante, la intensidad daño (desarrollo de lesiones y lesiones esporulantes, pérdida de tejido en menor tiempo) si mostró diferencias entre método de inoculación y aislado.
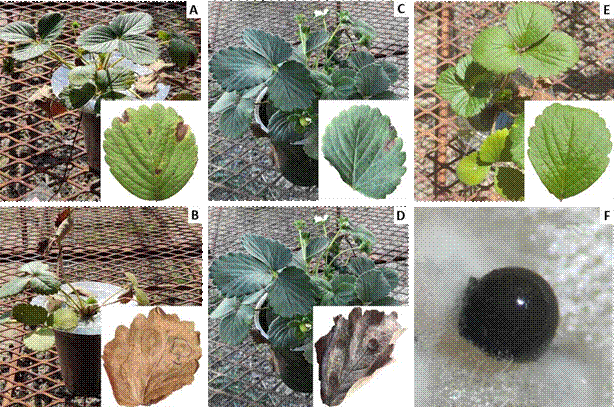
Figura 1 Expresión de lesiones y lesiones esporulantes en hoja de fresa cv. San Andreas inoculadas por aspersión con aislados de N. rosae. A y B. NL y LE a 21 días después de la inoculación (ddi) con F142P40S. C y D. Número de lesiones (NL) y Lesiones esporulantes (LE) a 77 ddi con el aislado Z13P27R E. Testigo absoluto, F. Conidioma de N. rosae en PDA.
Patogénesis de los aislados. El progreso patogénico de aislados de N. rosae obtenidos de fresa, en ambos haplotipos, mostraron mayor patogenicidad y daño sobre plantas de Fragaria x ananassa cv. San Andreas, incluso en el haplotipo 2 pero con agresividad atenuada (Figura 3). Con respecto al testigo, el H1 representado por el aislado F6P35R fue el más patogénico y severo, con daño máximo y pérdida de foliolos posterior a los 19 ddi, seguido de F142P40S a 40 ddi; y F17P34R un aislado de agresividad moderada-alta con daño foliar máximo después de los 63 ddi (Figura 3). Para el caso de los aislados del haplotipo 2, ambos mostraron patogenicidad con agresividad baja. El aislado de fresa F142D93R fue moderado, alcanzando daño máximo a los 63 ddi. El aislado de zarzamora Z13P27R mostró menor agresividad, posiblemente porque es una cepa aislada de Rubus sp., sugiriendo incompatibilidad en el proceso de patogénesis en un hospedero diferente como Fragaria x ananassa cv. San Andreas (Figura 3).
La comparación estadística de la agresividad de los aislados mediante número de lesiones (NL) y lesiones esporulantes (LE), mostró efectos de método de inoculación (p < 0.0001), aislado (p < 0.0001) y su interacción (p < 0.0001). La inoculación por aspersión indujo significativamente mayor cantidad de lesiones en los aislados del H1 con respecto al resto. Los aislados H2 en ambos métodos de inoculación y todos los aislados inoculados por herida no mostraron diferencias significativas con respecto al testigo (Figura 4A). Interesantemente, a nivel de esporulación el aislado F142P40S fue estadísticamente más patogénico y agresivo con respecto al resto de aislados para H1 y H2. El aislado F142D93R fue el menos agresivo sin diferencias significativas con respecto a los aislados inoculados por herida (Figura 4B).
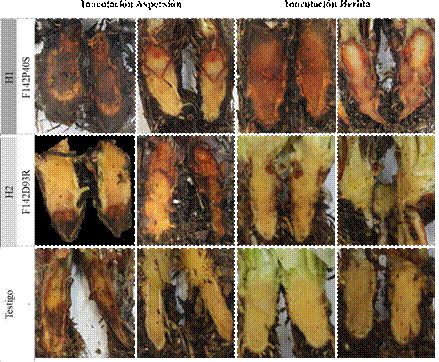
Figura 2 Corte longitudinal de corona de plantas de fresa cv. San Andreas a los 115 ddi inoculadas con N. rosae, F142P40S (H1) y F142D93R (H2). En inoculación por herida (B), H1 causó necrosis total. La corona muestra predominantemente cambios en la coloración de café claro a café oscuro-rojizo. En plantas testigo no se detectó cambio de coloración.
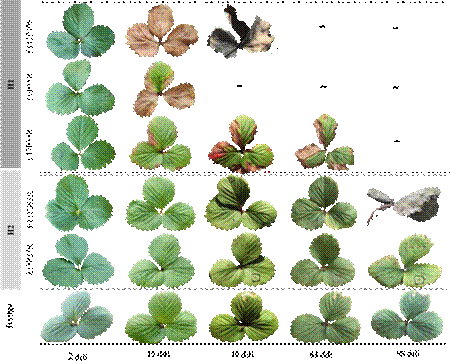
Figura 3 Progreso de lesión en lámina foliar de plantas de fresa cv. San Andreas inoculadas por aspersión con cinco aislados de N. rosae correspondientes del haplotipo H1 y H2 a los 2, 19, 40, 63 y 95 ddi. Los guiones representan pérdida de las hojas por deterioro total del tejido causado por la agresividad asociada a cada aislado. Por ejemplo, en F6P35R la perdida de hojas se alcanza en 40 ddi.
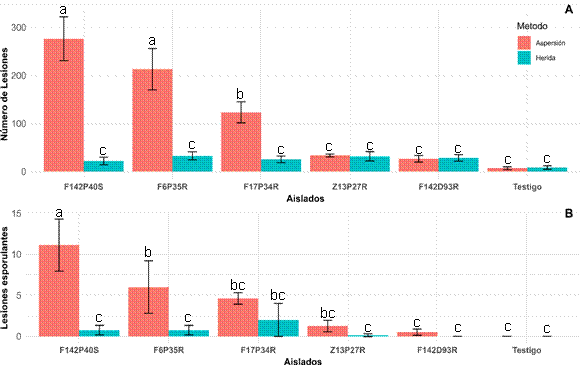
Figura 4 Análisis de varianza (Tukey, p < 0.05) en parcelas divididas, donde parcela grande es el método de inoculación y la parcela chica el aislado para las variables número de lesiones (A) y lesiones esporulantes (B). Letras diferentes muestran diferencias significativas con α = 0.05.
Dinámica temporal de Neopestalotiopsis rosae. La dinámica temporal promedio de cinco aislados asociados a dos haplotipos (H1 y H2) de N. rosae fue variable y contrastante en lesiones y esporulación. Las lesiones inducidas por aislados del H1 iniciaron a los 2 ddi con un rango de 50-196 lesiones/planta. Los aislados F17P34R y F6P35R tuvieron incrementos máximos hasta los 7 ddi, posteriormente mostraron una tendencia decreciente hasta 23-75 ddi. Se registró un promedio de 3 504 lesiones/planta para H1 (Figura 5A y 6A). Comparativamente en los aislados de H2, la cantidad de lesiones fueron altamente variables expresándose entre los 2 - 33 ddi con un promedio significativamente menor de 270 lesiones/planta (Figura 5B y 6B).
Los aislados del H1 esporularon con mayor rapidez entre 14 y 16 ddi. Sin embargo, la duración en la producción de esporas fue diferente, p.e., el aislado F17P34R esporuló al menos 30 días más hasta los 75 ddi (Figura 5A y 6A). Los aislados del H2 mostraron mayor tiempo de producción de esporas entre 33 y 47 ddi, y específicamente el aislado Z13P27R tuvo lesiones esporulantes hasta el fin del experimento (Figura 5B y 6B). Las plantas testigo no mostraron síntomas. Integralmente, la dinámica temporal permitió corroborar la patogenicidad-agresividad del H1 asociada a la especialización al tejido de fresa, y la patogenicidad-agresividad moderada-baja del H2 particularmente del aislado obtenido de zarzamora (Z13P27R).
Periodos asociados a la patogénesis de N. rosae. La evaluación de número de lesiones (NL) y lesiones esporulantes (LE) permitió determinar el proceso de patogénesis de haplotipos de N. rosae a través de la cuantificación de los periodos de incubación (Pi) desde la deposición del inóculo inicial hasta la expresión sintomática; latencia (Pl) desde la deposición del inóculo hasta el inicio de la esporulación; y generación (Pg) desde la expresión del primer signo hasta el final de esporulación, fueron dependientes de °C y HR (Figura 5 y 6). En la inoculación por aspersión, NL y LE mostraron variabilidad entre aislados. El haplotipo 1 (H1) fue más patogénico y agresivo en ambas variables con niveles máximos en el aislado F142P40S con NL = 187.5 a los 2 ddi y LE = 8.45 a los 26 ddi (Figura 5A). Comparativamente, el H2 mostró niveles máximos NL = 20 a los 87 ddi con el aislado F142D93R, y LE = 0.37 a los 89 ddi en el aislado Z13P27R (Figura 5B).
Notoriamente, umbrales de °C = 21.8 - 26.1 y HR = 65.2 - 92.01 fueron condiciones más inductivas para H1 en el periodo de 2 hasta 58 ddi; mientras que °C = 18.2 - 21.9 y HR < 64.9 fueron condiciones óptimas para H2 desde 61 hasta 100 ddi (Figura 5C). La asociación de periodos del proceso de patogénesis fue Pi = 2 ddi, Pl = 14 - 16 ddi, y Pg = 12 - 59 ddi en H1, notablemente más agresivo comparado con Pi = 4 ddi, Pl = 37 - 47 ddi, y Pg = 44 - 46 ddi en H2 (Figura 5D).
En la inoculación por herida en corona, NL y LE mostraron baja variabilidad entre aislados. La aparición de síntomas se retrasó respecto a la inoculación por aspersión. El aislado F142P40S (H1) fue el más patogénico y agresivo con el nivel más alto NL = 15.66 a los 87 ddi y LE = 0.33 a los 68 ddi (Figura 6A). Relativamente, el aislado de zarzamora Z13P27R (H2) mostró los niveles máximos NL= 24.22 a los 79 ddi y LE = 0.046 a los 68 ddi (Figura 6B). Los umbrales de °C = 18.4 - 24.8 y HR = 52.8 - 82.7 fueron condiciones más inductivas para H1 en el periodo de 26 hasta 93 ddi; condiciones de temperatura similares fueron inductivas para la expresión de lesiones de aislados H2. Sin embargo, no favorables para el desarrollo de lesiones esporulantes (Figura 6C).
La asociación de periodos del proceso de patogénesis fue Pi = 28 ddi, Pl = 30 - 42 ddi, y Pg = 40 - 69 ddi en H1, notablemente más agresivo y estable comparado con Pi = 28 ddi, Pl = 68 ddi, y Pg = 11 en H2; presenta el periodo de latencia más amplio (Figura 6D). Estudios de N. rosae sugieren que en condiciones de laboratorio 25 °C son favorables para crecimiento de micelio y expresión de conidiomas como se observó en el caso de los aislados del haplotipo 1 (Maharachchikumbura et al., 2014). En campo la expresión de síntomas en plantas de fresa cv Albión se reportó entre 23-27 °C con alta humedad relativa (> 80 %) en condiciones de macro túneles (Rebollar-Alviter et al., 2020).
Mundialmente, no se reportan estudios que determinen integralmente el ciclo de patogénesis de N. rosae. Algunos estudios se infieren resultados de Pi, por ejemplo, Rotondo y colaboradores (2023) en fresa cv. Cabrillo de cuatro semanas de edad e inóculo a concentración de 1x10⁴ conidios mL-1, registraron lesiones a 5 ddi; mientras que Wu y colaboradores (2020), en la variedad de fresa Xiang-shui en la etapa de tres a cuatro hojas y concentración de 1x10⁶ conidios mL-1 reportaron aparición del primer síntoma visual a los 10-14 ddi. Lo anterior sugiere que tanto patogenicidad y agresividad son atributos dependientes del cultivar, carga de inóculo (concentración conidios mL-1) e inductividad climática. Este es el primer trabajo donde se estiman los tres periodos de patogenicidad asociados Neopestalotiopsis rosae en fresa cv. San Andreas, variedad de amplia cultivación en México por atributos como fruto de calidad, sabor y tolerancia a enfermedades (Eurosemillas, 2022).
Efecto de inoculación de N. rosae en características fisiológicas. Las variables fisiológicas evaluadas no mostraron cambios significativos durante el proceso de infección de N. rosae desde el periodo de incubación y latencia (2 - 14 ddi). La altura redujo entre 0 - 2.1 cm atribuible a la pérdida de hoja evaluable, incluso en el testigo. El diámetro de la corona mostró incrementos constantes de 0 - 0.2 cm sin diferencia significativa por método de inoculación o aislado (Cuadro 1).
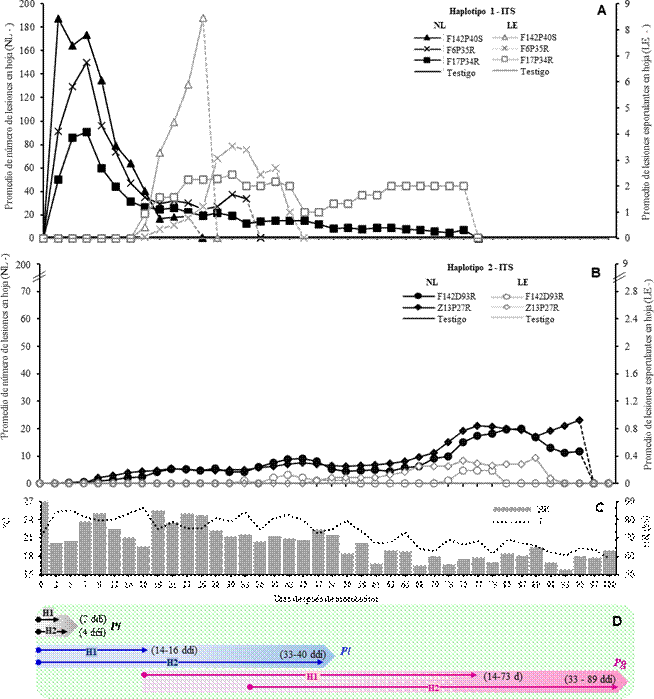
Figura 5 Dinámica de número de lesiones (NL) y lesiones esporulantes (LE) en hojas de fresa cv. San Andreas hasta 95 días por aspersión con cinco aislados de N. rosae obtenidos de fresa (F) y zarzamora (Z), A. Promedio absoluto de NL y LE de tres aislados del Haplotipo 1 (H1). B. Promedio absoluto de NL y LE en dos aislados del Haplotipo 2 (H2), C. Asociación de HR y T °C con el comportamiento del hongo sobre tejido hasta 100 días D. Estimación de periodo de incubación (Pi), periodo de latencia (Pl) y periodo de generación (Pg) por haplotipo de N. rosae.
Las unidades clorofila (UC) como atributo importante de seguimiento para determinar el estrés por factores bióticos o abióticos durante las tres etapas fenológicas; vegetativa, reproductiva y maduración debido a la perdida de nitrógeno, clorosis asociada a deficiencias nutrimentales o presencia de patógenos (Vishwakarma, et al., 2023). En el experimento, la mayor pérdida de UC ocurrió en aislados más patogénicos y agresivos. Los cuales causaron reducción de 2. 1 a 14.5 UC, en comparación con aislados de agresividad moderada o atenuada que mostraron UC < 2.1.
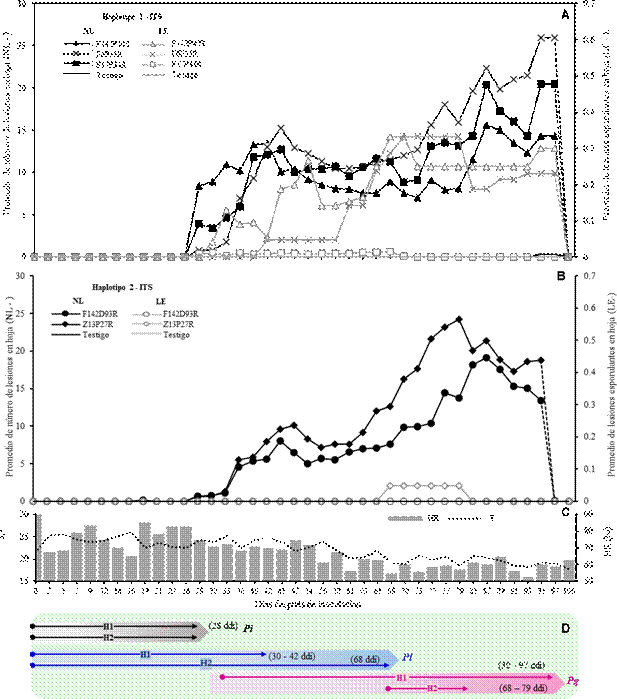
Figura 6 Dinámica de lesiones (NL) y lesiones esporulantes (LE) en hoja hasta 95 ddi por herida en corona con cinco aislados de N. rosae obtenidos de fresa (F) y zarzamora (Z), A. Promedio absoluto de NL y LE de tres aislados del H1, B. Promedio absoluto de NL y LE de dos aislados del H2, C. Asociación de HR y T °C con el comportamiento del hongo sobre tejido hasta 100 días, D. Estimación de periodo de incubación (Pi), periodo de latencia (Pl) y periodo de generación (Pg) por haplotipo de N. rosae.
Estos resultados sugieren efecto patogénico de aislados N. rosae en concentración de clorofila evidenciado por el amarillamiento, clorosis e incremento de lesiones necrosadas a nivel de tejido foliar (Cuadro 1). El proceso patogénico de N. rosae promueve alteraciones fisiológicas causando pérdidas en la productividad. La disminución UC puede ser variable segun tipo de inoculación empleada sobre tejido (de Souza Marques et al., 2024).
Cuadro 1 Promedio de Unidades clorofila (UC), altura de planta y diámetro de corona en plantas de fresa cv. San Andreas inoculadas por aspersión y herida con cinco aislados de N. rosae.
| Inoculación | Haplotipo | ID | Periodo de incubación 2 ddi | Periodo de latencia 14 ddi | ||||
|---|---|---|---|---|---|---|---|---|
| U.C | Altura (cm) | Diámetro de corona (cm) | U.C | Altura (cm) | Diámetro de corona (cm) | |||
| Aspersión | H1 | F142P40S | 43.8 | 16.5 | 0.9 | 29.3 | 14.4 | 1.1 |
| F6P35R | 41.5 | 15.8 | 0.7 | 34.0 | 15.6 | 1.0 | ||
| H2 | F17P34R | 40.5 | 13.5 | 0.6 | 37.0 | 13.1 | 0.9 | |
| F142D93R | 41.1 | 15.8 | 0.8 | 40.2 | 16.2 | 1.0 | ||
| Testigo | Z13P27R | 40.0 | 15.3 | 0.8 | 38.0 | 15.3 | 1.0 | |
| . | 40.8 | 13.7 | 0.9 | 40.0 | 15.3 | 1.1 | ||
| Herida | H1 | F142P40S | 41.3 | 17.2 | 0.9 | 40.8 | 17.4 | 1.1 |
| F6P35R | 49.6 | 16.8 | 0.9 | 43.6 | 16.8 | 1.1 | ||
| H2 | F17P34R | 41.3 | 15.8 | 0.8 | 39.2 | 15.3 | 1.1 | |
| F142D93R | 42.4 | 16.0 | 1.1 | 40.3 | 16.6 | 1.1 | ||
| Testigo | Z13P27R | 37.8 | 17.4 | 0.8 | 36.1 | 17.7 | 0.9 | |
| . | 39.0 | 15.1 | 0.8 | 36.7 | 14.0 | 0.9 | ||
Reaislamiento y caracterización cultural de N. rosae. Se realizaron un total de 374 reaislamientos derivado de las pruebas de patogenicidad. Las siembras en medio PDA de tejidos hoja (100), tallo (86), corona (96) y raíz (92), mostraron en promedio crecimiento micelial después de la siembra (5-7 días). Las colonias mostraron micelio aéreo amarillento y otros blanquecinos, crecimiento rosetado, incluso bordes ondulados. Todas los aislados produjeron acérvulos de color negro sobre la colonia e inmersos en el medio de cultivo.
En general, el mayor porcentaje de UFC Neopestalotiopsis rosae fue contabilizado en corona con 34 %, seguido de raíz con 31 % y en menor proporción en hoja y tallo con 21 y 14 %, respectivamente. En el testigo no se contabilizaron UFC del hongo. Interesantemente, en el método por aspersión donde el inóculo fue depositado sobre el tejido aéreo, la mayor concentración de inóculo se contabilizó en corona (UFC = 44) y raíz (UFC = 38). Comparativamente, en la inoculación por herida, también se contabilizó la mayor carga de inóculo en corona (UFC = 83) y raíz (UFC = 88), y notablemente menor en hojas (UFC = 20) y tallos (UFC = 29). Lo anterior sugiere especialización parasítica del organismo principalmente en tejido de raíz, corona y tallo, como se ha documentado para los géneros Pestalotiopsis, Pseudopestalotiopsis y Neopestalotiopsis (Maharachchikumbura et al., 2011).
De un total de 92 reaislamientos preliminares, se seleccionaron 33 (17 del haplotipo 1 y 16 del haplotipo 2) para caracterización cultural y molecular, mediante criterios de representatividad del aislado, método de inoculación y tipo de tejido. Además, aspectos morfológicos de la colonia; color, tipo de micelio, forma de crecimiento y producción de conidiomas. La caracterización cultural tuvo una duración total 16 ddi, de los cuales 12 días fueron para garantizar crecimiento homogéneo y 4 días para desarrollo de conidiomas en medio. El crecimiento en medio de PDA, según lo descrito por Maharachchikumbura et al. (2014), confirmó la variabilidad fenotípica y genómica (Rodríguez-Gálvez et al., 2020). Los cambios fueron notables en la morfología colonial; micelio aéreo con crecimiento plano y radial, mayor producción de conidiomas y pigmentación del medio de cultivo a una coloración naranja. Algunas especies de Neopestalotiopsis pueden producir metabolitos que inducen cambio de coloración del medio de cultivo (Jeewon et al., 2002). Esto pudo estar implicado en este trabajo.
La caracterización molecular se corroboró por la amplificación de banda a 550 pb. Los resultados de secuenciación se compararon con las secuencias reportadas en el banco de genes (NCBI). Se consideró el porcentaje de identidad y cobertura >95 %. El gen ITS permitió identificar a los aislados a nivel especie. Sin embargo, al ser un gen universal y conservado, es menos informativo, representa baja diversidad de haplotipos y restringe la distribución. Además, dan lugar a una resolución y una ubicación de taxones deficientes en el árbol de máxima verosimilitud consensuado (Ramdial et al., 2016). De esta manera, este gen no está asociado a la patogenicidad y agresividad. Se sugiere realizar un estudio con otros genes que permitan obtener información genética robusta.
Conclusiones
A través de NL, LE, UC, Pi , Pl , y Pg , significativamente contratantes, se demostró la variabilidad patogénica de dos haplotipos-ITS de N. rosae prevalentes en Michoacán obtenidos de fresa y zarzamora. Se aborda una novel comprensión mecanística de la patogénesis, y se reporta por primera vez a N. rosae asociado a zarzamora con capacidad patogénica en fresa, pero con menor agresividad. Un manejo regional sostenible debe considerar la capacidad variable del hongo y la interacción con otros patógenos con capacidad vascular.

