


 nueva página del texto (beta)
 Español (pdf)
 Artículo en XML
 Referencias del artículo

 Traducción automática
 Enviar artículo por email
 Citado por SciELO
 Similares en
SciELO

 Permalink


Introducción
La citricultura es una de las actividades agrícolas más importantes en México, posicionando al país como el cuarto lugar en producción de cítricos a nivel mundial (Carreño-López et al., 2024, Villar-Luna et al., 2024). Sin embargo, esta industria enfrenta serias amenazas fitosanitarias, destacando la presencia de Diaphorina citri Kuwayama, 1908 (Hemiptera: Liviidae), vector del Candidatus Liberibacter asiaticus, agente causal del Huanglongbing (HLB), considerada la enfermedad más devastadora de los cítricos a nivel global (Garza-Saldaña et al., 2017; García-Ávila et al., 2021). En ese sentido el estado de Querétaro ocupa los últimos lugares en producción de cítricos, aportando apenas el 0.03% de la producción nacional, a pesar de esto las huertas comerciales están en riesgo por los problemas fitosanitarios, por lo que 213 hectáreas distribuidas en los municipios de la Sierra Gorda Queretana están afectadas por el HLB y su vector D. citri (Gobierno de México, 2019).
Diaphorina citri afecta principalmente a plantas de la familia Rutaceae, alimentándose de los brotes tiernos y hojas jóvenes, lo cual puede provocar enanismo, deformación de tejidos vegetativos y, en casos graves, la muerte del árbol (Yzquierdo-Álvarez et al., 2021; Qiu et al., 2022). En regiones productoras como Veracruz, se han registrado afectaciones en más de 549,000 hectáreas, lo que motivó la implementación de campañas fitosanitarias para reducir las poblaciones del insecto vector (Díaz-Padilla et al., 2014).
Estudios previos han demostrado que la abundancia de D. citri varía a lo largo del año, influenciada por factores bióticos como la edad del árbol y la disponibilidad de brotes, así como por condiciones climáticas como la temperatura y la precipitación (Aidoo et al., 2022). En general, se reportan picos poblacionales durante la primavera y verano, cuando las temperaturas oscilan entre 25°C y 29°C, favoreciendo su desarrollo (Liria et al., 2016; Zorzenon et al., 2020). Aunado a que el cambio climático afecta significativamente la distribución geográfica de las plagas y enfermedades de las plantas a nivel mundial (Wang et al., 2020; Endarto et al., 2024). No obstante, también se han observado variaciones regionales con picos en otras estaciones del año, lo que refleja una dinámica poblacional heterogénea y dependiente del contexto local (Luna-Cruz et al., 2018; Hernández-Landa et al., 2018; Ninsin et al., 2024). Ante esta variabilidad, es fundamental realizar estudios a escala local que permitan comprender la relación entre las condiciones climáticas y la dinámica de D. citri, especialmente en cultivos comerciales. En la presente investigación se determinó y correlacionó la abundancia temporal de D. citri con variables climáticas en huertas comerciales de naranja Valencia, ubicadas en el valle de Concá, municipio de Arroyo Seco, Querétaro, México.
Materiales y métodos
El estudio se realizó en la localidad de Concá, municipio de Arroyo Seco, Querétaro, México, ubicada en las coordenadas 21°26'38" N y 99°38'11" O, a una altitud de 560 metros sobre el nivel del mar (Fig. 1). El ecosistema predominante es bosque tropical caducifolio, con un clima semi-seco, temperatura media anual de 22 °C y régimen de lluvias concentrado en verano. La principal actividad económica en la zona es la agricultura (Instituto Nacional de Ecología, 1999).
El estudio se llevó a cabo, entre 2019 y 2022, en cinco huertas comerciales de naranja Valencia (Citrus sinensis), (Cuadro 1). La selección de las huertas se realizó con base en criterios de accesibilidad, manejo fitosanitario homogéneo y representatividad regional.
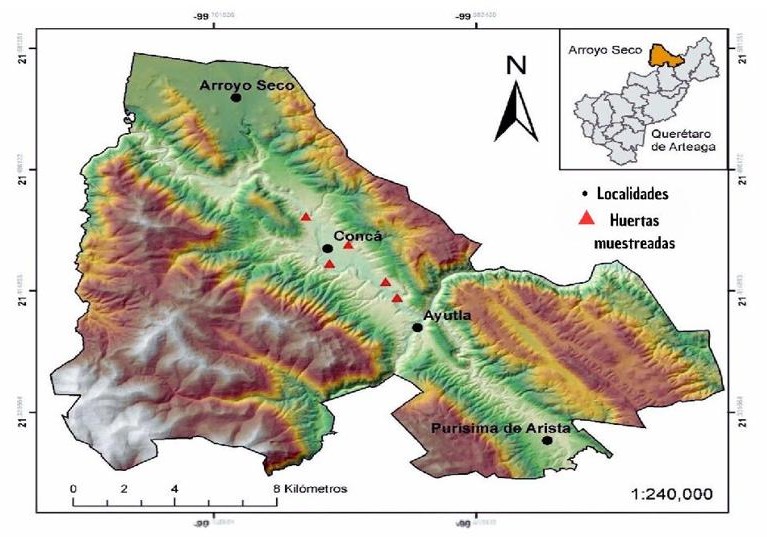
Figura. 1 Localización de las huertas de cítricos en Concá, Arroyo Seco, Querétaro. Modificado de Velázquez-Barrera (2024).
Cuadro 1 Características de las huertas de cítricos en Concá, Arroyo Seco, Querétaro.
| Huerta | Latitud | Longitud | Altitud | Variedad | Manejo | Sistema de cultivo |
| Coyote | 21.411263 | 99.595077 | 580 | Valencia | Convencional | Combinado con maíz de temporal |
| Rancho el Coyote | 21.422657 | 99.602099 | 585 | Valencia | Convencional | Monocultivo |
| Concá | 21.434289 | 99.637108 | 560 | Valencia | Agroecológica | Combinado con Mango |
| La Cruz | 21.45085 | 99.62893 | 570 | Valencia | Convencional | Monocultivo |
| Las Pilas | 21.464679 | 99.646031 | 550 | Valencia | Agroecológica | Policultivo |
El monitoreo de adultos de D. citri se efectuó mediante el uso de trampas amarillas adhesivas cuadriculadas de doble cara, con dimensiones de 12 × 20 cm. De acuerdo con el protocolo establecido por el Servicio Nacional de Sanidad, Inocuidad y Calidad Agroalimentaria, (SENASICA, 2020), se colocaron 20 trampas por huerta, ubicadas en el borde de la parcela, a una altura aproximada de dos metros y orientadas hacia el suroeste, con una separación de diez metros entre trampas.
Las trampas fueron recolectadas cada 14 días. En cada visita, las trampas se almacenaron en grupos de 20 por huerta dentro de hieleras y se trasladaron al Laboratorio de Manejo y Conservación de Recursos Naturales del CIDAF-UAQ, donde se contabilizó el número de individuos adultos.
Para el registro de variables climáticas, se instalaron sensores de datos tipo data logger. Los dispositivos fueron programados para registrar temperatura y humedad de forma continua.
La media mensual de adultos capturados por trampa en cada huerta y en cada año fue analizada con la prueba de normalidad de Shapiro-Wilk, debido a que los datos no cumplieron con los supuestos de normalidad, se aplicó la prueba no paramétrica de Kruskal-Wallis (p ≤ 0.05) para comparar las diferencias en las medias de captura por trampa, entre las huertas y los meses dentro de cada año, además se realizó un modelo lineal mixto generalizado para observar el efecto de los meses de muestreo sobre la abundancia. Para observar la autocorrelación espacial de la abundancia de D. citri en las huertas se realizó el índice de Morán. Adicionalmente, por medio de la distribución de Kernel, se examinó la relación entre factores climáticos como la temperatura y la humedad relativa, con la abundancia de adultos de D. citri capturados en trampas. Se realizó un análisis de correlación cruzada entre la abundancia y los factores climáticos para detectar desfases temporales en la escala de tiempo. Todos los análisis estadísticos se realizaron con el software R, versión 4.3.1 (R Core Team, 2023).
Resultados
Durante el periodo de estudio, fue registrado el número de adultos de D. citri en las huertas monitoreadas. No se identificó un patrón consistente de fluctuación poblacional entre los distintos años del muestreo.
Para evaluar la presencia de patrones de agrupamiento espacial en la abundancia, se calculó el índice I de Moran, el resultado indica que no existe una autocorrelación espacial significativa (I = 0.253, p>0.05), lo que sugiere que los valores se distribuyen de manera aleatoria en las huertas muestreadas. En ese sentido se observaron diferencias significativas entre las huertas muestreadas (p < 0.05); las huertas con mayor media de captura por trampa durante todo el periodo de muestreo fueron Rancho el Coyote, seguidas de la huerta la Cruz y el Coyote con 23.4, 13.0 y 12. 4 ejemplares de D. citri por trampa, finalmente las huertas con menor media de captura fueron las Pilas con 2.0 D. citri y la huerta Concá con 1.1 insectos capturados (Fig. 2).
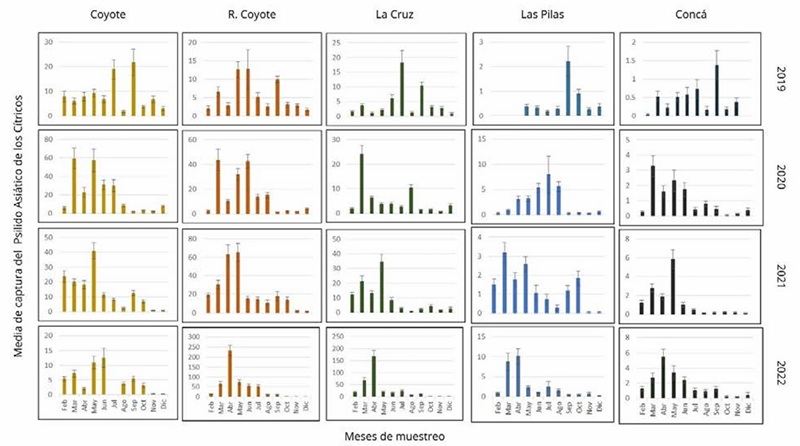
Figura 2 Fluctuación de adultos capturados en trampas durante el periodo de muestreo en Concá, Arroyo Seco. El eje horizontal inferior muestra los meses de muestreo, el eje vertical de la derecha muestra la abundancia del D. citri, mientras que el eje vertical de la izquierda muestra los cuatro años del muestreo, cada columna hace referencia a las huertas muestreadas. Las líneas dentro de las barras indican el error estándar (p < 0,05).
De acuerdo el modelo lineal mixto generalizado se observó un efecto significativo de los meses sobre la abundancia de D. citri (x² = 43.75 p < 0.05) lo que indica que la abundancia de D. citri es muy variable a lo largo de los meses del periodo de muestreo. En ese sentido en 2019, se registraron diferencias estadísticas significativas en la abundancia mensual de D. citri (p < 0.05). En ese año, los picos poblacionales más altos se observaron en los meses de julio y septiembre, con medias mensuales de captura de 8.06 y 9.02 individuos por trampa, respectivamente. Por su parte, en 2020, el análisis reveló diferencias significativas entre los meses de muestreo (p < 0.05), en este caso, el mayor número de capturas se registró en marzo, con una media mensual de 26.21 individuos por trampa. Así mismo, en 2021 se observaron diferencias estadísticamente significativas en la abundancia mensual de D. citri (p < 0.05). Durante este año, el pico poblacional se presentó en el mes de mayo, con una media mensual de 29.87 individuos por trampa. Finalmente, en 2022 se detectaron nuevamente diferencias significativas entre los meses muestreados (p < 0.05). En particular, el valor más alto de captura se registró en abril, con una media mensual de 83.8 individuos por trampa, siendo este el pico poblacional más elevado de todo el periodo de estudio (Fig. 2). Por el contrario, durante los cuatro años del estudio se observó un notable descenso en las densidades de D. citri capturadas entre los meses de septiembre y diciembre. Este patrón sugiere que las condiciones climáticas más frías podrían ser un factor determinante en la disminución de las poblaciones de este insecto.
El análisis de correlación cruzada entre los factores climáticos y la abundancia de D. citri evidenciaron la presencia de un patrón oscilante con alternancia de correlaciones positivas y negativas a lo largo de los rezagos. Por ejemplo, la temperatura promedio, en el rezago cero (lag = 0) se observó una correlación positiva y significativa, lo que indica que las variaciones en la temperatura y la abundancia de insectos tienden a ocurrir de manera simultánea. Asimismo, se detectaron picos de correlación significativa en rezagos positivos, lo que sugiere que los cambios en la temperatura anteceden parcialmente a los cambios en la abundancia. Este hallazgo es consistente con la hipótesis de que, la temperatura actúa como un factor ambiental clave que modula la dinámica poblacional de los insectos, influyendo en procesos fisiológicos y reproductivos que se manifiestan con un cierto desfase temporal (Fig. 3A). Por otra parte, la alternancia de correlaciones negativas en algunos rezagos refleja la existencia de un componente cíclico o estacional en la relación entre ambas variables. Este patrón sugiere que la abundancia de insectos no solo responde a incrementos inmediatos de la temperatura, sino que también está condicionada por los ciclos biológicos de la especie y por la variabilidad climática estacional. En conjunto, estos resultados respaldan la conclusión de que la temperatura es un determinante fundamental en la fluctuación de la abundancia de insectos, actuando tanto de forma directa como a través de rezagos temporales asociados a sus ciclos poblacionales.
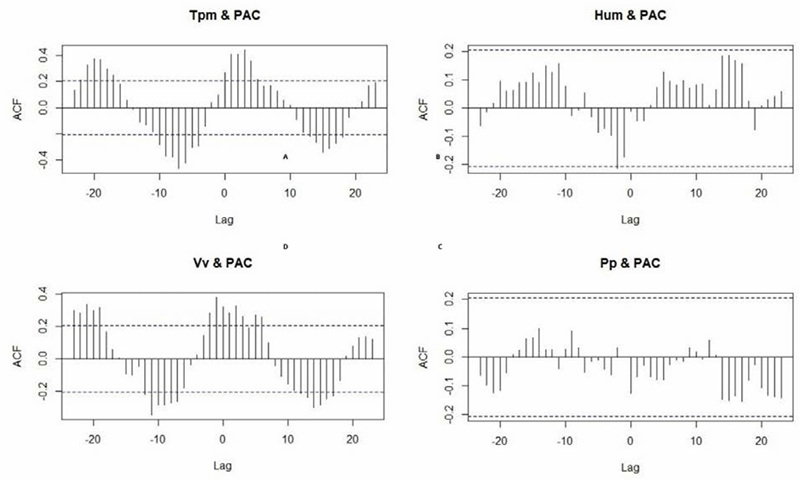
Figura 3 Correlación cruzada entre la abundancia y factores climáticos: Tpm=Temperatura promedio, Hm= Humedad, Pp= Precipitación, Vv= Velocidad del viento y PAC = D. citri.
El análisis de correlación cruzada entre la velocidad del viento (Vv) y la abundancia de D. citri reveló patrones significativos a lo largo de varios desfases temporales (lags). Se observaron correlaciones positivas significativas en lags negativos, particularmente entre los desfases -20 y -10, lo que sugiere que, incrementos en la velocidad del viento preceden a aumentos en la abundancia. Esta relación se podría indicar un efecto de arrastre o dispersión de los individuos adultos facilitados por las corrientes de aire que se puedan generar. Sin embargo, también se identificaron correlaciones negativas significativas en lags positivos, lo cual sugiere que aumentos en la velocidad del viento están asociados con una disminución posterior en la abundancia de D. citri. Esta tendencia puede interpretarse como un posible efecto adverso del viento sostenido sobre el establecimiento, reproducción o supervivencia de los insectos (Fig. 3D).
En conjunto, estos resultados indican que la velocidad del viento ejerce una influencia compleja y dependiente del tiempo sobre la dinámica poblacional de D. citri, con posibles efectos tanto de facilitación como de inhibición según el momento del ciclo fenológico en que ocurre la perturbación.
Por su parte la precipitación (Pp), la humedad (Hum) y la abundancia de D. citri no revela correlaciones significativas en ninguno de los lags considerados (Fig. 3 B y C3). A lo largo del rango de desfases temporales analizados, aunque existen algunas fluctuaciones menores en los lags, ninguna de ellas es estadísticamente significativa, lo que sugiere que, en general, las variaciones en la precipitación y la humedad no parecen influir de manera directa o inmediata en la dinámica poblacional de los adultos en el periodo estudiado, la humedad relativa parece tener un efecto complejo en la abundancia de adultos, con impactos negativos en el corto plazo y positivos en el mediano plazo, lo que podría ser relevante para entender las fluctuaciones poblacionales de esta plaga bajo diferentes condiciones microclimáticas.
Complementando lo anterior, el análisis de correlación de Spearman mostró asociaciones positivas débiles, pero estadísticamente significativas, entre la abundancia de adultos y la temperatura mínima (ρ = 0.092, p < 0.001) y la temperatura promedio (ρ = 0.060, p < 0.001). De igual forma, la humedad relativa (ρ = 0.059, p = 0.005) y la precipitación (ρ = 0.090, p < 0.001) presentaron correlaciones positivas con la abundancia de D. citri, lo que indica que condiciones más húmedas y con mayor pluviosidad favorecen su incremento poblacional. Finalmente, la velocidad del viento mostró una correlación positiva y significativa (ρ = 0.047, p = 0.025), constituyendo la asociación más fuerte entre las variables climáticas evaluadas. Los picos poblacionales se concentraron dentro de un rango térmico de 25-30 °C.
En contraste, no se encontró una relación significativa con la temperatura máxima (ρ = 0.007, p = 0.750), esto posiblemente a las temperaturas extremas que se pueden registrar en la zona de hasta 40°C, lo cual está fuera de los valores óptimos para el desarrollo de D. citri. Estos resultados sugieren que, aunque los factores climáticos influyen en la abundancia, su efecto individual es limitado y probablemente actúan de manera conjunta o con cierto desfase temporal (Cuadro 2).
Cuadro 2 Correlación de Spearman entre la abundancia y las variables climáticas. Tmx= Temperatura máxima, Tmn= Temperatura mínima, Tpm=Temperatura promedio, Hm= Humedad, Pp= Precipitación y Vv= Velocidad del viento. * Valor de p < 0.05.
| Tmx | Tmn | Tpm | Hm | Pp | Vv | |
| Coeficiente de correlación de Spearman (ρ) | 0.007 | 0.09 | 0.06 | 0.05 | 0.09 | 0.04 |
| Valor de p | 0.75 | 0.001* | <0.005* | <0.005* | 0.0012* | <0.02* |
Tmx= Temperatura máxima, Tmn= Temperatura mínima, Tpm=Temperatura promedio, Hm= Humedad, Pp= Precipitación y Vv= Velocidad del viento. * Valor de p < 0.05
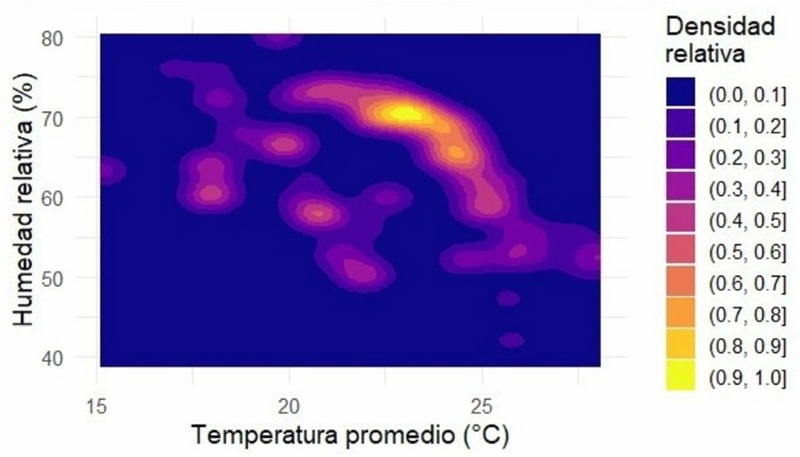
La temperatura promedio y la humedad relativa son factores de suma importancia para el desarrollo de los insectos, por lo que, por medio del análisis de densidad de Kernel se determinó que la mayor densidad de D. citri se relaciona con temperaturas promedio (Tpm) entre los 22 y 24°C, combinadas con porcentajes de humedad relativa entre los 68 y 70 % (Hum). De hecho, los picos poblacionales más altos se registraron dentro de un rango de temperatura entre 22 y 26 °C. Por ejemplo, en 2021, el pico de abundancia observado en mayo coincidió con una temperatura media de 25 °C. Por otro lado, la humedad relativa (Hm) presentó 70% lo que indica que esos rangos de temperatura y humedad están asociados con densidades altas en las poblaciones de D. citri capturadas en las trampas (Fig. 4).
Discusión
Los resultados del presente estudio demuestran que D. citri estuvo presente de manera constante durante todo el año en las huertas comerciales de naranja Valencia en Concá, Querétaro, lo que indica una alta capacidad de adaptación del insecto a las condiciones ambientales locales. Esta presencia continua representa un desafío importante para los sistemas de manejo fitosanitario, ya que requiere estrategias sostenidas en el tiempo.
Uno de los hallazgos más relevantes fue la variabilidad interanual en los picos poblacionales del insecto. Mientras que en 2019 los máximos se presentaron en julio y septiembre, en los años posteriores los picos se desplazaron a marzo (2020), mayo (2021) y abril (2022). Este desplazamiento sugiere una respuesta dinámica del insecto a las condiciones climáticas y fenológicas de cada año, lo cual coincide con estudios previos que destacan la naturaleza local y variable de su dinámica poblacional (Luna-Cruz et al., 2018).
El análisis estadístico reveló diferencias significativas en la abundancia mensual en todos los años del estudio, lo cual confirma que las fluctuaciones poblacionales no son aleatorias y están influenciadas por factores ambientales específicos. La correlación positiva y significativa entre las temperaturas (mínima y promedio) y la abundancia de D. citri respalda la hipótesis de que los insectos tienen un rango óptimo que favorece su desarrollo y reproducción. De hecho, se observó que los picos poblacionales se concentraron en un rango térmico entre 25 y 30 °C, consistente con los valores óptimos para el ciclo biológico del insecto reportados por Luna-Cruz et al. (2018), Tomaseto et al., (2018) Aidoo et al., (2022), Rodríguez-Aguilar et al., (2023) y Van Steenderen et al., (2024).
Así mismo, la baja correlación con la humedad relativa indica que niveles elevados de humedad podrían limitar el desarrollo de los adultos de D. citri, posiblemente al afectar la viabilidad de sus fases inmaduras o alterar la calidad de los brotes tiernos. La relación entre la abundancia y la precipitación podría explicarse por la irregularidad de las lluvias o su efecto indirecto, más asociado al brote que al insecto en sí. Por sus altas temperaturas (>40 °C) reducen la capacidad de vuelo y dispersión de D. citri (Antolínez et al., 2021), mientras que temperaturas óptimas (alrededor de 26 °C) favorecen vuelos largos.
Particularmente interesante fue el hallazgo de una fuerte correlación positiva entre la velocidad del viento y la abundancia de D. citri. Este resultado sugiere que el viento podría facilitar la dispersión activa o pasiva de los adultos entre huertas, un aspecto que ha sido poco explorado en la literatura, pero que merece atención futura por su potencial en la propagación de poblaciones resistentes o infectadas con HLB.
En cuanto a la estacionalidad, los meses de octubre a diciembre presentaron consistentemente una reducción en las densidades del insecto, patrón también reportado por Aguilar-Carpio et al. (2017), Yzquierdo-Álvarez et al. (2021) y Álvarez-Ramos et al. (2022). Esta disminución puede atribuirse a la combinación de temperaturas más bajas, menor fotoperiodo y una reducción en la disponibilidad de brotes jóvenes, condiciones menos favorables para el desarrollo y reproducción del insecto.
La comparación con otros estudios refuerza la idea de que, si bien las condiciones climáticas tropicales y subtropicales son óptimas para el establecimiento de D. citri (García et al., 2016), factores como el manejo agronómico, la variedad hospedera y la edad de los árboles juegan un papel fundamental en la dinámica poblacional (Aguilar-Carpio et al., 2017); pero aún más importante será la fenología del cultivo, al ser el sitio donde se ovipositan los huevecillos y las ninfas pasan sus primeros instares. Incluso con la implementación de estrategias de control como el uso de Tamarixia radiata, hongos entomopatógenos y control químico, como las aplicadas por el CESAVEQ, se ha reportado un incremento en la densidad del insecto entre 2019 y 2022 (Obregón-Zúñiga et al., 2023), lo que pone en evidencia las limitaciones de las medidas actuales cuando no se acompañan de un monitoreo climático y fenológico constante.
Finalmente, aunque la disponibilidad de brotes ha sido considerada un factor clave en la proliferación del insecto, Hernández-Landa et al. (2018) demostraron que su efecto depende de la fase del ciclo biológico de D. citri, afectando más directamente a los huevos y ninfas. Por tanto, un manejo integrado exitoso debe considerar no solo el momento de mayor abundancia de adultos, sino también las condiciones que favorecen la oviposición y el desarrollo temprano del insecto.
En conjunto, los resultados de este estudio aportan evidencia sólida sobre la relación entre variables climáticas y la dinámica poblacional de D. citri en un sistema citrícola semi-seco, y destacan la necesidad de adaptar las estrategias de manejo a las condiciones ambientales locales para mejorar su eficacia.
Conclusiones
Diaphorina citri estuvo presente durante todo el año, con picos poblacionales asociados a temperaturas entre 25 y 30 °C. La temperatura y la velocidad del viento se correlacionaron positivamente con su abundancia, mientras que la humedad tuvo un efecto negativo. Estos resultados destacan la importancia de considerar factores microclimáticos del sitio para emplear planes de manejo más efectivo de D. citri.

