


 nueva página del texto (beta)
 Español (pdf)
 Artículo en XML
 Referencias del artículo

 Traducción automática
 Enviar artículo por email
 Citado por SciELO
 Similares en
SciELO

 Permalink


Introducción
México es uno de los países con mayor diversidad de flora a nivel mundial (alrededor de 22 000 especies), incluyendo 4 000 con características para uso ornamental, alimenticio o ambas (Martínez-Damián et al., 2021). Muchas de estas especies son aprovechadas en el extranjero; sin embargo, son poco conocidas y valoradas a nivel nacional. Un caso particular lo constituye Cosmos atrosanguineus (comúnmente llamada Cosmos chocolate), la cual a pesar de ser endémica, no existe registro de manejo comercial, generación de variedades y se encuentra entre las especies amenazadas por las actividades antropogénicas en su hábitat natural.
Cosmos chocolate se ha considerado como una especie extinta en su hábitat silvestre debido a que la última colecta data de 1860 y no se le había reencontrado hasta 2007, cuando un grupo de investigadores de la Universidad de Guadalajara, liderados por el botánico Aarón Rodríguez, registró pequeñas poblaciones en San Luis Potosí, Guanajuato y Querétaro (Hind y Fay, 2003; Oku et al., 2008; Rice, 2017). La planta de Cosmos chocolate posee alto potencial ornamental que ha sido mejorada genéticamente y comercializada (planta para maceta, jardín o flor de corte) en Nueva Zelanda, Japón, Estados Unidos de América y algunos países de Europa (Jelitto, 2016; Poulter y Butler, 2019; Rice, 2017). Sin embargo, en México es poco conocida y aún más su manejo agronómico, por lo cual no se tiene registro de su comercialización. Por ello, el objetivo de este artículo es recopilar, analizar y resumir la información de Cosmos chocolate disponible en libros, artículos científicos (Web of Science y Scopus), páginas web, manuales y folletos de manejo agronómico, así como actas de congresos y eventos científicos con el propósito de promover la difusión y conocimiento de este recurso fitogenético endémico de México.
1. Historia de cosmos en el mundo
En 1861 la sociedad del Reino Unido se maravilló con la llegada de plantas de Cosmos chocolate provenientes de México. Durante muchos años se ofrecieron semillas al público por Thompson & Morgan Seed Company, una de las casas semilleras más importantes de esa nación. Sin embargo, la fascinación y precio por esta planta decreció, lo que sugería un exceso en la producción de semillas o que se buscaba liquidar las existencias durante la austeridad en los tiempos de guerra en 1942 ya que a que al año siguiente desapareció de los catálogos de la compañía semillera (Rice, 2017). Debido a la posterior inexistencia de Cosmos chocolate en el mercado, incluso se llegó a pensar que se había extinguido de su hábitat natural en México y que el único material vegetal disponible era un clon estéril que se conservaba en el Royal Botanic Garden, Kew en Inglaterra. No obstante, ahora se sabe que ejemplares de esta especie han seguido creciendo y desarrollándose en distintos sitios de México y que no han perdido su capacidad para producir semillas (Gómez-Pedraza et al., 2019b; Hind y Fay, 2003).
En 1997, en colaboración con la Royal Botanic Garden, Kew, dio inicio un programa de reintroducción del material vegetal a México a través de la Universidad Nacional Autónoma de México. Para este fin, se repatriaron plantas in vitro de un clon estéril, donde se continuó con su propagación y miras a la posible reintroducción al medio silvestre (Hind y Fay; 2003; Rice, 2017).
La propagación, mejoramiento genético e investigación integral son claves para la preservación de esta especie, por lo cual en la Universidad Autónoma Chapingo, puso en marcha un programa de propagación, mejoramiento genético y uso de varias especies del género Cosmos, incluyendo C. astrosanguineus. En esta línea, con el objetivo de resguardar el material vegetal se ha llevado a cabo su traslado al Laboratorio de Cultivo de Tejidos Vegetales in vitro del Centro Nacional de Recursos Genéticos de Tepatitlán de Morelos, Jalisco, México.
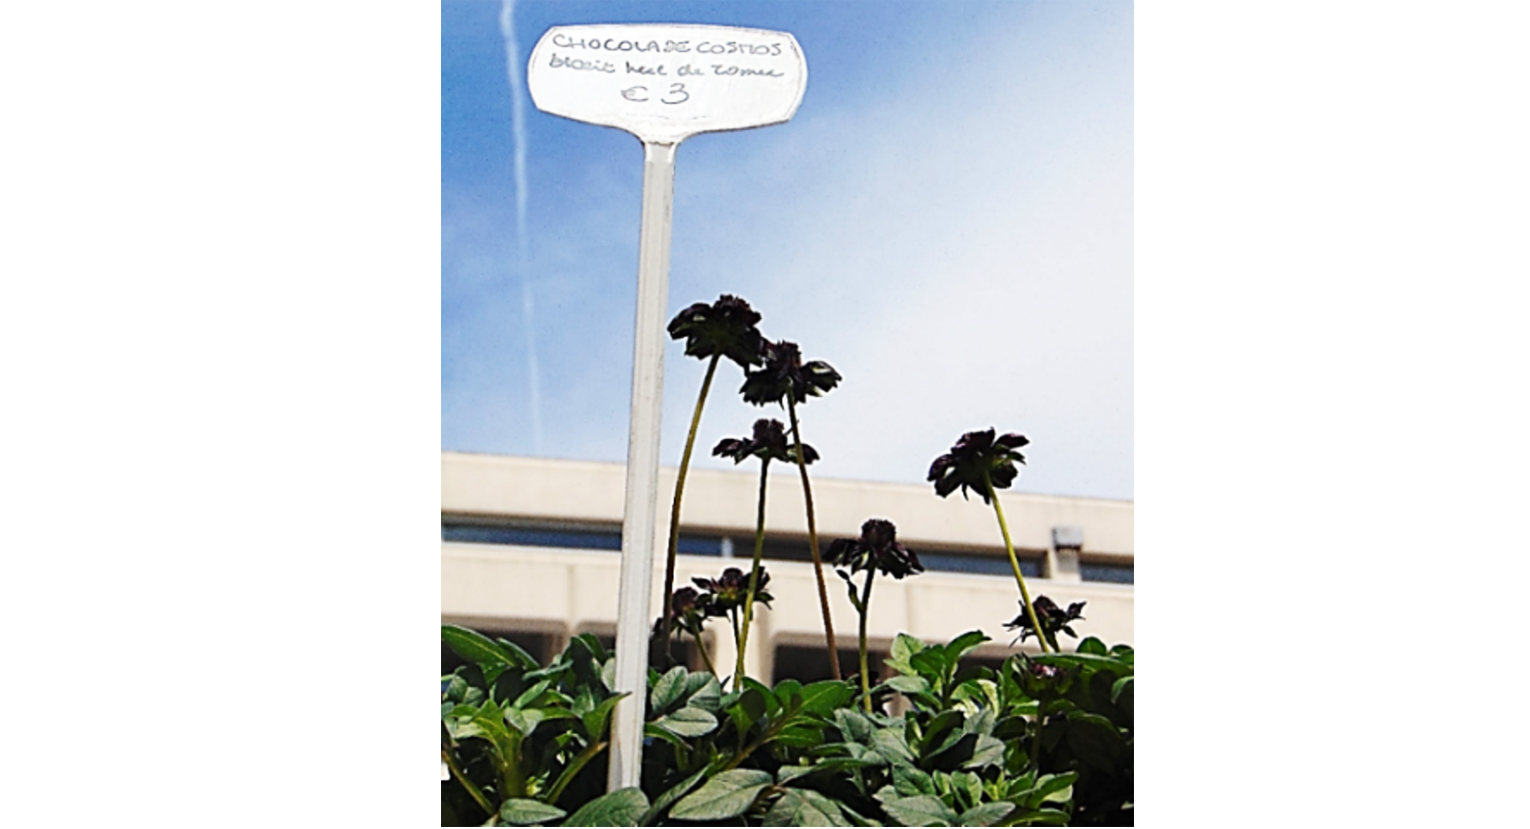
En México la planta es conocida casi en exclusivo por los grupos de investigadores que la estudian y que buscan la reintroducción a su medio o que están haciendo mejoramiento genético para colocarla en el mercado. A pesar de ser endémica en territorio nacional, es muy conocida en Bélgica y Países Bajos, donde se encuentra en venta en mercados de flores (figura 1).
En algunos países del lejano oriente, como Japón, se sabe que ha sido usada en bodas como ramo para novias. Incluso, un manga (historietas japonesas) lleva por nombre Cosmos chocolate y está inspirado en el aroma a chocolate de esta flor (NovelCool, 2022).
2. Distribución geográfica y descripción botánica
Cosmos chocolate (C. atrosanguineus) es una especie que pertenece al género Cosmos. Su nombre se debe a su fragancia similar al chocolate, la cual desprenden las flores durante la producción de polen. Es endémica en México y se distribuye en zonas de bosque pino-encino en los estados de Hidalgo, Guanajuato, Querétaro y San Luis Potosí con altitudes de 1 800 msnm a 2 450 msnm (figura 2) (Castro-Castro et al., 2014; Rice, 2017).
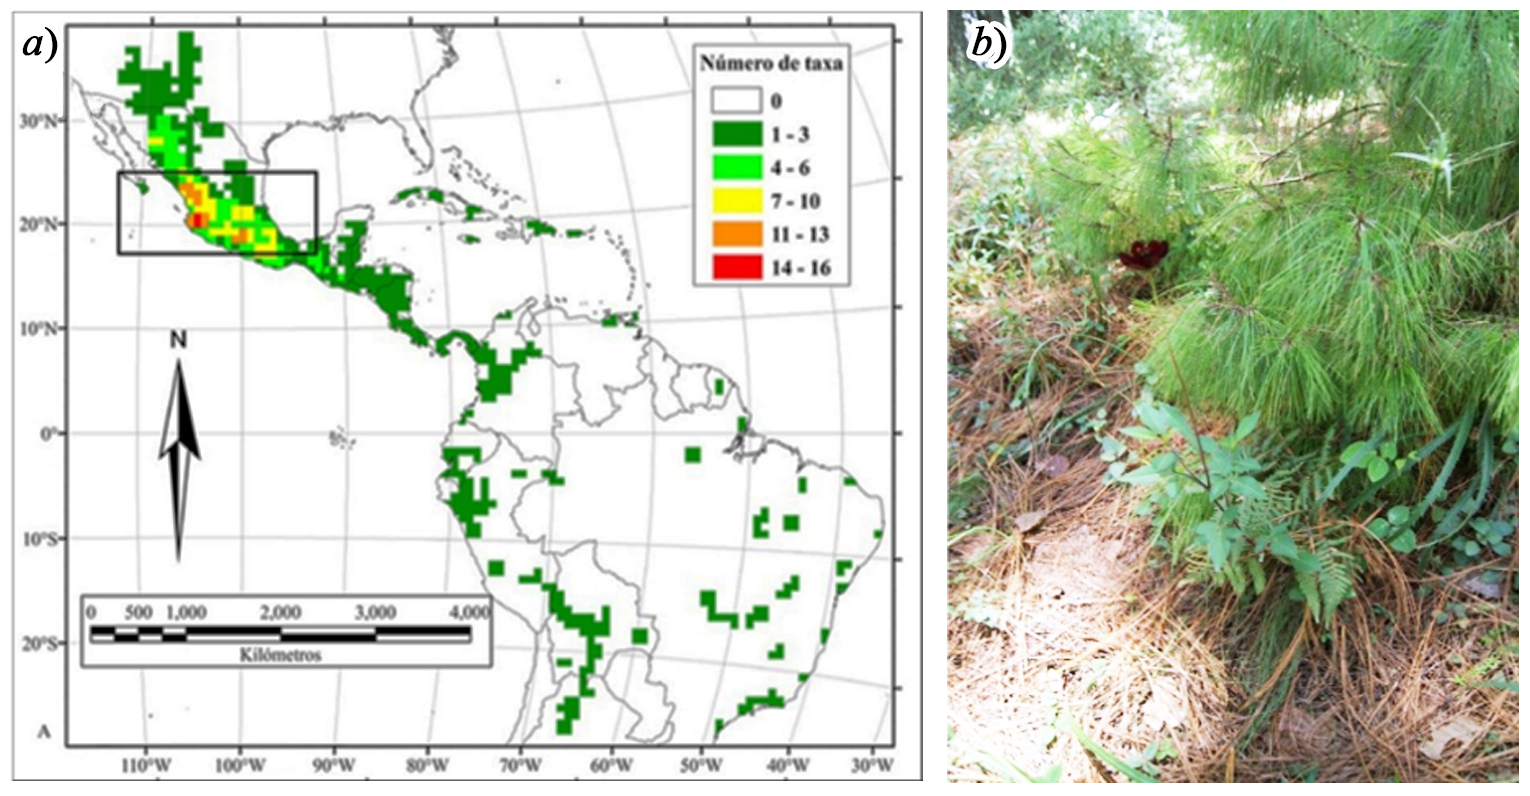
Fuente: a) Vargas et al. (2013), b) fotografía tomada en Sierra de Zimapán, Hidalgo, México. Nota: a) Distribución del género Cosmos. b) Hábitat silvestre de Cosmos chocolate (C. atrosanguineus).
FIGURA 2 Distribución y hábitat silvestre de Cosmos chocolate
El género Cosmos se encuentra conformado por 35 especies, las cuales se encuentran distribuidas desde el suroeste de Estados Unidos de América hasta el norte de Argentina. En el mapa de la figura 2 se observa la distribución y la riqueza en el número de taxas de las especies del género Cosmos por área geográfica. Este mapa se obtuvo a partir de una base de datos construida con la información contenida en los diferentes herbarios físicos y electrónicos de diversas instituciones en Estados Unidos de América, Centroamérica y Sudamérica. En este sentido, con el uso de programas de cómputo, SIG y cartografía digital se logró determinar la distribución y riqueza de estas especies.
Se encuentra dividido en tres secciones (C. sección Cosmos, C. sección Mesinenia y C. sección Discopoda), categorizadas de esta manera por el hábito de crecimiento. En la sección Cosmos se agrupan ocho especies con la característica de ser hierbas anuales con altura entre 0.5 y 2.5 m, presencia de flores liguladas de color naranja, amarillo, rosa o blanco. En la sección Mesinenia, se agrupan cinco especies, son hierbas sufrútices perennes, erectas de 0.6-1.3 m de altura, base leñosa y engrosada, de raíces adventicias robustas al igual que la sección Cosmos, las flores liguladas presentan varios colores. En la sección Discopoda se agrupan 22 especies. Se trata de hierbas perennes de 0.3-1.5 m, de altura, con raíces tuberosas fasciculadas con el potencial de producir plantas independientes, suelen presentar variación foliar y las flores liguladas en su mayoría rosadas, violetas, lilas, púrpuras o atropurpúreas. Esta sección es extremadamente variable, ya que las características vegetativas y reproductivas se sobreponen y hacen difícil establecer los límites de cada especie (Castro-Castro et al., 2013; Castro-Castro et al., 2014; Vargas-Amado et al., 2013).
C. atrosanguineus está clasificada como parte del género Cosmos en la sección Discopoda. Sin embargo, cuando fue colectada por primera vez en México se le clasificó dentro de otros géneros como Bidens y Dahlia, por lo que ha tenido diferentes nombres científicos como Dahlia zimapani, C. diversifolius var. atrosanguineus y Bidens atrosanguineus (Oku et al., 2008; Rice, 2017; Sherff, 1932).
Hind y Fay (2003) y Sherff (1932) describen la morfología de la especie C. atrosanguineus de la siguiente forma: es una planta perenne que desarrolla raíces tuberosas con una longitud de 3 cm y entre 1.5-3 cm de diámetro (figura 3a).
a) Inflorescencia: capítulos terminales y axilares solitarios sobre pedicelos alargados de 35-50 cm de largo, 2-4 mm de diámetro, por lo general escaposo rara vez con una o dos brácteas muy reducidas, muy estrechamente lanceoladas, hasta 1.5 cm de largo × 3 mm de ancho, de color púrpura oscuro, excepto hacia el ápice donde se vuelve verdoso. Los capítulos radiados, heterógamos, de 4 cm de diámetro, conspicuos por las flores liguladas que se extienden casi sin tubos y la columna central de flores del disco erectas rodeadas por un anillo de páleas de color marrón rojizo completamente oscuro (figura 3c, d).
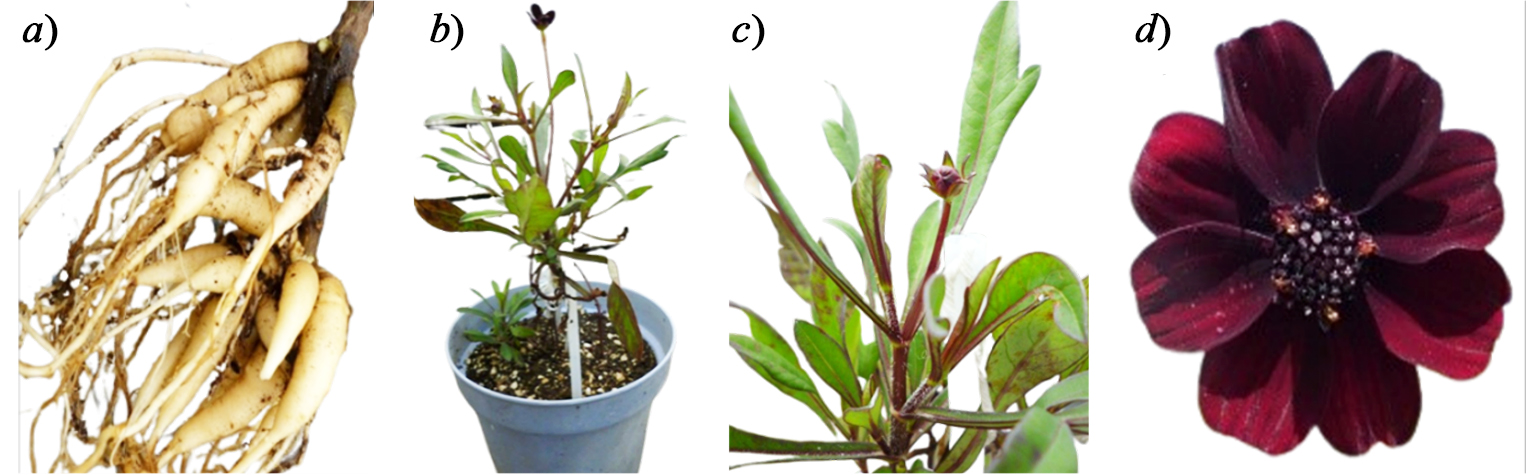
Nota: a) raíz tuberosa, b) planta en floración, c) botón floral, d) inflorescencia de Cosmos chocolate. Por lo general pubescentes en la parte inferior y en las ramas florales, pero glabros en la parte superior de la mayoría. Con frecuencia poseen brotes vegetativos y florales jóvenes con hojas pecioladas simples, hojas posteriores conspicuamente pinnadas con dos o tres pares de folíolos sobre un raquis estrechamente alado y con un lóbulo terminal conspicuo simple, o a veces lobulado, ápice del lóbulo obtuso a redondeado, de 5 cm de largor × 2 cm de ancho (figura 3b).
FIGURA 3 Morfología de C. atrosanguineus
b) Involucro: al principio ancho y superficialmente ciatiforme que se convierte eventualmente en pateliforme o casi plano de 2 cm de diámetro (figura 4).
c) Filarias: biseriadas, 10 filarias externas de 9 mm de largo × 2.8-3 mm de ancho, extendidas, uniformemente verdes, filarias internas 10, de 9-11 mm de largo × 3.5-4 mm de ancho, verdes en la base y violáceas hacia los ápices, márgenes enteros, ápices agudos, a menudo redondeados, con las mitades superiores recurvadas hacia las filarias externas, receptáculo plano a ligeramente convexo, pálido.
d) Flores liguladas, generalmente 8, uniseriadas, eventualmente deciduas dejando la columna central de las flores del disco, extremidad radial de 15-20 mm de largo × 10 mm de ancho, obovadas, lóbulos muy variables, comúnmente con dos o tres; si tienen dos lóbulos, los lóbulos son poco profundos; si tienen tres lóbulos, entonces el lóbulo central es ligeramente más largo que los dos externos, con un intenso color marrón rojizo oscuro (mucho más oscuro que el color de la carta de colores RHS CC Greyed-Purple 187A, pero con un toque de marrón rojizo), márgenes enteros excepto por el ápice ligeramente bilobulado, de escasa a moderada pubescencia sobre la nervadura y generalmente más denso hacia la base de las venas, tres venas prominentes (una para cada lóbulo), con varias venas menores prominentes a través del limbo, lámina del limbo glabra, el limbo al principio aparece negro arriba pero con toques de rojo oscuro, tubo de la corola de 0.5 mm de largo, moderadamente pubescente con largos pelos multicelulares uniseriados, aquenio rudimentario (figura 3d).
e) Flores del disco: 40, hermafroditas, presumiblemente fértiles en el material original, pero aparentemente estéril en todo el material cultivado, tubo de la corola de 2 mm de largo, verde, la porción inferior glabra luego de escasa a moderadamente pubescente, cuello de la corola de 4-4.5 mm de largo, ensanchándose gradualmente hasta la base de los lóbulos desde 0.8-1.5 mm de diámetro, verdoso en la base que pasa rápidamente de rosa a marrón rojizo oscuro en la mitad superior, muy escasamente pubescente por fuera, lóbulos de la corola de 1 mm de largo × 1 mm de ancho, anchamente triangulares, ápices agudos, al principio pubescentes y glabros en la madurez, cilindro de la antera parcialmente extraído del tubo de la corola, teca de la antera de color marrón negruzco, apéndices apicales de la antera estrechados en la base y expandidos en un apéndice ondulado con márgenes de color marrón rojizo con un centro sólido de color marrón negruzco, filamentos de la antera adheridos a la base del tubo de la corola, glabros en la base, pero pubescente moderadamente en el tercio medio, glabros en el tercio superior y constreñidos debajo del collar de la antera, base del estilo glabra y rodeada por un nectario en forma de collar, eje del estilo glabro, verde amarillento en la base que se torna marrón rojizo oscuro a aparentemente negruzco en el ápice, brazos del estilo extendidos, de color marrón rojizo oscuro.
f) Aquenios: inmaduros e infértiles/estériles en material cultivado, cuerpo de 13 a 20 mm de largo, papus de 2-3, polen abundante, amarillo (Hind y Fay, 2003).
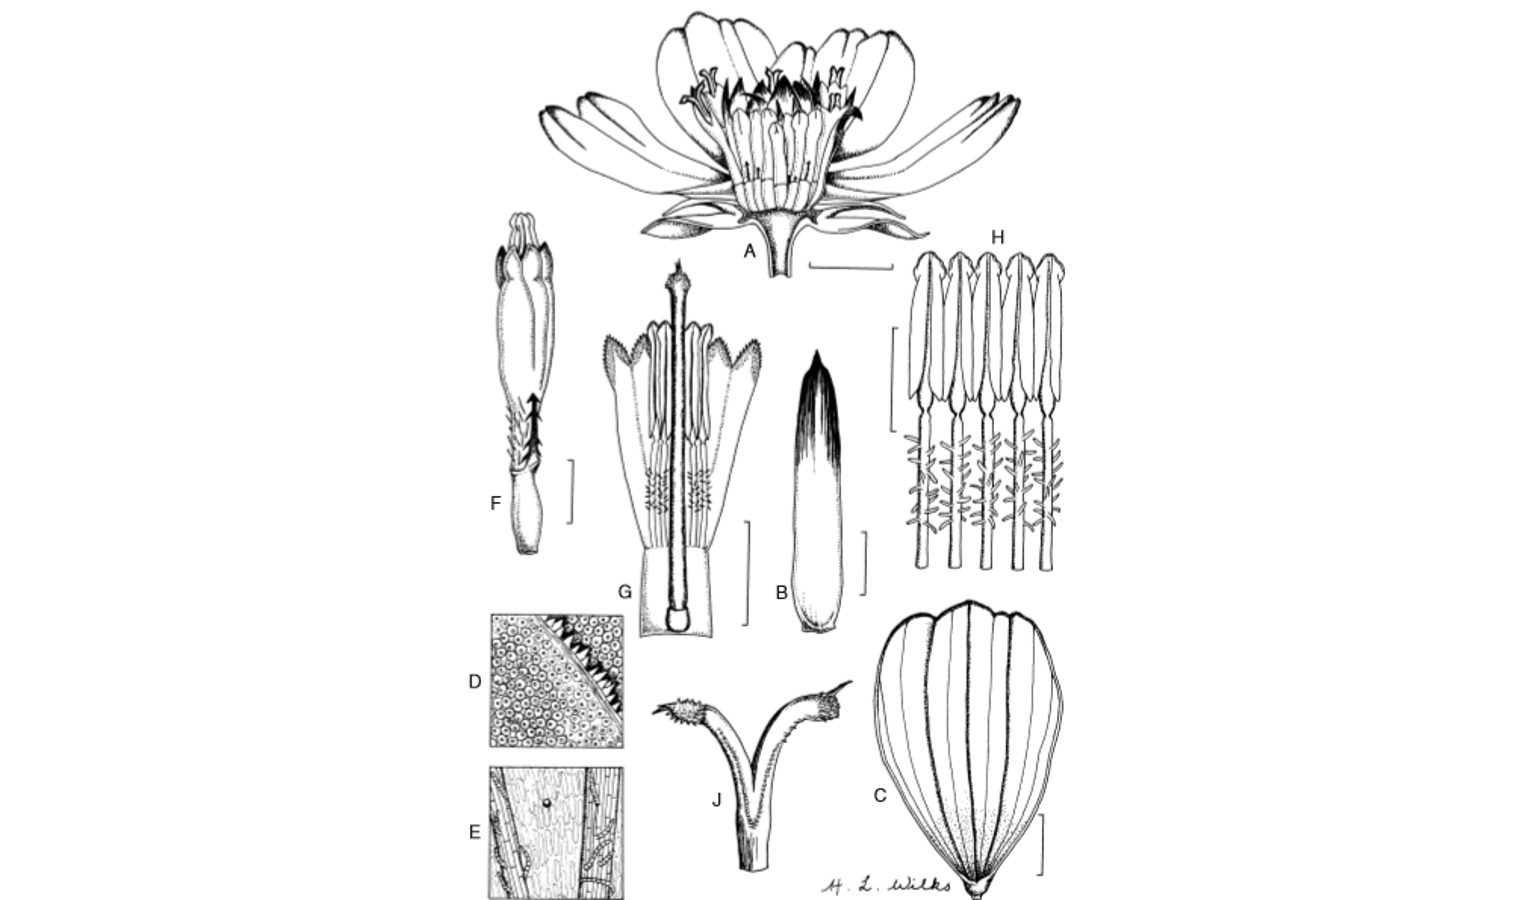
Fuente: Hind y Fay (2003). Nota: A = capítulo, B = pálea, C = flor ligulada, D, E = superficie superior e inferior respectivamente de la flor ligulada, F = flor tubular, G = corola abierta de la flor tubular, H = cilindro de la antera abierto, J = brazos de estilo.
FIGURA 4 Morfología floral de C. atrosanguineus
3. Generación de variedades
En 1860 se realizó la primera colecta de semilla en Zimapán, Hidalgo, que llegaría a manos de William Thompson, el fundador de Thompson & Morgan Seed Company, Ipswich, Inglaterra, y a Eduard Ortgies del Botanical Garden de la Universidad de Zurich, donde comenzó la siembra y más tarde su comercialización (Hind y Fay, 2003; Poulter y Butler, 2019; Rice, 2017).
Entre 1885 y 1942 se mantuvo en el catálogo de Thompson & Morgan la venta de semillas de la especie bajo el nombre de C. diversifolius atrosanguineus y de un cultivar llamado King of the Blacks. Posterior a 1942, desaparecieron del catálogo, e incluso se dejaron de cultivar (Poulter y Butler, 2019; Rice, 2017).
Más adelante, Russell Poulter, un genetista de la Universidad de Otago, Nueva Zelanda, cultivó un pequeño lote de plantas del clon comercial estéril. En1990 reportó la producción de semillas de una planta que dio lugar a dos plantas más, las cuales servirían para empezar un programa de cruzamiento que le permitió en 1995 seleccionar y someter a registro la variedad pinot noir a la oficina de registro y protección de variedades vegetales (Plant Variety Rights Protection) de Nueva Zelanda (Poulter y Butler, 2019).
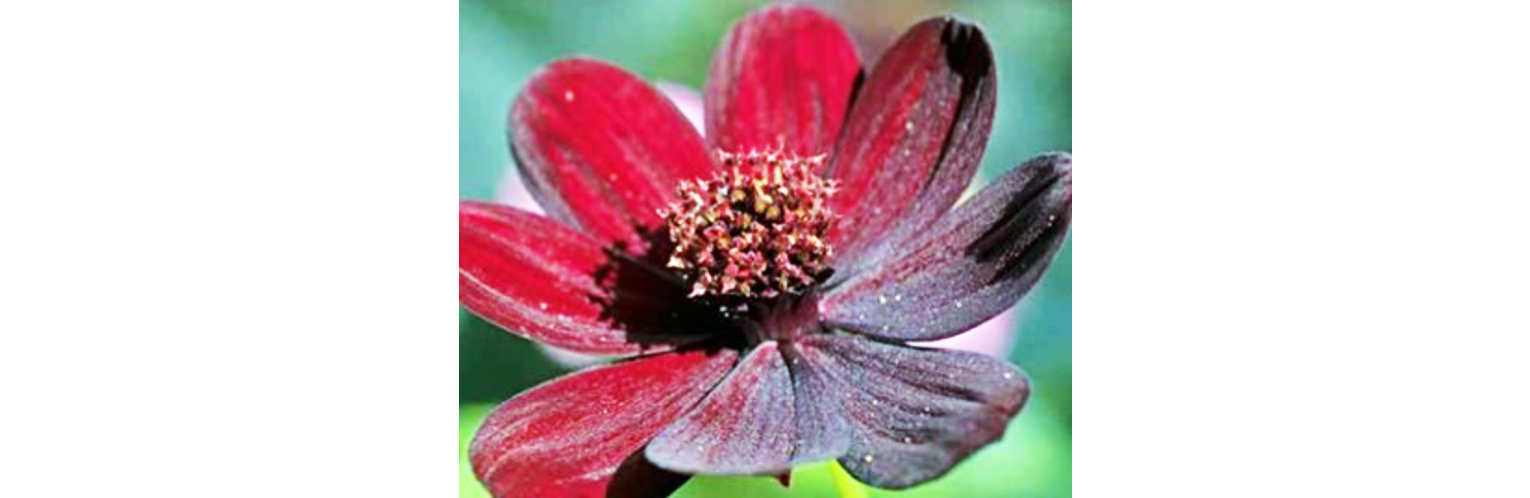
En 2006, Chocamocha fue la siguiente variedad que desarrolló Thompson & Morgan, producto de una hibridación con otra especie desconocida (figura 5). Esta variedad fue ampliamente cultivada y aceptada en Europa y Estados Unidos de América, ya que presentaba características sobresalientes como un hábito mejorado, floración consistente y mantenía la fragancia a chocolate y el color característico de la especie (Amamiya e Iwashina, 2016; Rice, 2017).
Las plantas del genetista Poulter se emplearon como base para Keith Hammett, otro mejorador neozelandés, para desarrollar tres variedades a través de la selección y cruzamiento de individuos con miras en la propagación comercial por cultivo de tejidos en 2008 y que han sido introducidos recientemente al mercado. Tales variedades son Dark Secret (designación en Estados Unidos de América; Coco Chanel, en Nueva Zelanda, seleccionada en 2009 e introducida en 2015) (figura 6), Eclipse (la variedad con el pedúnculo floral más largo, 80 cm, y vigor excepcional, considerada la mejor variedad para flor de corte, fue introducida en 2016) y Spellbound (de las selecciones de Hammett, es la que presenta la fragancia más intensa a chocolate, fue introducida al mercado en 2015). Mystique es la designación comercial de una cuarta selección del mejorador Hammett que aún no ha sido protegida ni liberada (Poulter y Butler, 2019; Rice, 2017).
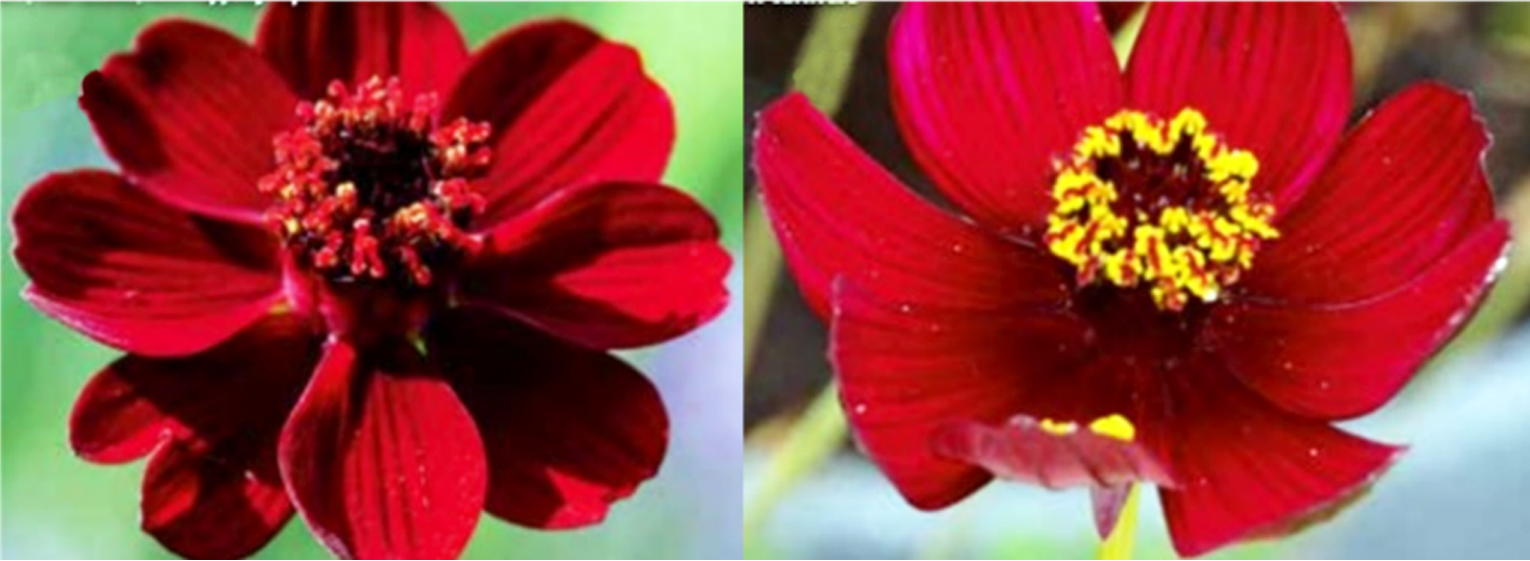
Fuente: Rice (2017). Nota: a) Dark Secret y b) Spellbound.
FIGURA 6 Inflorescencias de C. atrosanguineus
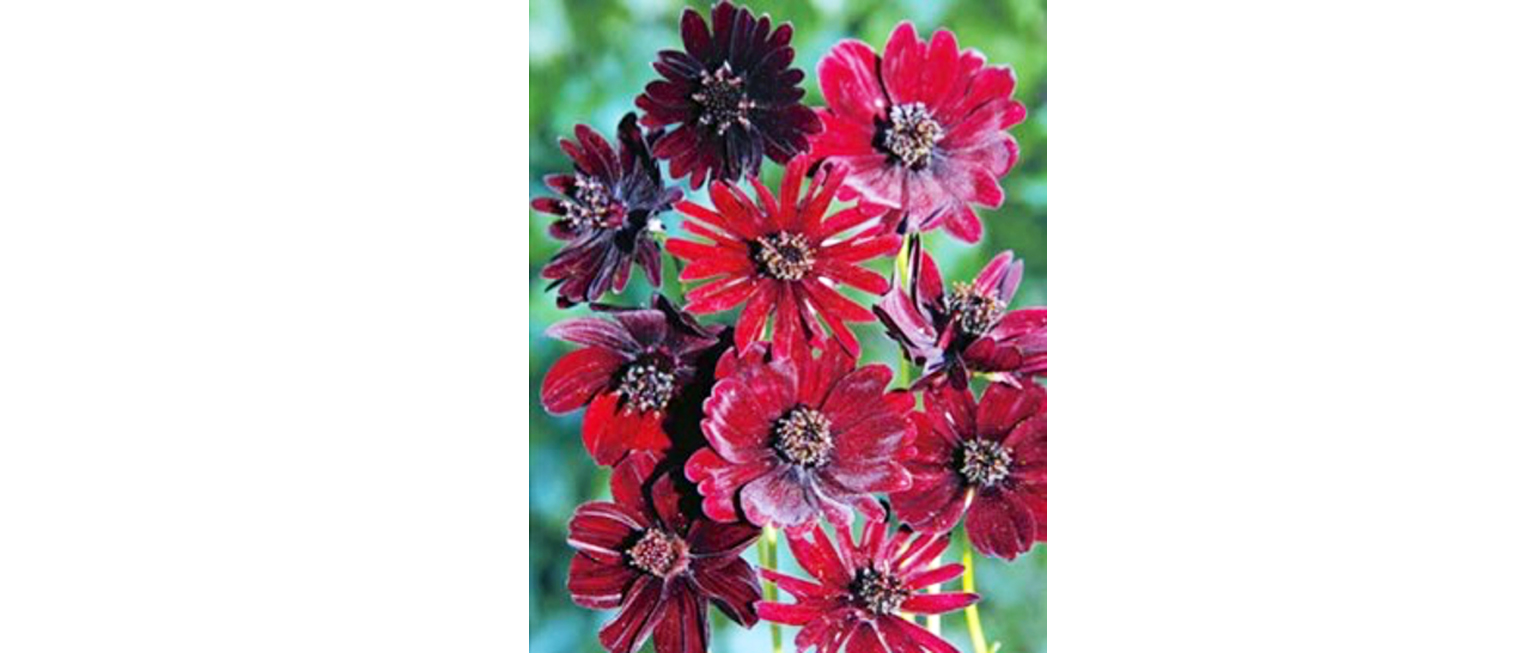
En 2004, Georg Uebelhart, el gerente general de la compañía Jelitto, recibió una cabezuela con semillas fértiles de un jardín privado de Nueva Zelanda (supuestamente no relacionado con pinot noir). Con este material emprendió un programa de cruzas que llevaron a la generación de la variedad Black Magic (figura 7) y a su registro y colocación en el catálogo de la empresa en 2016, mismo año en el que la organización Fleuroselect escogió a Cosmos como la planta del año en el Reino Unido. Las flores de esta gama son variables, es decir, la forma y cantidad de pétalos no es homogénea; sin embargo, se consideró lo suficientemente única para ser registrada (Jelitto, 2016; Rice, 2017).
C. atrosanguineus New Choco es una variedad obtenida a partir de la polinización abierta con flores de cosmos amarillos (C. sulphureus) que hizo Takayoshi Oku en 2003 en Japón, y que posteriormente se liberó en 2008. Para lograrlo, fue necesario el rescate y cultivo de embriones. Entre las características destacables de esta variedad, se encuentra su moderada fragancia a chocolate, flores rojo carmesí (figura 8), presencia de raíces tuberosas como C. atrosanguineus y es relativamente tolerante a la cenicilla como lo es C. sulphureus (Mii, 2012; Oku et al., 2008; Shaw, 2015).
Por su parte, Gómez-Pedraza et al. (2019b) lograron obtener semillas como resultado de la hibridación interespecífica entre C. atrosanguineus y C. purpureus. El individuo de la especie C. atrosanguineus era de un clon cultivado in vitro proveniente del Jardín Botánico de Kew. Los caracteres morfológicos corroboraron el intercambio genético entre las dos especies debido a que el color de la flor y la morfología foliar mostraron características intermedias a los dos progenitores. De igual manera, es muy interesante mencionar que los híbridos presentaron una bifurcación en el pedúnculo floral, característica presente en C. purpureus pero no en C. atrosanguineus.
4. Propiedades nutracéuticas del género cosmos
Se han encontrado en distintas especies del género Cosmos propiedades nutracéuticas y medicinales, dado que es una fuente rica de flavonoides, carbohidratos, fenoles, minerales, proteínas, vitaminas, ácido ascórbico, quercitina, taninos y ácido clorogénico (Bunawan et al., 2014; Cheng et al., 2015). Estos compuestos han mostrado tener actividad antidiabética, antihipertensiva, antiinflamatoria, antimicrobial, antigenotóxica, anticancerígena y antioxidante. En la medicina tradicional se consumen principalmente para curar enfermedades infecciosas ictericia y fiebre; también presentan actividad larvicida, pupicida e insecticida (Jadav y Gowda, 2017; Jang et al., 2008; Modise y Ashafa, 2016).
Por otro lado, Hernández-Pineda et al. (2018) reportan que al suplementar la dieta en vacas lecheras con dosis bajas de materia seca de plantas de Cosmos (0.5 kg de materia seca/vaca/día) se redujo la producción de metano ruminal y no se afectaron los parámetros de producción animal; esta propiedad se atribuye al alto contenido y al tipo de taninos totales que constituyen a las plantas de estas especies. Por su parte, Amamiya e Iwashina (2016) registran el aislamiento de algunas antocininas en flores liguladas de C. atrosanguineus Chocamocha, entre las que se incluyen cianidina (3-O-glucósido, 3-O-rutinósido), cianidina (3-O-malonilglucósido), pelargonidina (3-O-glucósido y 3-O-rutinósido) y flavanonas (apigenina 7-O-glucurónido, crisoeriol 7-O-glucurónido y luteolina 7-O-glucurónido). De forma adicional, estos mismos autores mencionan la presencia de chalcona en cuatro híbridos interespecíficos obtenidos de la cruza con C. sulphureus, pero no Chocamocha.
En la especie C. atrosanguineus y las variedades con flores en tonos más oscuros se ha constatado la mayor concentración de antocianinas totales, aunque como pigmentos menores (las antocianinas pelargonidina 3-O-glucósido y pelargonidina 3-O-rutinósido) que en el cultivar más anaranjado y mínima o nula concentración de chalcona (buteina 4'-O-glucósido). Sin embargo, en la variedad con coloración más anaranjada la concentración de chalcona (buteina 4'-O-glucósido) y flavonas (eriodictyol 7-O-glucósido y eriodictyol 7-O-glucurónido) fue mayor que en las otras variedades; como ya es conocido en la especie C. sulphureus, este último compuesto es el principal pigmento en los pétalos amarillo-naranja de sus flores (Ahmad et al., 2022; Amamiya e Iwashina, 2016). De esta manera, es como la concentración relativa de antocianinas y chalcona determinan el color de las flores debido a que la chalcona se encontró en los híbridos, pero no en el variedad Chocamocha, por lo que se concluye que se deriva de C. sulphureus y que una mayor concentración de antocianinas resultará en flores de colores más oscuros.
5. Métodos de propagación
La propagación de cosmos chocolate se ha hecho principalmente por dos vías: el cultivo in vitro y la separación de las raíces tuberosas. La especie en cuestión presenta una buena respuesta al cultivo in vitro, por lo que diferentes autores han diseñado protocolos para la propagación que va desde la colecta, desinfección y aclimatación ex vitro del material vegetal (Hosoki et al., 2003; Kozak et al., 2016a) Por otro lado, se encuentran los métodos de propagación más tradicionales, ya que la planta desarrolla raíces tuberosas. Asimismo, hay quien recomienda la separación de raíces tuberosas como se hace en dalia para que cada raíz dé lugar a una nueva planta (Hind y Fay, 2003). No obstante, este método es lento y poco eficiente. A continuación, se describe el cultivo de tejidos, que es vía de propagación de Cosmos más desarrollado.
5. 1. Cultivo de tejidos
En 1990 los laboratorios de cultivo in vitro del Royal Botanic Garden, Kew diseñaron un protocolo que contemplaba la multiplicación y el enraizamiento in vitro. Para la multiplicación se utilizó medio Murashige & Skoog (MS) con 0.5 mg l-1 de 6-Bencilaminopurina (BA) y 0.01 mg l-1 de Ácido 1-Naftalenacético (ANA). Sin embargo, Hind y Fay (2003) logran un enraizamiento de plantas en medio Murashige & Skoog, pero sin el uso de reguladores de crecimiento.
Por otra parte, Hosoki et al. (2003) diseñaron el siguiente protocolo: realizaron la desinfección superficial de brotes cosechados con longitud de 1 cm, lavados con agua del grifo, para después desinfestarlas con hipoclorito de sodio al 0.5% y Tween® 20 (Sigma-Aldrich, USA) al 0.1% durante 10 min y enjuagados dos veces con agua estéril. Para la fase de micropropagación, aplicaron una división repetida de brotes axilares y de brotes adventicios en medio Murashige & Skoog , vitaminas, 0.8% de agar y pH 5.6, suplementando con diferentes concentraciones de BA (0, 0.44, 0.88, y 4.4 µM). Los cultivos fueron incubados a 25 °C con fotoperiodo de 16 h provisto por lámparas fluorescentes frías (52 µmol s-1 m-2) de 40 W. Después de cinco subcultivos en medio idéntico a cada concentración de BAP se encontró que la mejor concentración de BAP para obtener brotes sanos, vigorosos y sin vitrificación fue de 0.88 µM que corresponde a 0.2 mg l-1 de BA, con una producción de 3.7 microesquejes en un intervalo de 17 días.
El enraizamiento de esquejes in vitro lo realizaron en medio MS suplementado con 0, 0.49, 0.98 y 4.9 µM de Ácido Indol-3-butírico (AIB), en donde se logró la mayor tasa de enraizamiento (60%) a una concentración de 4.9 µM que corresponde a 1 mg l-1 de AIB (Hosoki et al., 2003).
Por último, la aclimatación de las plantas enraizadas se llevó a cabo en macetas que contenían suelo de textura franco-arenosa y cubriéndolas con plástico para retener la humedad, colocadas en un ambiente a 20 °C para evitar la proliferación de enfermedades; más adelante, se fueron abriendo gradualmente las cubiertas de plástico para reducir la humedad hasta eliminarlas por completo para culminar la fase de aclimatación.
Kozak et al. (2013b) también micropropagaron esquejes con el objetivo de determinar la influencia que tiene el tipo y la orientación en el crecimiento y desarrollo de los explantes in vitro de Cosmos chocolate. La fase de desinfección se completó con una inmersión en agua más hipoclorito de sodio al 0.5% durante 30 minutos y tres enjuagues posteriores con agua estéril. Para la fase de multiplicación, probaron cuatro concentraciones diferentes de BA (0.2, 1.0, 2.5 y 5 mg l-1), donde la mejor tasa de multiplicación se obtuvo con la concentración de 1 mg l-1. Sobre el tipo y orientación del explante, se probaron siete tratamientos: a) brotes apicales con hojas, b) brotes apicales con hojas sin ápice meristemático, c) brotes apicales defoliados, d) brotes apicales defoliados y sin ápice meristemático, e) brotes apicales después de la remoción del meristemo apical y las hojas, f) nudos con hojas y g) nudos defoliados, colocando repeticiones en posición horizontal y vertical. Los resultados del estudio demostraron que la mejor respuesta a ramificación axilar fue en el tratamiento en donde se removió el ápice de brotes apicales no defoliados.
Kozak et al. (2016b) precisaron el efecto que tiene el BA en diferentes concentraciones (0.2, 1.0, 2.5, 5.0 mg l-1) sobre la inducción y el crecimiento de brotes axilares en dos tipos de explantes (brotes apicales y segmentos nodales). Según los resultados, determinaron que la concentración de 1.0-2.5 mg l-1 de BA es la mejor para la proliferación de brotes axilares (6.0 y 5.1 respectivamente) obtenidos de los brotes apicales. En el caso de los brotes axilares logrados de segmentos nodales notaron que la mayor concentración de BA (5.0 mg l-1) tuvo la mejor respuesta con 9.2 brotes axilares por explante. Ambos tipos de tejidos (brotes apicales y segmentos nodales) son aptos para obtener brotes axilares. Sin embargo, a partir de los segmentos nodales se puede conseguir un mayor número de brotes axilares. Sobre el crecimiento de los brotes axilares obtenidos de los segmentos nodales hubo mejor respuesta en el medio sin BA, contrario a los brotes axilares sacados de los brotes apicales donde la concentración de 1.0 mg l-1 de BA produjo los brotes axilares más largos.
El efecto de la calidad de la luz sobre el crecimiento y desarrollo de brotes in vitro de C. atrosanguineus también ha sido evaluado. Kozak et al. (2016a) describieron el efecto de la aplicación de diferentes colores de luz (blanca, azul, amarilla y roja) sobre el crecimiento (longitud y peso fresco) de brotes primarios y en la iniciación y crecimiento de brotes axilares utilizando medio sin reguladores de crecimiento y medio suplementado con 1.0 mg l-1 de BA. Observaron que los brotes primarios más largos ocurrían en el medio sin reguladores de crecimiento y la luz amarilla y azul tenían los efectos positivos más fuertes sobre esta misma variable en presencia de BA (40.8 y 38.9 mm, respectivamente); por otro lado, la luz blanca y roja tuvieron los efectos más negativos sobre el crecimiento del brote primario en especial cuando el medio estaba suplementado con BA. Para la variable de número de brotes axilares por explante no hubo diferencias significativas entre la luz blanca, amarilla y azul en presencia de BA (5.1-5.8), a diferencia de la luz roja que tuvo el efecto más débil (3.1). Por el contrario, el efecto de los diferentes colores de luz en ausencia de BA es casi nulo. Para la variable longitud de brote axilar, la luz amarilla en presencia de BA tuvo el efecto positivo más fuerte (14.9 mm) y de nuevo la luz roja en ausencia de BA fue la más débil (1 mm).
Gómez-Pedraza et al. (2019a) definieron la variación morfogenética en la multiplicación y enraizamiento in vitro de clones silvestres de C. atrosanguineus siguiendo dos rutas diferentes: la organogénesis directa y la organogénesis indirecta (figura 9). En el caso de la organogénesis indirecta, segmentos de hoja se sembraron en medio de cultivo suplementado con diferentes concentraciones de 2,4-D (0, 0.5, 1, 2 mg l-1) y segmentos nodales sin hojas sembrados en medio suplementado con diferentes concentraciones de BA (0.5, 1, 2, 3 mg l-1). Para la organogénesis directa también utilizaron segmentos nodales sin hojas sembrados en medio de cultivo con diferentes concentraciones de BA (0.5, 1, 2, 3 mg l-1). En la etapa de enraizamiento se evaluó el efecto de diferentes tratamientos de sacarosa (0, 3, 6 y 9 %) y fluoroglucinol (0, 25, 50, 75, 100 mg l-1). Tratamientos de fotoperiodo también se evaluaron tanto en la etapa de multiplicación como en la de enraizamiento, con tratamientos de 8, 10, 12, 14 y 16 horas luz (70 µmol m-2 s-1). Para organogénesis indirecta, en los segmentos nodales de los dos clones silvestres evaluados no hubo formación de callo, a diferencia de los segmentos de hoja donde hubo un 50% de formación de callo con 1 mg l-1 de 2,4-D. Para organogénesis directa, la mejor respuesta de crecimiento en longitud del brote fue a 0.5 y 1 mg l-1 de BA, aunque también en tres de los cinco clones silvestres evaluados, en la concentración de 1 mg l-1 de BA se produjo callo, por lo que esto mostró que los genotipos silvestres muestran diferentes respuestas a los fitorreguladores y que dependiendo el objetivo debe desarrollarse un protocolo especial para cada clon silvestre. En la etapa de enraizamiento, el incremento en la concentración de sacarosa (6 y 9 %) aumentó el número de raíces por explante, pero disminuyó la longitud de las raíces, así como la longitud del brote, el tratamiento de 6% de sacarosa resultó en brotes de mejor vigor. El mejor tratamiento de fluoroglucinol fue de 50 mg l-1, en el cual se obtuvo el triple número de raíces por explante (29.6), a diferencia del tratamiento sin fluoroglucinol (11.1 raíces). Los tratamientos de fotoperiodo no mostraron diferencias significativas en la etapa de multiplicación y enraizamiento.
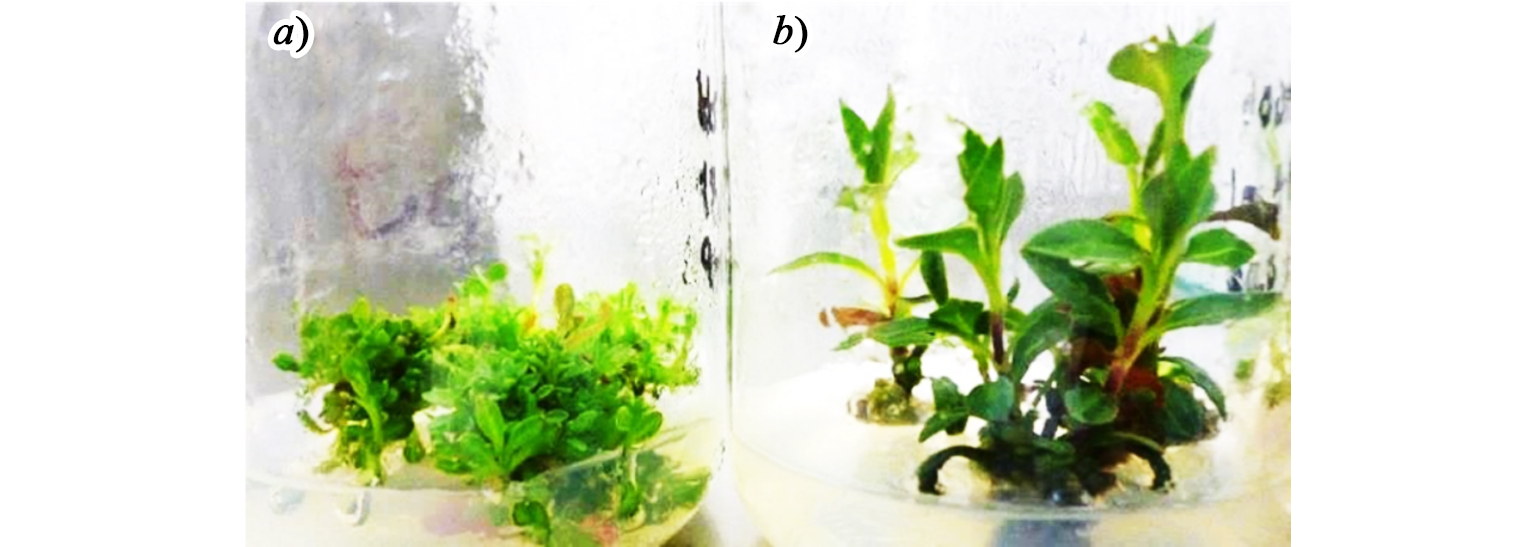
Fuente: fotografía propia tomada en el laboratorio de cultivo de tejidos y células vegetales de la Universidad Autónoma Chapingo. Nota: a) Organogénesis indirecta, b) organogénesis directa in vitro de C. atrosanguineus.
FIGURA 9 Variación morfogenética C. atrosanguineus
Kozak et al. (2013a) evaluaron el efecto de diferentes agentes de solidificación de medio de cultivo (Agar-Agar Sigma, Lab-Agar Biocorp, Bacto-Agar Difco y Gelrite) y medio de doble fase (adición de agua al medio de Agar-Agar a las 4 semanas) en el crecimiento y desarrollo de C. atrosanguineus in vitro. El medio con Gelrite fue el tratamiento que tuvo mejores resultados en el crecimiento y desarrollo tanto de los brotes primarios (30.4 mm de longitud) como del número y crecimiento de los brotes axilares (5.4 brotes axilares de 13.2 mm de longitud). En la comparación del medio con agar y el medio de doble fase hubo mayor crecimiento del brote principal de 27.8 mm con agar a 33 mm de longitud con medio de doble fase y del número de brotes axilares de 4.7 con agar a 7.4 con medio de doble fase. En cuanto al crecimiento de los brotes axilares fue similar; sin embargo, el peso fresco de los explantes en medio de doble fase se duplica. Por otra parte, también se han desarrollado metodologías para la criopreservación de brotes apicales (Wilkinson et al., 2003) y para el rescate in vitro de embriones de cosmos chocolate (Oku et al., 2008).
6. Condiciones ambientales y manejo agronómico
Algunos autores como Hind y Fay (2003) mencionan que la mejor forma de tratar esta especie es exactamente igual a como se trataría a una dalia. En una zona templada es posible dejar las raíces tuberosas en el suelo; sin embargo, para evitar pérdidas por pudrición o algún otro problema es mejor levantarlas del suelo en otoño antes de la primera helada, secarlas y almacenarlas en turba hasta plantarlas de nuevo en primavera.
6. 1. Luz: manejo del fotoperiodo
De C. bipinnatus se ha encontrado que es una planta facultativa de día corto con un fotoperiodo crítico entre 12 y 16 h. Es decir, es de día corto porque crece vegetativamente en días largos y florece cuando el periodo de luz diaria es acortado a menos de 14 h y es facultativa porque florecerá, ya sea en días cortos o largos, pero lo harán más rápido cuando se desarrollan en días cortos (Dole, 2015; Erwin y Warner, 2002; Mukesh y Brij, 2015).
La floración natural en Cosmos ocurre bajo condiciones de día largo relativamente a finales del verano (C. bipinnatus florece en el Valle de México a finales de agosto). El fotoperiodo para la floración óptima en C. bipinnatus es menor a 14 h por día (Halevy, 1985).
C. sulphureus es una planta obligada de día corto, es decir, que florecerán únicamente cuando los días sean más cortos que la noche (Kanellos y Pearson, 2000).
C. atrosanguineus, contrario a C. bipinnatus y C. sulphureus, es una planta facultativa de día largo (Kanellos y Pearson, 2000). Kanellos y Pearson (2000) mencionan al respecto que el fotoperiodo afecta de forma significativa a la floración, ya que las plantas al ser expuestas a fotoperiodo de 17 horas, florecieron a los 124 días, mientras que, con una exposición de solo 8 horas, la floración se presentó a los 157 días, siendo una diferencia de 33 días a floración entre los fotoperiodos corto y largo.
Se ha reportado una tendencia a aumentar la altura de las plantas con fotoperiodo largo, de 11.4 cm en fotoperiodo corto (8 h) a 25 cm en fotoperiodo largo (17 h). Este comportamiento de igual forma fue observado con respecto el peso fresco, el cual aumentó en siete veces en las plantas expuestas a fotoperiodo largo, de 12.4 g (8 h luz) a 95 g (17 h luz) ( Kanellos y Pearson, 2000 ).
6. 2. Efecto de la temperatura sobre los procesos vegetativos y reproductivos
Para incrementar el porcentaje de germinación de Cosmos, se recomienda una temperatura del suelo entre 21 y 24 °C, donde se requieren de siete a catorce días para germinar. A temperaturas superiores a 27 °C o inferiores a 15 °C, la germinación se reduce de forma drástica (Hanse y Drost, 2020).
Kanellos y Pearson (2000), al evaluar el tiempo de emergencia de brotes de C. atrosanguineus a partir de la siembra y exposición de raíces tuberosas a diferentes tratamientos de temperatura, observaron que el tiempo puede ser disminuido mediante el uso de temperaturas altas, ya que las frías lo retrasan; es decir, a 27 °C la emergencia ocurrió a los seis días, mientras que a una temperatura de 11 °C ocurrió a los 23 días, una diferencia de 17 días. Sin embargo, las plantas que se expusieron a temperaturas más altas durante la emergencia disminuyeron su calidad, ya que se aumentó la altura de 10 a 14.1 cm, a 11.5 °C y 27.2 °C, respectivamente.
La temperatura tuvo un pequeño, pero significativo efecto en el tiempo a floración. A los 13 °C las plantas florecieron a los 89 días, mientras que a 21.5 °C florecieron a los 80 días; sin embargo, un incremento en la temperatura superior a los 21.2 °C provoca ligeros retrasos en la floración (Kanellos y Pearson, 2000).
En el caso del tamaño final de la flor se ve un efecto más directo de la temperatura. Las temperaturas altas tuvieron un efecto de disminución en el área floral, a 12.8 °C el área floral fue de 17.4 cm2, mientras que a 25.7 °C el área fue de 8.8 cm2 (Kanellos y Pearson, 2000).
El efecto que tuvo el aumento de la temperatura sobre la altura de la planta en la primera floración fue el efecto más llamativo, puesto que al aumentar la temperatura de 13 °C a 26 °C se duplicó la altura de la planta en floración de 12 cm a 26.5 cm. Sin embargo, las plantas de todos los tratamientos florecieron en el entrenudo 7-8 (Kanellos y Pearson, 2000). Esto indica que hay pocas ventajas en el uso de temperaturas altas. Kanellos y Pearson (2000) consideran que un sistema de producción en dos fases parece ser el más eficiente: durante la primera fase la temperatura debe ser templada, hasta la emergencia de los brotes, partiendo de la siembra de raíces tuberosas, y luego reducida junto con tratamientos de día largo para evitar la posterior pérdida de calidad final de la planta y la disminución del tiempo a floración.
6. 3. Sustratos
Cosmos chocolate se adapta a suelos bien drenados y poco fértiles, de ahí que no se requiere mucha preparación del suelo, es decir, simplemente rastrillar a través de la cama antes de la siembra para aflojar el suelo y eliminar malezas. Por ende, puede proliferar en áreas secas del jardín y la floración se reduce si se riega en exceso, así que, una vez que emergen las plántulas, es necesario reducir el agua a una vez por semana, a profundidad. No se requiere fertilizar Cosmos. Suelos ricos en nutrientes producen plantas de tallo débil, floración tardía y escasa. Es primordial evitar sembrar en suelos con alto contenido de materia orgánica o con antecedentes de poseer nutrientes residuales de una alta fertilización (Hansen y Drost, 2020; Hind y Fay, 2003).
6. 4. Manejo agronómico
En general, el manejo agronómico que se debe dar a las plantas de Cosmos chocolate es el siguiente: plantar a pleno sol en suelos moderadamente fértiles y bien drenados, ya que son intolerantes a los suelos húmedos y arcillosos. Se recomienda aplicar riego de forma regular mientras la planta desarrolla sus raíces y luego ocasionalmente durante los meses de verano. En climas fríos, concluida la floración, es recomendable levantar y almacenar las raíces tuberosas en turba apenas húmeda en un lugar fresco y seco para evitar daños por bajas temperaturas o deshidratación (Hind y Fay, 2003).
Algunas empresas dedicadas a la venta de semillas y plantas como Thompson & Morgan Seed Company (Ipswich, Reino Unido) o Jelitto (Kentucky, Estados Unidos de América), proveen especificaciones para las variedades que ofertan. A continuación, se describen:
a) C. atrosanguineus Chocamocha de Thompson & Morgan: se recomienda como planta de pleno sol. Por lo tanto, es deseable establecer de forma previa a las plantas en macetas en condiciones cálidas y libres de heladas hasta que puedan alcanzar un desarrollo suficiente y puedan soportar su trasplante al aire libre. Al reducir de forma drástica el riesgo de heladas tardías, se sugiere aclimatar a las plantas gradualmente a condiciones exteriores entre siete y diez días previos al trasplante en camas de siembra, bordes o contenedores. Es determinante elegir una posición a pleno sol en cualquier suelo húmedo y bien drenado. Esta variedad es mucho más corta que otros cultivares, por lo que no requiere tutoreo (Thompson y Morgan, 2022a).
b) C. atrosanguineus Dark secret de Thompson & Morgan: se recomienda como planta de sol o semisombra. Es una planta bastante tolerante a la sequía, ya que su cultivo es anual, pero en áreas muy templadas existe la posibilidad de que sea perenne. Se puede pasar el invierno si se cultiva en contenedores y se mantiene en condiciones libres de heladas. El sustrato se debe mantener apenas húmedo durante los meses de invierno (Thompson & Morgan, 2022b).
c) C. atrosanguineus Spellbound de Thompson & Morgan: se recomienda como planta de pleno sol. Plantar entre otras plantas perennes para sostener sus tallos, ya que es alta en comparación con otras variedades (Thompson & Morgan, 2022c).
d) C. atrosanguineus Black Magic de Jelitto es una planta de germinación rápida. Es vital mantener la semilla en humedad constante (sustrato no saturado) con temperaturas de alrededor de 20 °C, así como también mantener a las plántulas en condiciones más frescas después de la germinación (Jelitto, 2022).
6. 5. Plagas y enfermedades
En el Valle de México una de las enfermedades que se presenta con mayor frecuencia en Cosmos chocolate es la cenicilla y ocurre en condiciones de alta temperatura y baja humedad relativa. Al respecto, Enciso-Maldonado et al. (2020) identificaron que el hongo causante de este tipo de cenilla en C. atrosanguineus es Golovinomyces ambrosiae.
Se han observado otros problemas de sanidad, pero el principal es causado por la mosquita negra llamada también fungus nat, moscas esciáridas o mosquito del mantillo (Bradysia spp.), que es la plaga más severa que ataca a Cosmos chocolate. Se desarrolla en espacios húmedos y prospera sobre todo en los invernaderos durante la propagación y la producción de planta joven. Las larvas se alimentan de las raíces y los pelos radicales provocando la muerte de la planta, por lo que representan un mayor peligro que los adultos. Sin embargo, los adultos son capaces de transmitir enfermedades fúngicas como Verticilium, Fusarium y Thielaviopsis. Existen algunas otras plagas que no representan un problema grave para cosmos chocolate, como la mosquita blanca, trips, pulgones, y araña roja.
7. Comercialización
Se trata de una planta muy versátil, puesto que puede ser comercializada como planta para jardín, maceta o para flor de corte. Algunas casas semilleras establecidas en Reino Unido, Estados Unidos de América, Japón y Nueva Zelanda la tienen dentro de sus catálogos de venta plantas y semillas.
C. atrosanguineus Chocamocha de Thompson & Morgan tiene a la venta un set de tres plantas en cepellón por ₤7.99 (≈160 pesos mexicanos por cada planta en cepellón) (Thompson & Morgan, 2022a).
C. atrosanguineus Dark Secret de Thompson & Morgan ofrece una planta en maceta por ₤11.99 (≈270 pesos mexicanos por planta en maceta) (Thompson & Morgan, 2022b).
C. atrosanguineus Spellbound de Thompson & Morgan pone a disposición una planta en maceta por ₤10.99 (≈250 pesos mexicanos por planta en maceta) (Thompson & Morgan, 2022c).
C. atrosanguineus Black Magic de Jelitto propociona 1 g de semillas por €32 (1 g = 110 semillas) (1 g de semillas por aproximadamente 640 pesos mexicanos) (Jelitto, 2022).
Prospectiva
El reconocimiento del potencial florístico de México es el primer elemento que se debe considerar para uso y conservación de los recursos fitogenéticos endémicos y no endémicos. No obstante, la escasa disponibilidad e información básica, las actividades antropogénicas (urbanización, deforestación, ganadería extensiva, minería, entre otros) y el cambio climático constituyen factores de riesgo para la pérdida o en extremos la extinción de la biodiversidad floristica en México, incluyendo a Cosmos chocolate. A diferencia de lo que ocurre con otras especies ornamentales endémicas de nuestro país (dalia, flor de nochebuena, cempasúchil, entre otras), donde han surgido diversos programas de mejoramiento genético y de conservación (publicos y privados). En el caso particular de Cosmos chocolate, las perspectivas no son tan alagadoras y de continuar con esta tendencia se incrementa el riesgo de extinción. Una de las primeras estrategias para cambiar esta situación es el diseño de proyectos de inversión a largo y mediano plazo que impliquen la conservación ex situ e in situ con la participación conjunta tanto de organismos gubernamentales, privados y la población nativa de las regiones donde esta especie se desarolla de forma natural. De forma subsecuente, se debe plantear la posibilidad de participación de las universidades y centros publicos de investigación para el aprovechamiento de la riqueza genetica y mejorar las espectativas de conservación. Así, este manuscrito consituye un paso significativo para la difusión y conocimento de esta notable especie ornamental endémica, pero escasamente valorada en México.
Conclusiones
El género Cosmos se encuentra constituido por 35 especies con gran potencial de ser aprovechadas como plantas ornamentales, incluyendo C. atrosanguineus. A pesar de su condición de endemismo, de Cosmos chocolate, no se encuentran registros de su aprovechamiento, lo que obedece a desconocimiento general y a la preferencia por otras especies con mayores referencias (rosal, gerbera, tulipán, lilis, heliconias, entre otras), o incluso aquellas de importación que son exóticas, como las orquídeas. Tanto es así la condición desfavorable para esta especie en nuestro país que aspectos como el mejoramiento e información de manejo agronómico se han desarrollado en Estados Unidos de América, Reino Unido, Países Bajos y en lugares tan lejanos como Japón y Nueva Zelanda, por lo que en el ámbito nacional es escasa o nula la experiencia y presencia como cultivo comercial.
Por otro lado, Cosmos chocolate no solo muestra potencial como planta ornamental, sino que posee una serie de atributos que aún no han sido explorados, incluyendo sus cualidades nutracéuticas, medicinales e industriales de sus inflorescencias, hojas y raíces tuberosas.

