


 nueva página del texto (beta)
 Español (pdf)
 Artículo en XML
 Referencias del artículo

 Traducción automática
 Enviar artículo por email
 Citado por SciELO
 Similares en
SciELO

 Permalink


Introducción
Las rickettsiosis son un grupo de enfermedades zoonóticas, que son ocasionadas por bacterias intracelulares de la familia Rickettsiaceae, en dicha familia se incluyen los géneros Rickettsia sp., Ehrlichia sp. y Bartonella sp., las cuales pueden causar enfermedades con un cuadro clínico similar y que son transmitidas a través de vectores como garrapatas, piojos o pulgas1.
El género Rickettsia está constituido por diferentes especies de bacterias Gram negativas, aerobias, del phylum proteobacteria, subclase Alpha 1, del orden rickettsiales, con morfología de cocobacilos de 0.3 a 1µm2. Son bacterias intracelulares obligadas que solo pueden vivir en el citoplasma de las células eucariotas que infectan2,3, ya que de ellas logran obtener los metabolitos que por sí misma la bacteria no puede sintetizar4.
Dentro de este género, se encuentra Rickettsia rickettsii, agente causal de la Fiebre Manchada de las Montañas Rocosas (FMMR), una enfermedad de alto impacto en la salud humana y animal4, presentando una letalidad de entre el 30 al 60% en pacientes que no reciben tratamiento en la fase temprana de la enfermedad5 y con un aumento en el número de casos reportados de aproximadamente el 52.4% en áreas endémicas de la enfermedad como México, Brasil, Colombia y Estados Unidos6,7,8,9.
La patogenia de la FMMR se caracteriza por una vasculitis de pequeños vasos debido a la infección directa de las células endoteliales, lo que resulta en varios focos de vasculitis multisistémica4 y según la distribución de las rickettsias se puede producir neumonitis intersticial, miopericarditis, lesiones cutáneas, meningitis linfocitaria, daño hepático, renal, gastrointestinal y la muerte1,10.
En torno a la gravedad de la enfermedad que desarrolla el paciente e incluso la defunción por FMMR, se ha logrado identificar la asociación a diversas cepas en Estados Unidos y Brasil, las cuales difieren en su virulencia y patogenicidad, lo cual se atribuye a la ausencia, presencia o regulación de diversos genes11,12,13. Dada la importancia de conocer estos mecanismos se propone como objetivo describir a través de una revisión de literatura los genes asociados a la virulencia y patogenicidad de dicha bacteria.
Materiales y métodos
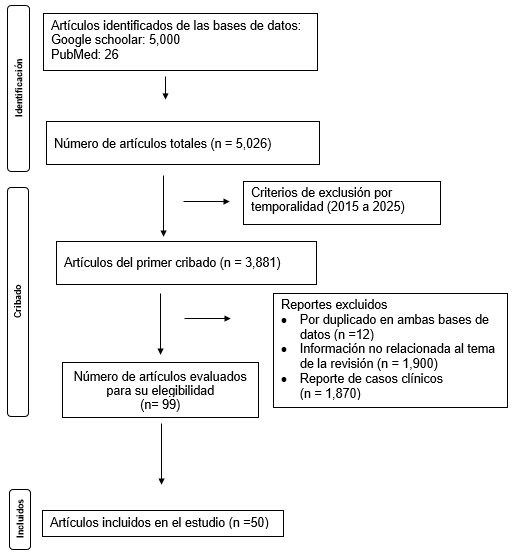
Para la elaboración de la presente revisión sistemática, se siguieron los lineamientos y criterios de la guía PRISMA 2020 para revisiones sistemáticas14. La búsqueda de la información se llevó a cabo en las bases de datos Google académico y PubMed, incluyendo artículos publicados de 2015 a 2025 y se implementaron palabras clave “virulence” o “virulencia”, “pathogenicity” o “patogenicidad”, “genes”, “proteínas de membrana externa”, “outer membrane proteins”, “antígenos de superficie de membrana”, “Surface cell antigen (Sca)” y “Rickettsia rickettsii”, utilizando los operadores booleanos AND y OR.
Como criterios de inclusión se aplicaron que la literatura fuese publicada dentro de las fechas previamente mencionadas, fuesen “open access”, “free full text”, escritos en inglés o español, se incluyeron artículos originales, revisiones sistemáticas y tesis académicas que contuvieran información relacionada a la bacteria R. rickettsii y de los genes a los cuales se asocia la virulencia y patogenicidad, sin importar ubicación geográfica donde fue llevada a cabo la investigación y como criterios de exclusión se aplicó eliminar textos que estuvieran fuera del período establecido, contuvieran información no relacionada a la especie Rickettsia y R. rickettsii y reporte de casos clínicos (Figura 1).
Resultados
De las bases de datos consultadas, se obtuvieron en total 5,026 artículos en la base de datos en Google académico un total de 5000, mientras que en la base de datos de PubMed se encontraron 26 resultados. De todos estos resultados obtenidos se descartaron aquellos artículos repetidos en las dos bases de datos, así como fuera de la temporalidad indicada, por lo cual el resultado de los artículos elegibles fue de 99. Finalmente, se evaluaron completamente y se utilizaron 50 artículos para la síntesis de esta revisión, ya que en dichos artículos se hablaba de investigaciones relacionadas con Rickettsia, R. rickettsii, la FMMR y los genes asociados a virulencia y patogenicidad.
Las rickettsiosis son enfermedades febriles que afectan a cualquier individuo, independientemente de la edad y el estado del sistema inmunológico3. En la FMMR, las células blanco de la bacteria son las células endoteliales, que forman los vasos sanguíneos de los mamíferos. Estas células regulan la permeabilidad vascular e intercambio de solutos, hemostasia, tono vascular, inflamación e incluso la angiogénesis1, por ende, al verse afectadas las células, se presentan signos clínicos como rash maculopapular, debido al daño vascular y la inflamación, que en casos severos puede progresar a necrosis y gangrena de las extremidades, lo cual puede requerir intervención quirúrgica. Sin embargo, las lesiones maculopapulares pueden estar ausente en al menos el 15% de los pacientes afectados15,16.
Se ha reportado que al ser bacterias intracelulares su genoma ha presentado modificaciones tendiendo a reducirse, ya que al obtener diversos nutrientes de la célula huésped, se ha observado la eliminación de diversos genes relacionados a rutas metabolicas17 y al momento pese a que no se tiene una compresión completa respecto a los procesos evolutivos de estas bacterias, los análisis comparativos y de secuenciación del genoma completo sugieren que el aumento de la patogenicidad de las Rickettsias no está asociado con la adquisición de nuevos genes de virulencia, sino a la regulación genética eficiente y reducida en especies virulentas de la misma18,19.
Recientemente el análisis molecular de las bacterias rickettsiales, se enfoca a los genes involucrados en la virulencia y patogenicidad, con el fin de evaluar las diferencias moleculares entre cepas, la interacción del patógeno con el huésped, los cuadros clínicos que generan e incluso el desarrollo de nuevos tratamientos efectivos para el control de dichas enfermedades20.
En R. rickettsii, la infección se inicia por la presencia de proteínas de superficie de membrana y proteínas secretoras que llegan a la célula huésped mediante el Sistema de Secreción Tipo I, IV y V (T1SS, T4SS Y T5SS). Estos mecanismos moleculares permiten a la bacteria modificar la respuesta del sistema inmune, evitar la apoptosis celular, remodelar el citoesqueleto e incluso controlar la epigenética de la célula huésped21,22.
1. Patogenia de las rickettsiosis
La bacteria ingresa al hospedero a través de la saliva infectada de la garrapata. Una vez dentro infecta, directamente las células endoteliales de los pequeños vasos sanguíneos, lo que genera un infiltrado linfohistiocitario perivascular, daño celular y falla multiorgánica23.
En la patogenia, las proteínas de membrana externa (PME) de las bacterias interactúan con las células del huésped, siendo estas cruciales para la adhesión de las bacterias a las células, así como la estimulación y evasión de la respuesta del sistema inmunológico23,24,25. Al verse afectadas las células endoteliales, se da un aumento en la permeabilidad vascular, consecuentemente, esto incrementa la expresión de las prostaglandinas vasoactivas como la ciclooxigenasa 2 (COX-2)24, lo que a su vez incrementa la producción de óxido nítrico, debido a los mediadores de la inflamación a nivel celular. Además, el deterioro y daño a las células endoteliales se agrava por el aumento de la actividad de la fosfolipasa, causado por el daño mecánico a la membrana durante la salida de las bacterias rickettsiales bajo propulsión de actina o peroxidación lipídica de la membrana celular9.
2. Adhesión e invasión de las células huésped
Para que las bacterias puedan entrar en contacto con las células endoteliales del huésped, inicialmente utiliza antígenos de superficie de membrana (Sca). Estas proteínas, que son sintetizadas y exportadas mediante los sistemas de secreción Sec (para proteínas no plegadas) y Tat (para proteínas plegadas), poseen dominios de unión de tipo barril-β que interactúan con receptores específicos en la superficie de la célula hospedera, como la Ku70 citoplasmática, desencadenando el proceso de endocitosis inducida por la bacteria.
Uno de los principales antígenos descritos en R. rickettsii es Sca0 u OmpA (Outer membrane protein A), codificada por el gen rOmpA. Esta proteína de membrana interactúa con receptores de la membrana extracelular, en este caso con el receptor de crecimiento de fibroblastos FGFR y la integrina α2β1, permitiendo la unión e invasión de las células huésped25,29. Por otro lado, Sca4, activa los sitios de adhesión focal asociados a la vinculina, lo que facilita su interacción y adhesión a las células blanco30,31.
Una vez adherida la bacteria la superficie celular, intervienen Sca1, 2 y la proteína activadora del complejo Arp2/3 (RickA), como su nombre lo indica, activa dicho complejo para modificar el citoesqueleto celular y la bacteria logre ingresar a la célula por medio de un fagosoma3,19, mientras tanto Sca5 u OmpB, en conjunto con las adhesinas 1 y 2 (Adr1 y Adr2) fungen como ligandos e interactúan con el receptor la subunidad Ku70, de una proteína quinasa dependiente de ADN en la superficie de la célula huésped, facilitando la invasión celular29,30,31,32. Adicionalmente, la lipasa de rickettsia (RLip) degrada los lípidos de la membrana celular por hidrolisis modificando la bicapa lipídica de la célula, exponiendo la fosfatidilserina, lo cual provoca que la bacteria sea internalizada por una vacuola de endocitosis33.
3. Efectores membranolíticos
Una vez que la bacteria se encuentra dentro de las células, logra acceder al citosol gracias a la fosfolipasa D (Pld), que es codificada por el gen pld, así como otras fosfolipasas 1 y 2 (Pat 1 y 2) y las hemolisinas A y C (tlyA y tlyC), estas actúan como enzimas membranolíticas alterarando las membranas fagosomales mediante su lisis promoviendo el acceso al citosol de la célula huésped34,35,36. Otra de las funciones de RLip es degradar por hidrolisis la vacuola formada, lo que permite a la bacteria escapar y llegar al citosol, adaptarse, obtener nutrientes33 y replicarse tras 8 horas por fisión binaria13.
4. Movimiento intracelular
Dado que R. rickettsii carece de flagelos, su movimiento depende del citoesqueleto de la célula huésped, utilizando la motilidad basada en actina. Este proceso se da por dos vías: 1) a través de RickA que imita la Proteína del Síndrome de Wiskot- Aldrich (WASp), su función es la transducción de señales desde la membrana celular al citoesqueleto de actina y en conjunto con el complejo Arp2/3, regular la polimerización y nucleación de los filamentos de actina cortos y ramificados, mediando la motilidad en las primeras etapas de la infección37,38. La segunda vía por la cual se da la motilidad mediada por actina, 2) vía Sca2 que tiene una función similar a la formina y conduce a la formación de largas y rectas colas de actina, principalmente en la fase tardía de la enfermedad, para que la bacteria pueda invadir células vecinas39,40,41.
5. Invasión de nuevas células
En torno a la invasión de células sanas, Sca 4 se une a la vinculina y compite con α-catenina para inhibir su función, así como las interacciones entre los complejos de unión adherentes y la red de actomiosina en la célula huésped del patógeno y reducir la tensión intercelular para la propagación de una célula a otra42, lo cual le permite a la bacteria el acceso al citosol y evitar el sistema inmunológico humoral11,40,43(Figura 2).
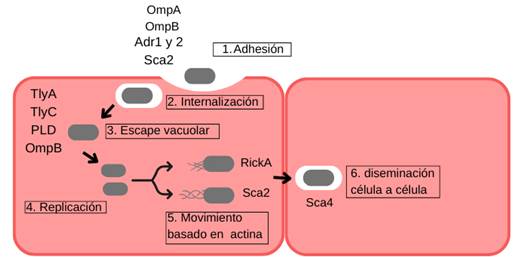
Figura 2 Ciclo de vida intracelular de R. rickettsii en células endoteliales30. Nota: Interacción de la bacteria con las células huésped. Inicialmente, R. rickettsii se adhiere a la membrana celular. Posteriormente, la bacteria escapa del fagosoma para iniciar su replicación intracelular y, finalmente, invade nuevas células huésped para continuar su ciclo infeccioso.
6. Evasión inmune por R. rickettsii
Adr1 y Adr2, no solo están involucradas en la adhesión de la bacteria a la célula, sino también a la resistencia sérica, ya que evaden la muerte de la bacteria asociada al sistema del complemento. Estas adhesinas interactúan con la vitronectina, la cual es una proteína que logra regular dicho sistema, lo cual es crucial para que la bacteria sobreviva en el exterior de la célula previo a que logre invadirla44.
Una vez que la bacteria se encuentra en el citoplasma, la PME Sca5, juega un rol importante relacionado a la evasión de la autofagia por parte de la célula, gracias a la metilación de lisina, ya que bloquea la ubiquitinación de la superficie bacteriana y el reconocimiento por los adaptadores de autofagia del huésped29,30.
En las cepas de R. rickettsii en específico en la cepa Sheila Smith se ha descrito la proteína de repeticiones de anquirina rickettsial 2 (RARP-2), una cisteína proteasa secretada por el T4SS y que fragmenta la red trans-Golgi (TGN), evitando el transporte de lípidos y proteínas hacia la membrana plasmática, además induce la secreción de Interferón Beta y a través de RARP2, es capaz de evadir el sistema inmune del huésped, lo que contribuye a su virulencia45,46,47. La lipoproteína RapL que funge como proteasa autotransportadora en las bacterias del grupo de la FMMR, induce la reducción de la síntesis de interferón Beta favoreciendo la supervivencia y replicación de las bacterias46,48.
Virulencia de R. rickettsii
Evolutivamente las rickettsias han disminuido el tamaño de su genoma en torno a unos millones de pares de bases en promedio, lo cual se asocia a una mayor virulencia de las bacterias23,26.
Se ha reportado que aproximadamente 48 horas post infección, la bacteria logra replicarse aproximadamente entre 30 a 50 veces en el citoplasma, lo cual genera un daño estructural en contraste con las bacterias del grupo de tifus epidémico que logra una replicación de hasta 100 bacterias en aproximadamente en 96 a 120 horas post infección27, por consecuencia, se evidencia que los daños ocasionados por el patógeno ocurren en menor tiempo, acelerando la respuesta inflamatoria y la presencia de los signos clínicos en el paciente afectado (Tabla1).
Tabla 1 Genes asociados a virulencia y patogenicidad en R. rickettsii
| Gen | Proteína | Función |
|---|---|---|
| rOmpA | OmpA | Interacción con la integrina FGFR y la integrina α2β1, para la adhesión e invasión de la célula25,29. |
| rOmpB | OmpB | Interactúa con el receptor la subunidad Ku70 en la superficie de la célula lo que permite la invasión29. |
| Adr1 | Adhesina 1 | Invasión de la célula huésped e interacción con la vitronectina para evadir el sistema del complemento29,32 |
| Adr2 | Adhesina 2 | Invasión de la célula huésped e interacción con la vitronectina para evadir el sistema del complemento29,32 |
| TlyA | Hemolisina A | Lisis de las membranas fagosomales actuando como enzimas membranolíticas dando acceso al citosol de la célula huésped 35 |
| TlyC | Hemolisina C | Lisis de las membranas fagosomales actuando como enzimas membranolíticas dando acceso al citosol de la célula huésped 35 |
| pld | Fosfolipasa D | Lisis de las membranas fagosomales actuando como enzimas membranolíticas dando acceso al citosol de la célula huésped 33 |
| RickA | Proteína activadora del complejo Arp2/3 | Activa el complejo Arp2/3, el cual regula la polimerización y nucleación de filamentos de colas curvas y cortas actina19 |
| Sca2 | Antígeno de superficie de membrana 2 | Permite la formación de colas largas y rectas de actina para que la bacteria pueda invadir células vecinas39,40,41 |
| Sca4 | Antígeno de superficie de membrana 4 | Se une a la vinculina y compite con α-catenina, para invadir nuevas células42 |
| RARP-2 | Proteína de Repetición de Anquirina de Rickettsia 2 | Fragmenta la red TGN y permite la evasión del sistema inmune45,46,47 |
| RapL | Peptidasa autotransportadora | Reduce la síntesis de interferón Beta favoreciendo la supervivencia y replicación de la bacteria46,48 |
| RC1281 | RLip | Degradación de lípidos de la pared celular para su internalización por la endocitosis por una vacuola, que también degrada para llegar al citosol36 |
Fuente: Elaboración propia.
Discusión
Es importante tener en consideración que las bacterias rickettsiales han tenido que adaptarse a diversas condiciones medioambientales, a los vectores artrópodos y huéspedes mamíferos por lo cual han reducido su genoma18,19 este oscila entre 0.8 a 2.5 Mb, lo cual en contraste con otras bacterias se considera reducido y de acuerdo a la literatura va de la mano a un incremento en su virulencia, ya que en la familia de las Ricketsias, R. prowazekii, agente causal del tifo epidémico, bacteria que en contraste con otras rickettsias tiene el genoma más pequeño, por lo cual carece de diversas rutas metabólicas sin embargo posee genes que le permiten codificar toxinas, toxinas antitoxinas y responder ante la respuesta inmune del huésped18.
Al momento pese a que no se tiene una compresión completa y clara respecto a los procesos evolutivos de estas bacterias intracelulares, los análisis comparativos y de secuenciación del genoma completo sugieren que el aumento de la patogenicidad de las Rickettsias no está asociado con la adquisición de nuevos genes de virulencia, sino que se correlaciona con una regulación genética eficiente y reducida en especies virulentas de la misma16.
Recientemente el análisis molecular de las bacterias y sus genes que se ven involucrados en la virulencia y patogenicidad han tomado una gran importancia con el fin de evaluar las diferencias entre cepas y los cuadros clínicos que generan, se han identificado, secuenciado y caracterizado varias cepas de R. rickettsii tales como la cepa Sheila Smith, R, HLP742, Sao Paulo y Iowa, las cuales difieren en virulencia18.
Ellison y colaboradores reportan que la cepa de Iowa, la cual pudiese considerarse como avirulenta en contraste con la cepa Sheila Smith, que tiende a generar un cuadro grave en los pacientes afectados, pudiese estar asociado a que la cepa Iowa carece de la proteína de membrana OmpA y no logra codificar completamente la proteína de membrana OmpB, las cuales se consideran esenciales en la adhesión e invasión de las células del huésped para que se dé la infección de estas49.
Por otra parte Noriea y colaboradores se enfocaron en la modificación isogénica de OmpA de la cepa virulenta de Sheila Smith, comparando la cepa modificada con la original, no encontraron cambios en crecimiento en medio de cultivo, así como en modelos animales en ambos casos se presentó fiebre de alrededor de 40.5°C y además resaltaban que mediante un sistema de intrones del grupo II para la modificación de genes específicos proporciona una nueva herramienta para la evaluación de posibles determinantes de virulencia en la investigación de enfermedades por rickettsias, aunque como se ha observado la mayoría de los estudios se enfoca principalmente a OmpA y OmpB449,50.
Fitzimmons y colaboradores en 2024 reportan que al modificar la cepa Iowa con dos genes asociados a virulencia y descritos en la cepa Sheila Smith, reportaron que en la cepa Iowa modificada, la reconstitución con RARP2, inhibe el aparato trans-Golgi y redujo la secreción de IFN-β pero no se presentó lisis celular, en cambio, RapL suprimió la producción de IFN-β, llevó a cabo lisis de las células huésped y además se logró replicar intracelularmente la bacteria en modelos animales. Otros hallazgos importantes que se reportaron en dicho artículo fue que la replicación bacteriana en Células endoteliales primarias humanas es superior en la cepa Sheila Smith, en contraste con la cepa Iowa la replicación es mínima pasadas las 24 horas y al aplicar un tratamiento con anticuerpos anti-IFNAR2 en cultivos de células endoteliales humanas para el bloqueo de la señalización de IFN-β, se redujo la lisis en células infectadas con la cepa Iowa, pero no observaron cambios a Sheila Smith por lo cual se concluye que esta cepa tiene una mejor evasión del sistema inmune46.
En otro estudio comparan el desarrollo de la infección en modelos animales así como los daños histopatológicos asociados a cepas distintas de R. rickettsii, inoculando dichos modelos animales con la cepa Sheila Smith descrita en Estados Unidos y la comparan con la cepa Taiaçu descrita en Brasil, en donde los resultados indicaron un menor tiempo de supervivencia en los animales inoculados con la cepa Taiaçu y un mayor daño en hígado y bazo en comparación con la otra cepa, resaltando la relevancia en la identificación de los factores a los cuales pueda deberse la virulencia y patogenicidad de R. rickettsii y sus cepas en distintas partes del mundo11.
Conclusiones
Esta revisión sistemática concluye que la virulencia y el modelo de infección de R. rickettsii dependen significativamente de las diferencias genéticas entre sus cepas. La capacidad patogénica de la Rickettsia, incluyendo su habilidad para invadir células y evadir las defensas, este trabajo molecular coordinado de la bacteria desencadena una respuesta fisiopatológica grave y sistémica en el paciente, llevando a complicaciones multiorgánicas y, potencialmente, a la muerte.
Por lo tanto, cualquier modelo de estudio futuro sobre esta bacteria debe tener en cuenta la cepa específica que se utiliza. Esto es crucial para poder desarrollar tratamientos y vacunas más efectivos.

