<?xml version="1.0" encoding="ISO-8859-1"?><article xmlns:mml="http://www.w3.org/1998/Math/MathML" xmlns:xlink="http://www.w3.org/1999/xlink" xmlns:xsi="http://www.w3.org/2001/XMLSchema-instance">
<front>
<journal-meta>
<journal-id>2007-4298</journal-id>
<journal-title><![CDATA[Botanical Sciences]]></journal-title>
<abbrev-journal-title><![CDATA[Bot. sci]]></abbrev-journal-title>
<issn>2007-4298</issn>
<publisher>
<publisher-name><![CDATA[Sociedad Botánica de México A.C.]]></publisher-name>
</publisher>
</journal-meta>
<article-meta>
<article-id>S2007-42982013000300007</article-id>
<title-group>
<article-title xml:lang="es"><![CDATA[Factores abióticos involucrados en la facilitación entre leñosas y suculentas en el altiplano mexicano]]></article-title>
<article-title xml:lang="en"><![CDATA[Abiotic factors involved in the facilitation between woody and succulents]]></article-title>
</title-group>
<contrib-group>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Romo-Campos]]></surname>
<given-names><![CDATA[Rosa]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Flores-Flores]]></surname>
<given-names><![CDATA[José Luis]]></given-names>
</name>
<xref ref-type="aff" rid="A02"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Flores]]></surname>
<given-names><![CDATA[Joel]]></given-names>
</name>
<xref ref-type="aff" rid="A03"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Álvarez-Fuentes]]></surname>
<given-names><![CDATA[Gregorio]]></given-names>
</name>
<xref ref-type="aff" rid="A03"/>
</contrib>
</contrib-group>
<aff id="A01">
<institution><![CDATA[,Universidad de Guadalajara Centro Universitario de Ciencias Biológicas y Agropecuarias Departamento de Ciencias Ambientales]]></institution>
<addr-line><![CDATA[Guadalajara Jalisco]]></addr-line>
<country>México</country>
</aff>
<aff id="A02">
<institution><![CDATA[,Universidad Autónoma de San Luis Potosí Instituto de Investigación de Zonas Desérticas ]]></institution>
<addr-line><![CDATA[San Luis Potosí San Luis Potosí]]></addr-line>
<country>México</country>
</aff>
<aff id="A03">
<institution><![CDATA[,Instituto Potosino de Investigación Científica y Tecnológica División de Ciencias Ambientales ]]></institution>
<addr-line><![CDATA[San Luis Potosí San Luis Potosí]]></addr-line>
<country>México</country>
</aff>
<pub-date pub-type="pub">
<day>00</day>
<month>00</month>
<year>2013</year>
</pub-date>
<pub-date pub-type="epub">
<day>00</day>
<month>00</month>
<year>2013</year>
</pub-date>
<volume>91</volume>
<numero>3</numero>
<fpage>319</fpage>
<lpage>333</lpage>
<copyright-statement/>
<copyright-year/>
<self-uri xlink:href="http://www.scielo.org.mx/scielo.php?script=sci_arttext&amp;pid=S2007-42982013000300007&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://www.scielo.org.mx/scielo.php?script=sci_abstract&amp;pid=S2007-42982013000300007&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://www.scielo.org.mx/scielo.php?script=sci_pdf&amp;pid=S2007-42982013000300007&amp;lng=en&amp;nrm=iso"></self-uri><abstract abstract-type="short" xml:lang="es"><p><![CDATA[Se estudiaron características fisiológicas y morfológicas de plántulas de especies leñosas (nodrizas) y suculentas (protegidas), las cuales se distribuyen en un gradiente ambiental en el Altiplano Mexicano. Del extremo mésico se eligieron Acacia schaffneri, A. farnesiana y Opuntia jaliscana y, del extremo xérico se escogieron A. schaffneri, Prosopis laevigata y O. streptacantha. En un experimento en invernadero, plántulas de 24 semanas de edad fueron sometidas por 90 días a diferentes niveles de radiación (alta = 2133 &#956;mol m-2d-1, baja = 166 &#956;mol m-2d-1), humedad aprovechable (alta = 60%, baja = 30%) y fertilidad (alta = suelo debajo de dosel, baja = suelo de área abierta). Las variables de respuesta evaluadas fueron la tasa relativa de crecimiento y sus componentes: morfológico (el cociente del área fotosintética) y fisiológico (la tasa de asimilación neta); así como la eficiencia cuántica del fotosistema II (&#934;PSII) y la tasa de transporte de electrones. Las plántulas de suculentas presentaron mayor tasa relativa de crecimiento y cociente del área fotosintética que las plántulas de leñosas. La mayoría de las especies crecieron más en radiación y humedad altas. El suelo debajo de dosel favoreció el crecimiento de las suculentas, pero las leñosas presentaron los valores de la tasa de asimilación neta más altos. Los resultados sugieren que las plántulas de suculentas tienen mejor desempeño ecofisiológico para establecerse debajo del dosel de plantas nodrizas, y que las de leñosas presentan características ecofisiológicas de especies nodrizas mejor adaptadas a espacios abiertos.]]></p></abstract>
<abstract abstract-type="short" xml:lang="en"><p><![CDATA[We studied physiological and morphological characteristics of woody seedlings (nurses) and succulents (protected) which are distributed in an environmental gradient in the Mexican Plateau. Species from the mesic extreme of the gradient (Acacia schaffneri, A. farnesiana, Opuntia jaliscana) and from the xeric extreme (A. schaffneri, Prosopis laevigata, O. streptacantha) were chosen. 24-week-old seedlings were subjected for 90 days to varying levels of radiation (high = 2133 mol m-2 d-1, low = 166 mol m-2 d-1), available moisture (high = 60%, low = 30%) and fertility (high = canopy soil, low = open area). We assessed relative growth rate and its components: morphological (leaf area ratio) and physiological (net assimilation rate), as well as the quantum efficiency of photosystem II (&#934;PSII), and the electron transport rate. Succulent seedlings had higher relative growth rate and leaf area ratio than woody ones. Most of the evaluated species grew more under high radiation and high humidity conditions. The canopy soil favored the growth of succulent species, but woody seedlings had the highest net assimilation rate. The results suggest that succulent seedlings showed ecophysiological functioning of protected species, best adapted to establish under the canopy of nurse plants. Woody species showed ecophysiological characteristics of nurses better adapted to open areas.]]></p></abstract>
<kwd-group>
<kwd lng="es"><![CDATA[cociente del área fotosintética]]></kwd>
<kwd lng="es"><![CDATA[eficiencia fotosintética]]></kwd>
<kwd lng="es"><![CDATA[facilitación]]></kwd>
<kwd lng="es"><![CDATA[tasa de asimilación neta]]></kwd>
<kwd lng="es"><![CDATA[tasa de transporte de electrones]]></kwd>
<kwd lng="es"><![CDATA[tasa relativa de crecimiento]]></kwd>
<kwd lng="en"><![CDATA[Electron transport rate]]></kwd>
<kwd lng="en"><![CDATA[facilitation]]></kwd>
<kwd lng="en"><![CDATA[net assimilation rate]]></kwd>
<kwd lng="en"><![CDATA[photosynthetic area ratio]]></kwd>
<kwd lng="en"><![CDATA[quantum efficiency]]></kwd>
<kwd lng="en"><![CDATA[relative growth rate]]></kwd>
</kwd-group>
</article-meta>
</front><body><![CDATA[  	    <p align="justify"><font face="verdana" size="4">Ecolog&iacute;a</font></p>  	    <p align="center"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="center"><font face="verdana" size="4"><b>Factores abi&oacute;ticos involucrados en la facilitaci&oacute;n entre le&ntilde;osas y suculentas en el altiplano mexicano</b></font></p>  	    <p align="center"><font face="verdana" size="2">&nbsp;</font></p>              <p align="center"><font face="verdana" size="3"><b>Abiotic factors involved in the facilitation between woody and succulents</b></font></p>              <p align="center"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="center"><font face="verdana" size="2"><b>Rosa Romo&#45;Campos<sup>1</sup>, Jos&eacute; Luis Flores&#45;Flores<sup>2</sup>, Joel Flores<sup>3</sup> y Gregorio &Aacute;lvarez&#45;Fuentes<sup>3</sup></b></font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><i><sup>1</sup> Departamento de Ciencias Ambientales, Centro Universitario de Ciencias Biol&oacute;gicas y Agropecuarias, Universidad de Guadalajara, Guadalajara, Jalisco, M&eacute;xico.</i></font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2"><i><sup>2</sup> Instituto de Investigaci&oacute;n de Zonas Des&eacute;rticas, Universidad Aut&oacute;noma de San Luis Potos&iacute;, San Luis Potos&iacute;, San Luis Potos&iacute;, M&eacute;xico.</i></font></p>  	    <p align="justify"><font face="verdana" size="2"><i><sup>3</sup> Instituto Potosino de Investigaci&oacute;n Cient&iacute;fica y Tecnol&oacute;gica, Divisi&oacute;n de Ciencias Ambientales, San Luis Potos&iacute;, San Luis Potos&iacute;, M&eacute;xico.</i></font></p>  	    <p align="justify"><font face="verdana" size="2"><i><sup>1</sup>Autor para la correspondencia: </i><a href="mailto:rlrc.cucba@gmail.com">rlrc.cucba@gmail.com</a>.</font></p>          <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2">Recibido: 8 de octubre de 2012    <br> 	Aceptado: 29 de noviembre de 2012</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Resumen</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Se estudiaron caracter&iacute;sticas fisiol&oacute;gicas y morfol&oacute;gicas de pl&aacute;ntulas de especies le&ntilde;osas (nodrizas) y suculentas (protegidas), las cuales se distribuyen en un gradiente ambiental en el Altiplano Mexicano. Del extremo m&eacute;sico se eligieron <i>Acacia schaffneri, A. farnesiana</i> y <i>Opuntia jaliscana</i> y, del extremo x&eacute;rico se escogieron <i>A. schaffneri, Prosopis laevigata</i> y <i>O. streptacantha.</i> En un experimento en invernadero, pl&aacute;ntulas de 24 semanas de edad fueron sometidas por 90 d&iacute;as a diferentes niveles de radiaci&oacute;n (alta = 2133 <i>&#956;</i>mol m<sup>&#45;2</sup>d<sup>&#45;1</sup>, baja = 166 <i>&#956;</i>mol m<sup>&#45;2</sup>d<sup>&#45;1</sup>), humedad aprovechable (alta = 60%, baja = 30%) y fertilidad (alta = suelo debajo de dosel, baja = suelo de &aacute;rea abierta). Las variables de respuesta evaluadas fueron la tasa relativa de crecimiento y sus componentes: morfol&oacute;gico (el cociente del &aacute;rea fotosint&eacute;tica) y fisiol&oacute;gico (la tasa de asimilaci&oacute;n neta); as&iacute; como la eficiencia cu&aacute;ntica del fotosistema II (&#934;<sub>PSII</sub>) y la tasa de transporte de electrones. Las pl&aacute;ntulas de suculentas presentaron mayor tasa relativa de crecimiento y cociente del &aacute;rea fotosint&eacute;tica que las pl&aacute;ntulas de le&ntilde;osas. La mayor&iacute;a de las especies crecieron m&aacute;s en radiaci&oacute;n y humedad altas. El suelo debajo de dosel favoreci&oacute; el crecimiento de las suculentas, pero las le&ntilde;osas presentaron los valores de la tasa de asimilaci&oacute;n neta m&aacute;s altos. Los resultados sugieren que las pl&aacute;ntulas de suculentas tienen mejor desempe&ntilde;o ecofisiol&oacute;gico para establecerse debajo del dosel de plantas nodrizas, y que las de le&ntilde;osas presentan caracter&iacute;sticas ecofisiol&oacute;gicas de especies nodrizas mejor adaptadas a espacios abiertos.</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Palabras clave:</b> cociente del &aacute;rea fotosint&eacute;tica, eficiencia fotosint&eacute;tica, facilitaci&oacute;n, tasa de asimilaci&oacute;n neta, tasa de transporte de electrones, tasa relativa de crecimiento.</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Abstract</b></font></p>  	    <p align="justify"><font face="verdana" size="2">We studied physiological and morphological characteristics of woody seedlings (nurses) and succulents (protected) which are distributed in an environmental gradient in the Mexican Plateau. Species from the mesic extreme of the gradient <i>(Acacia schaffneri, A. farnesiana, Opuntia jaliscana)</i> and from the xeric extreme (A. <i>schaffneri, Prosopis laevigata, O. streptacantha)</i> were chosen. 24&#45;week&#45;old seedlings were subjected for 90 days to varying levels of radiation (high = 2133 mol m<sup>&#45;2</sup> d<sup>&#45;1</sup>, low = 166 mol m<sup>&#45;2</sup> d<sup>&#45;1</sup>), available moisture (high = 60%, low = 30%) and fertility (high = canopy soil, low = open area). We assessed relative growth rate and its components: morphological (leaf area ratio) and physiological (net assimilation rate), as well as the quantum efficiency of photosystem II (&#934;<sub>PSII</sub>), and the electron transport rate. Succulent seedlings had higher relative growth rate and leaf area ratio than woody ones. Most of the evaluated species grew more under high radiation and high humidity conditions. The canopy soil favored the growth of succulent species, but woody seedlings had the highest net assimilation rate. The results suggest that succulent seedlings showed ecophysiological functioning of protected species, best adapted to establish under the canopy of nurse plants. Woody species showed ecophysiological characteristics of nurses better adapted to open areas.</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Keywords:</b> Electron transport rate, facilitation, net assimilation rate, photosynthetic area ratio, quantum efficiency, relative growth rate.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2">A la influencia positiva de plantas adultas de una especie sobre la germinaci&oacute;n, supervivencia y/o crecimiento de pl&aacute;ntulas de otra especie se le conoce como "s&iacute;ndrome de planta nodriza" (Niering <i>et al.,</i> 1963; Callaway, 1995) o interacciones "nodriza&#45;protegida" (Cody, 1993). Este s&iacute;ndrome es muy importante en h&aacute;bitats &aacute;ridos y semi&aacute;ridos (Franco y Nobel, 1989; Valiente&#45;Banuet y Ezcurra, 1991; Flores y Jurado, 2003), donde es m&aacute;s frecuente que las pl&aacute;ntulas de suculentas se establezcan debajo del dosel de plantas adultas de le&ntilde;osas, a diferencia de las &aacute;reas abiertas (Valiente&#45;Banuet <i>et al.,</i> 1991; Flores&#45;Mart&iacute;nez <i>et al.,</i> 1994; God&iacute;nez&#45;&Aacute;lvarez <i>et al.,</i> 2003; Flores y Jurado, 2003; Mart&iacute;nez&#45;Berdeja y Valverde, 2008; Miquelajauregui y Valverde, 2010).</font></p>  	    <p align="justify"><font face="verdana" size="2">La sombra del dosel de las nodrizas protege a las pl&aacute;ntulas contra la radiaci&oacute;n extrema y por lo tanto, de una posible fotoinhibici&oacute;n (Nobel, 1980; Valiente&#45;Banuet y Ezcurra, 1991; Cavender&#45;Bares y Bazzaz, 2004). Adem&aacute;s, al amortiguar la variaci&oacute;n t&eacute;rmica, las pl&aacute;ntulas transpiran menos y se disminuye la p&eacute;rdida de humedad en el suelo (Domingo et al., 1999). El suelo bajo el dosel generalmente tiene mayor fertilidad debido a la acumulaci&oacute;n de la hojarasca y materia org&aacute;nica (Garc&iacute;a&#45;Moya y McKell 1970; Tirado y Pugnaire, 2003), lo que promueve el crecimiento de las pl&aacute;ntulas (Miquelajauregui y Valverde, 2010).</font></p>  	    <p align="justify"><font face="verdana" size="2">Existen comunidades en las que todas las especies requieren de facilitaci&oacute;n y, por lo tanto, ninguna es capaz de establecerse por s&iacute; misma, como en las Tetecheras de <i>Neobuxbaumia mezcalensis</i> del Valle de Tehuac&aacute;n&#45;Cuicatl&aacute;n; sin embargo, en dos comunidades del mismo valle (Tetecheras de <i>Neobuxbaumia tetetzo</i> y Cardonales de <i>Cephalocereus columna&#45;trajani),</i> la especie arbustiva <i>Mimosa luisana</i> se establece en espacios abiertos y al crecer, funciona como planta nodriza (Valiente&#45;Banuet y Verd&uacute;, 2007). Otras especies nodrizas capaces de establecerse en espacios abiertos son <i>Ambrosia dummosa</i> en el Desierto Sonorense (McAuliffe, 1988), <i>Prosopis glandulosa</i> en matorrales del sur de Texas (Brown y Archer, 1987; Bush y Van Auken, 1987; Barnes y Archer, 1999) y <i>P. laevigata</i> en el Desierto Chihuahuense, donde la ganader&iacute;a extensiva crea claros en los pastizales permitiendo su entrada a la comunidad vegetal (Flores y Yeaton, 2000). Las diferencias en el crecimiento entre grupos de especies son debidas a cambios temporales en los factores ambientales a las que est&aacute;n adaptadas, y pueden indicar la capacidad de adaptaci&oacute;n a su nicho de regeneraci&oacute;n. Por ejemplo, las nodrizas maximizan el uso de nutrimentos y agua en sitios expuestos, y las protegidas en micrositios debajo del dosel de le&ntilde;osas adultas, donde la sombra aumenta su supervivencia y crecimiento (Gon&ccedil;alvez <i>et al.,</i> 2005).</font></p>  	    <p align="justify"><font face="verdana" size="2">Muchas variables ambientales entre sitios expuestos y protegidos son diferentes, por lo que se esperar&iacute;a que nodrizas y protegidas tuvieran diferencias en sus requerimientos de luz, humedad y fertilidad (Lambers <i>et al.,</i> 1998; Butterfield y Briggs, 2011). Estas variaciones se reflejan en su tasa relativa de crecimiento, que es clave para conocer la funci&oacute;n ecol&oacute;gica de las especies (Grime y Hunt, 1975; Poorter y Garnier, 1999). Dichas diferencias est&aacute;n en funci&oacute;n de caracter&iacute;sticas fisiol&oacute;gicas, morfol&oacute;gicas y gen&eacute;ticas (Poorter y Garnier, 1999). Por ejemplo, las especies tolerantes a altas radiaciones (las nodrizas), generalmente presentan alta tasa relativa de crecimiento, as&iacute; como tasa de asimilaci&oacute;n neta y cociente ra&iacute;z/v&aacute;stago altos, debido a que el factor dominante en su crecimiento es la luz (Poorter y Van der Werf, 1998). En cambio, las tolerantes a la sombra <i>(e.g.</i> las protegidas) tienen crecimiento bajo (Grime, 1977; Lambers y Poorter, 1992), cociente del &aacute;rea foliar alto y cociente ra&iacute;z/v&aacute;stago bajo (Poorter, 1999), debido a que el factor dominante para su crecimiento es la sombra.</font></p>  	    <p align="justify"><font face="verdana" size="2">Adicionalmente, la fluorescencia de la clorofila es una herramienta que puede ser utilizada para analizar el estr&eacute;s en plantas bajo diferentes ambientes (Cavender&#45;Bares y Bazzaz, 2004), como los que est&aacute;n presentes para las pl&aacute;ntulas de nodrizas y de protegidas. Por ejemplo, la radiaci&oacute;n alta puede afectar las reacciones fotoqu&iacute;micas de la fotos&iacute;ntesis en las especies que crecen en las &aacute;reas abiertas, lo que disminuye su eficiencia fotosint&eacute;tica potencial y actual (Osmond, 1994). Sin embargo, la tasa de transporte de electrones aumenta (Cavender&#45;Bares y Bazzaz, 2004).</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">Para las especies que participan en las interacciones de facilitaci&oacute;n es muy importante el efecto simult&aacute;neo de la luz, humedad y nutrimentos sobre el crecimiento de nodrizas y protegidas (Mart&iacute;nez&#45;Berdeja y Valverde, 2008). Sin embargo; no se ha investigado como influyen los factores abi&oacute;ticos en la respuesta fisiol&oacute;gica de especies nodrizas y protegidas en etapa de pl&aacute;ntulas. El prop&oacute;sito de este trabajo fue evaluar la respuesta ecofisiol&oacute;gica de pl&aacute;ntulas de tres especies de le&ntilde;osas y dos suculentas a condiciones contrastantes relacionadas con el microambiente de protecci&oacute;n o fuera de &eacute;ste. La hip&oacute;tesis es que las le&ntilde;osas (nodrizas) tienen respuestas fisiol&oacute;gicas y morfol&oacute;gicas de especies adaptadas a espacios abiertos (radiaci&oacute;n alta, humedad y fertilidad bajas); y las suculentas (protegidas), al contario de las anteriores, presentan adaptaciones a micrositios con sombra. Son pocas las publicaciones que comparan interacciones entre especies de ecosistemas &aacute;ridos y m&eacute;sicos, por lo que este trabajo puede proporcionar conocimientos en torno a los cambios en la estructura y din&aacute;mica de las comunidades vegetales que se distribuyen a trav&eacute;s de gradientes de productividad y precipitaci&oacute;n (Butterfield y Briggs, 2011).</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Materiales y m&eacute;todos</b></font></p>  	    <p align="justify"><font face="verdana" size="2"><i>Sitios de colecta de semillas.</i> La regi&oacute;n se localiza en el centro&#45;occidente de M&eacute;xico. La vegetaci&oacute;n dominante es el matorral xer&oacute;filo con plantas arbustivas y suculentas llamadas localmente "nopaleras" (Miranda y Hern&aacute;ndez, 1963), t&iacute;picas de zonas &aacute;ridas y semi&aacute;ridas (Rzedowski, 1966; INEGI, 2002). Las semillas de las especies estudiadas (le&ntilde;osas y suculentas), se recolectaron de dos sitios en los extremos de un gradiente ambiental en el centro&#45;occidente de M&eacute;xico. En el extremo seco, al noreste del gradiente, est&aacute; el rancho Santiago, en Villa de Arriaga, San Luis Potos&iacute; (21&deg; 55' 25.67" N; 101&deg; 13' 53.98" O y 2,363 m s.n.m.). El material geol&oacute;gico son rocas &iacute;gneas extrusivas y terrenos planos alternados con lomer&iacute;os suaves, con pendientes entre 5 y 10%. El suelo predominante es el xerosol, de color claro y pobre en materia org&aacute;nica. La precipitaci&oacute;n pluvial promedio anual es de 375.5 mm. El clima es semiseco templado BS1kw(e), con lluvias en verano y con oscilaci&oacute;n t&eacute;rmica extrema (1.8 &deg;C m&iacute;nima y 29.3 &deg;C m&aacute;xima), la temperatura media anual es de 12.5 &deg;C. La temporada de lluvias ocurre entre los meses de julio a octubre (INEGI, 2002).</font></p>  	    <p align="justify"><font face="verdana" size="2">El extremo con mayor humedad, al suroeste del gradiente, es el rancho Los Vallejo en Jalostotitl&aacute;n, Jalisco (21&deg; 10' 48.57" N; 102&deg; 28' 38.30" O, a 1,772 m s.n.m.). Su sustrato son rocas sedimentarias, con lomer&iacute;os de pendientes entre 10 y 25%. Sus suelos son predominantes del tipo feozem h&aacute;plico, oscuros y ricos en materia org&aacute;nica, poco profundos y muy rocosos. La precipitaci&oacute;n pluvial promedio anual es de 703 mm y la temperatura media anual de 17.9 &deg;C, con m&aacute;xima y m&iacute;nima de 37.4 &deg;C y &#45;2.5 &deg;C, respectivamente. El clima es c&aacute;lido&#45;subh&uacute;medo Ca(w0)(w)(e), con lluvias en verano y con oscilaci&oacute;n t&eacute;rmica extrema, la precipitaci&oacute;n invernal es menor al 5% de la total (INEGI, 1981).</font></p>  	    <p align="justify"><font face="verdana" size="2"><i>Especies seleccionadas.</i> En cada sitio se eligieron dos especies le&ntilde;osas y una suculenta. En el sitio x&eacute;rico (Villa de Arriaga, San Luis Potos&iacute;), las le&ntilde;osas fueron <i>Acacia schaffneri</i> (S.Wats.) F.J.Herm., <i>Prosopis laevigata</i> Humb. &amp; Bonpl. ex Willd, y la suculenta <i>Opuntia streptacantha</i> Le&#45;maire. En el sitio m&eacute;sico (Jalostotitl&aacute;n, Jalisco), fueron <i>A. farnesiana</i> (L.) Willd., <i>A. schaffneri</i> y <i>O. jaliscana</i> Bravo. En este trabajo, las le&ntilde;osas ser&aacute;n nombradas como nodrizas y las suculentas como protegidas.</font></p>  	    <p align="justify"><font face="verdana" size="2"><i>Crecimiento de las pl&aacute;ntulas en invernadero</i>. Se colectaron semillas de diez individuos adultos por especie y sitio en agosto de 2007. Despu&eacute;s de remover la pulpa de los frutos, las semillas fueron guardadas en bolsas de papel estraza, a temperatura ambiente y en condiciones de oscuridad por seis meses. En abril de 2008 las semillas fueron escarificadas para romper la latencia (Reyes&#45;Ag&uuml;ero <i>et al.,</i> 2005; Silveria y Fernandes, 2006). Doscientas semillas de cada especie fueron sembradas en macetas con suelo natural esterilizado t&eacute;rmicamente a 105 &deg;C, mezclado con <i>peat moss</i> (1:1). Las semillas germinaron a los nueve d&iacute;as despu&eacute;s de la siembra. A los 45 d&iacute;as se seleccionaron 75 pl&aacute;ntulas por especie y fueron trasplantadas a bolsas de pl&aacute;stico de 35 &times; 15 &times; 20 cm (una pl&aacute;ntula por bolsa). Cada bolsa se llen&oacute; con 4 kg de suelo procedente de los micrositios (abierto y bajo el dosel de <i>Acacia schaffneri,</i> como niveles de fertilidad) procedente de cada &aacute;rea.</font></p>  	    <p align="justify"><font face="verdana" size="2">Se utiliz&oacute; el dise&ntilde;o de tratamientos factorial 2 &times; 2 &times; 2 &times; 6 con los siguientes factores y niveles: luz (alta y baja, con sombra inducida mediante una malla al 75%); humedad aprovechable (baja y alta, 30 y 60%, respectivamente); fertilidad del suelo (baja y alta: suelo abierto y suelo de dosel, respectivamente; de Jalostotitl&aacute;n (m&eacute;sico) y de Villa de Arriaga (x&eacute;rico); y las especies <i>Acacia schaffneri</i> del sitio m&eacute;sico, <i>A. schaffneri</i> del sitio x&eacute;rico, <i>A. farnesiana, Proso&#45;pis laevigata, Opuntia jaliscana</i> y <i>O. streptacantha</i> (se tienen seis niveles debido a dos procedencias de <i>A. schaffneri).</i></font></p>          <p align="justify"><font face="verdana" size="2">El dise&ntilde;o experimental para fines operativos fue de parcelas subdivididas en bloques al azar con tres repeticiones. La parcela grande correspondi&oacute; a los niveles de luz y la parcela chica a los niveles de humedad. La fertilidad y las especies se asignaron al azar dentro de las parcelas chicas. Los niveles de humedad se calcularon a partir de la capacidad de campo y del punto de marchitez permanente de cada suelo por micrositio para obtener la humedad aprovechable. Para el seguimiento y control de los niveles de humedad se utiliz&oacute; el m&eacute;todo gravim&eacute;trico y un dispositivo reflectrom&eacute;trico (TDR, Campbell, modelo Hydrosense). El nivel alto de radiaci&oacute;n correspondi&oacute; a exposici&oacute;n total al sol y el bajo a una reducci&oacute;n del 75% con malla pl&aacute;stica. En el tratamiento de exposici&oacute;n a luz alta, el promedio del PAR a las 9:00 a.m. fue de 1200 <i>&#956;</i>mol m<sup>&#45;2</sup> s<sup>&#45;1</sup>, y en el tratamiento de luz baja fue de 230 <i>&#956;</i>mol m<sup>&#45;2</sup> s<sup>&#45;1</sup>.</font></p>  	    <p align="justify"><font face="verdana" size="2"><i>Variables de respuesta.</i> La tasa relativa de crecimiento (TRC) se evalu&oacute; mediante dos cosechas (30 y 90 d&iacute;as) (Lambers y Poorter, 1992). El peso fresco de las pl&aacute;ntulas en la primera cosecha se us&oacute; para corregir los pesos de las macetas y controlar los niveles de humedad entre la primera y la segunda cosecha. Tres pl&aacute;ntulas por especie fueron cosechadas, &oacute;rganos a&eacute;reos y ra&iacute;ces fueron secados en una estufa a 70 &deg;C por 48 horas para obtener su biomasa. El &aacute;rea fotosint&eacute;tica de le&ntilde;osas y suculentas se obtuvo digitalizando im&aacute;genes en fresco con un esc&aacute;ner marca HP G3010. Las im&aacute;genes se analizaron con el software Sigma Scan/image (Jandel Scientific, 1993).</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">La TRC y sus componentes (el cociente del &aacute;rea fotosint&eacute;tica y la tasa de asimilaci&oacute;n neta), se calcularon de acuerdo a Cardillo y Bernal (2006), seg&uacute;n la tasa relativa de crecimiento (TRC, mg<sup>&#45;1</sup>g<sup>&#45;1</sup> d&iacute;a<sup>&#45;1</sup>), que mide los cambios en la biomasa de las pl&aacute;ntulas a trav&eacute;s del tiempo y puede ser dividida en dos componentes: el morfol&oacute;gico (CAF, cociente de &aacute;rea fotosint&eacute;tica, en cm<sup>2</sup> g<sup>&#45;1</sup>), es el total del &aacute;rea fotosint&eacute;tica por unidad de biomasa total y, el componente fisiol&oacute;gico (TAN, tasa de asimilaci&oacute;n neta, en mg/d&iacute;a/cm<sup>2</sup>), que mide la asignaci&oacute;n de biomasa resultado de la diferencia entre la tasa fotosint&eacute;tica neta diaria y la respiraci&oacute;n (Evans, 1972).</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="center"><font face="verdana" size="2"><i>TRC= ((BT<sub>2</sub> &#45; BT<sub>1</sub>)/(T<sub>2</sub> &#45; T<sub>1</sub>)) * ((2)/(BT<sub>1</sub> + BT<sub>2</sub>)) / TAN = ((BT<sub>2</sub> &#45; BT<sub>1</sub>)/(T<sub>2</sub> &#45; T<sub>1</sub>)) * ((2)/AFT<sub>1</sub> + AFT<sub>2</sub>))</i></font></p>          <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2">Donde: BT<sub>1</sub> y BT<sub>2</sub> son la biomasa promedio de las plantas en las cosechas 1 y 2; T<sub>1</sub> y T<sub>2</sub> son el tiempo inicial y final de las dos cosechas; AFT<sub>1</sub> y AFT<sub>2</sub>, son el total del &aacute;rea fotosint&eacute;tica en la primera y segunda cosecha. La TRC tambi&eacute;n se puede obtener mediante el producto de CAF*TAN (Cardillo y Bernal, 2006).</font></p>  	    <p align="justify"><font face="verdana" size="2">El cociente ra&iacute;z/v&aacute;stago se obtuvo del cociente de la biomasa de las ra&iacute;ces entre la de los v&aacute;stagos y no tiene unidades. Los valores mayores a la unidad indican que las pl&aacute;ntulas asignan m&aacute;s biomasa a la ra&iacute;z que a la parte a&eacute;rea (Miquelajauregui y Valverde, 2010).</font></p>  	    <p align="justify"><font face="verdana" size="2">La eficiencia fotosint&eacute;tica actual (EFA) del &#934;<sub>PSII</sub> (AF/ <i>F<sub>m</sub>,),</i> en una muestra adaptada a la luz, se calcul&oacute; mediante la f&oacute;rmula:</font></p>  	    <p align="center"><font face="verdana" size="2"><i>&#916;F/F<sub>m</sub>,</i> = (F<sub>m</sub>,&#45;<i>F)/</i>F<sub>m</sub>,</font></p>  	    <p align="justify"><font face="verdana" size="2">La eficiencia fotosint&eacute;tica potencial (EFP) del &#934;<sub>PSII</sub> en una muestra adaptada a la oscuridad se calcul&oacute; con la f&oacute;rmula:</font></p>  	    <p align="center"><font face="verdana" size="2"><i>F</i><sub>v</sub>/<i>F<sub>m</sub></i>,</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">Donde <i>F<sub>v</sub></i> es la fluorescencia de la muestra adaptada a la oscuridad. <i>F</i> es la fluorescencia de la clorofila de la muestra adaptada a la luz, y F<sub>m</sub>, es la fluorescencia m&aacute;xima de la muestra adaptada a la luz cuando se aplica un pulso de saturaci&oacute;n de luz act&iacute;nica (Maxwell y Johnson, 2000; Cavender&#45;Bares y Bazzaz, 2004). Estas variables se midieron en la segunda cosecha a las 5:00 a.m. (pre&#45;amanecer) y a las 12:00 p.m. (mediod&iacute;a), con un analizador port&aacute;til de fluorescencia (Mini&#45;PAM, Photosynthesis Yield Analyzer, Walz, Alemania). La tasa de transporte de electrones (TTE; Ehleringer, 1981):</font></p>  	    <p align="justify"><font face="verdana" size="2">TTE = EFA del &#934;<sub>PSII</sub> x RFA x 0.05 x 0.084, expresado en <i>&#956;</i>mol m<sup>&#45;2</sup> s<sup>&#45;1</sup></font></p>  	    <p align="justify"><font face="verdana" size="2">EFA del &#934;<sub>PSII</sub> es la eficiencia fotosint&eacute;tica actual del fotosistema II, RFA es la radiaci&oacute;n fotosint&eacute;ticamente activa, 0.05 es un factor de distribuci&oacute;n de energ&iacute;a entre el fotosistema I (&#934;<sub>PSI</sub>) y el fotosistema II (&#934;<sub>PSII</sub>), y 0.84 es un factor est&aacute;ndar de la fracci&oacute;n de luz absorbida por el tejido fotosint&eacute;tico.</font></p>  	    <p align="justify"><font face="verdana" size="2"><i>An&aacute;lisis estad&iacute;sticos.</i> Los atributos relevantes de fertilidad de los suelos (como la materia org&aacute;nica y el nitr&oacute;geno amoniacal), de los diferentes micrositios de cada sitio se analizaron mediante ANOVA de una v&iacute;a. Los valores de la tasa relativa de crecimiento se obtuvieron mediante las nueve combinaciones posibles con las tres repeticiones obtenidas de la primera cosecha, con las respectivas medidas de la segunda cosecha; &eacute;sta es una modificaci&oacute;n del m&eacute;todo que s&oacute;lo considera la comparaci&oacute;n de tres pares de valores cuando se tienen tres repeticiones. De esta manera se generaron nueve valores de los que se obtuvo un promedio por tratamiento. Este procedimiento permiti&oacute; disminuir la variaci&oacute;n de los resultados, comparado con el procedimiento habitual de calcular la TRC con s&oacute;lo un par de datos por repetici&oacute;n.</font></p>  	    <p align="justify"><font face="verdana" size="2">La tasa relativa de crecimiento (TRC) y sus componentes se analizaron con un ANOVA multifactorial, de acuerdo con el dise&ntilde;o factorial utilizado previamente, con el software SAS (SAS, 2002). Este dise&ntilde;o fue &uacute;til para un mejor manejo de los tratamientos; sin embargo, debido a que se encontraron diferencias entre sitios y, dentro de los sitios para los grupos funcionales, los an&aacute;lisis de varianza se realizaron por especie. Para las variables que no cumplieron los supuestos para el an&aacute;lisis en ANOVA, los datos se transformaron a la escala <i>log</i> natural, particularmente se aplic&oacute; el an&aacute;lisis Kruskall&#45;Wallis en el CAF y la TAN de <i>Opuntia jaliscana,</i> por no cumplir dichos supuestos. El grado de asociaci&oacute;n entre la TRC y sus componentes se realiz&oacute; mediante un an&aacute;lisis de regresi&oacute;n. Los datos de la fluorescencia de la clorofila se analizaron con MANOVA, debido a que las variables EFA, TTE y el PAR presentaron interdependencia. Para efectos de notaci&oacute;n en los cuadros de resultados se abreviar&aacute;n los factores por sus iniciales: radiaci&oacute;n = R, humedad = H y fertilidad = F; asimismo, el nivel mayor se denotar&aacute; como alto y el menor como bajo.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Resultados</b></font></p>  	    <p align="justify"><font face="verdana" size="2">El an&aacute;lisis fisicoqu&iacute;mico de los suelos por localidad y micrositio, indic&oacute; diferencias para algunas variables (<a href="/img/revistas/bs/v91n3/a7c1.jpg" target="_blank">Cuadro 1</a>). La materia org&aacute;nica fue diferente entre micrositios <i>(F</i> = 115.82, <i>P</i> &lt; 0.01), el suelo debajo de dosel del sitio m&eacute;sico present&oacute; 77% m&aacute;s materia org&aacute;nica, comparado con el suelo en abierto del mismo sitio; adem&aacute;s, el suelo de dosel del sitio x&eacute;rico present&oacute; 67% m&aacute;s materia org&aacute;nica que el suelo en abierto del mismo sitio. Tambi&eacute;n hubo diferencia significativa en la interacci&oacute;n de sitio x micrositio (F = 21.54, <i>P</i>&lt;&nbsp;0.01). El suelo debajo de dosel del sitio m&eacute;sico present&oacute; cerca del doble de materia org&aacute;nica que el del sitio x&eacute;rico.</font></p>  	    <p align="justify"><font face="verdana" size="2"><i>Tasa relativa de crecimiento</i> (TRC, mg<sup>&#45;1</sup>g<sup>&#45;1</sup> d&iacute;a<sup>&#45;1</sup>). Para el gradiente total (ambos sitios), se encontr&oacute; que las especies del sitio m&eacute;sico crecieron 18% m&aacute;s que las especies del sitio x&eacute;rico (m&eacute;sico: 0.020 &plusmn; 0.00055, x&eacute;rico: 0.017 &plusmn; 0.0007). Las protegidas tuvieron en promedio 22% mayor TRC que las nodrizas <i>(Opuntia jaliscana:</i> 0.022 &plusmn; 0.0006, <i>O. streptacantha:</i> 0.023 &plusmn; 0.0007, <i>Acacia schaffneri</i> (sitio m&eacute;sico): 0.020 &plusmn; 0.0008, <i>A. farnesiana:</i> 0.017 &plusmn; 0.0008, <i>Prosopis laevigata:</i> 0.016 &plusmn; 0.0008 y <i>A. schaffneri</i> (sitio x&eacute;rico): 0.015 &plusmn; 0.0014).</font></p>  	    <p align="justify"><font face="verdana" size="2">Dentro de cada sitio tambi&eacute;n se observaron diferencias entre nodrizas. En el sitio m&eacute;sico, <i>Acacia farnesiana</i> present&oacute; 14% menor crecimiento que <i>A. schaffneri (A. farnesiana:</i> 0.0176 &plusmn; 0.0008, <i>A. schaffneri</i> de Jalostotitl&aacute;n: 0.0206 &plusmn; 0.0008), mientras que en el sitio x&eacute;rico las le&ntilde;osas presentaron pr&aacute;cticamente la misma TRC <i>(Prosopis laevigata:</i> 0.0157 &plusmn; 0.0008, <i>A. schaffneri:</i> 0.0155 &plusmn; 0.001).</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">La respuesta por especie a los tratamientos fue diferente, como se especifica a continuaci&oacute;n. <i>Acacia farnesiana</i> present&oacute; diferencias s&oacute;lo para el factor fertilidad (F = 5.61, <i>P</i> =&lt;&nbsp;0.05), la fertilidad alta disminuy&oacute; su crecimiento en 17%, en contraste con la fertilidad baja. En <i>A. schaffneri</i> del sitio m&eacute;sico, la humedad alta aument&oacute; la TRC en 16% al compararla con la humedad baja <i>(F</i> = 10.56, <i>P</i> = &lt; 0.01); mientras que la radiaci&oacute;n y la fertilidad no fueron significativas. Adem&aacute;s, el efecto de la humedad fue distinto por el nivel de fertilidad; la humedad alta y la fertilidad baja aumentaron el crecimiento en 28%, en comparaci&oacute;n con la humedad y fertilidad bajas (F = 8.93, <i>P</i> = &lt; 0.01; <a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2"><i>Acacia schaffneri</i> del sitio x&eacute;rico en la radiaci&oacute;n alta creci&oacute; 31% m&aacute;s que en la baja y, en la humedad alta la TRC aument&oacute; 28% m&aacute;s al compararla con la humedad baja, (Luz: <i>F</i> = 7.88, <i>P</i> = &lt; 0.01; humedad <i>F</i> = 5.9, <i>P</i> = 0.02, respectivamente). El factor fertilidad no present&oacute; efectos significativos. Sin embargo, el efecto de la fertilidad fue distinto por el nivel de radiaci&oacute;n, la radiaci&oacute;n alta y la fertilidad baja aumentaron su crecimiento en promedio 43%, en comparaci&oacute;n con las dem&aacute;s combinaciones (<a href="/img/revistas/bs/v91n3/a7c3.jpg" target="_blank">Cuadro 3</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2">En <i>Prosopis laevigata</i> la TRC aument&oacute; en 17% en la radiaci&oacute;n alta, en comparaci&oacute;n con la radiaci&oacute;n baja, y 17.2% en la humedad baja en contraste con la humedad alta <i>(F</i> = 8.07, <i>P</i> = &lt; 0.05; <i>F</i> = 5.82, <i>P</i> = &lt; 0.05, respectivamente; <a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). El efecto de la humedad fue distinto por el nivel de radiaci&oacute;n, en el tratamiento de radiaci&oacute;n alta y humedad baja la TRC aument&oacute; en promedio un 30% (<a href="/img/revistas/bs/v91n3/a7c3.jpg" target="_blank">Cuadro 3</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2">La TRC de <i>Opuntia jaliscana</i> aument&oacute; 13.1%, 13% y 15% como respuesta a la radiaci&oacute;n, humedad y fertilidad altas, al compararlos con la radiaci&oacute;n, humedad y fertilidad bajas (F = 120.31, <i>P</i> = &lt; 0.01; <i>F</i> = 118.83, <i>P</i> = &lt; 0.01; <i>F</i> = 298.51, <i>P</i> = &lt; 0.01, respectivamente; <a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). Todas las interacciones dobles fueron significativas, el efecto de la humedad fue distinto por el nivel de radiaci&oacute;n, la radiaci&oacute;n y la humedad altas incrementaron la TRC en promedio 16%. El efecto de la fertilidad fue distinto por el nivel de radiaci&oacute;n: la radiaci&oacute;n baja y la fertilidad baja disminuyeron el crecimiento en promedio 26.6%. El efecto de la fertilidad fue diferente por el nivel de humedad: la humedad y la fertilidad altas aumentaron en 25% el crecimiento en contraste con el de humedad y fertilidad bajas (<a href="/img/revistas/bs/v91n3/a7c3.jpg" target="_blank">Cuadro 3</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2">Las pl&aacute;ntulas de <i>Opuntia streptacantha</i> presentaron diferencias estad&iacute;sticas significativas en los factores de radiaci&oacute;n, humedad y fertilidad (F = 27.24, <i>P</i> = &lt;&lt; 0.01; <i>F</i> = 9.41, <i>P</i> = &lt; 0.01; <i>F</i> = 21.06, <i>P</i> = &lt; 0.01, respectivamente; <a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). La radiaci&oacute;n, humedad y fertilidad altas aumentaron la TRC en 8%, 12.5% y 12%, respectivamente; en comparaci&oacute;n con la radiaci&oacute;n, humedad y fertilidad bajas. Tambi&eacute;n se encontraron interacciones significativas. El efecto de la humedad fue distinto por el nivel de radiaci&oacute;n: en la radiaci&oacute;n alta y la humedad alta aument&oacute; el crecimiento en 19%, en contraste con la radiaci&oacute;n y humedad bajas. El efecto de la fertilidad tambi&eacute;n fue diferente por el nivel de radiaci&oacute;n: en la radiaci&oacute;n baja y la fertilidad baja disminuy&oacute; la TRC en 19%, comparado con la radiaci&oacute;n y fertilidad altas. La fertilidad vari&oacute; por el nivel de humedad: la humedad alta y la fertilidad alta aument&oacute; la TRC en 22% en contraste con la humedad baja y fertilidad alta (<a href="/img/revistas/bs/v91n3/a7c3.jpg" target="_blank">Cuadro 3</a>). Adem&aacute;s, se presentaron diferencias en la interacci&oacute;n triple radiaci&oacute;n, humedad y fertilidad, el efecto de la humedad y la fertilidad fueron distintos por el nivel de la radiaci&oacute;n: la radiaci&oacute;n, humedad y fertilidad altas aument&oacute; el crecimiento en 35%, en comparaci&oacute;n con la radiaci&oacute;n baja, humedad alta y fertilidad baja (<a href="/img/revistas/bs/v91n3/a7c3.jpg" target="_blank">Cuadro 3</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2"><i>Cociente del &aacute;rea fotosint&eacute;tica</i> (CAF, cm<sup>2</sup> g<sup>&#45;1</sup>). Se utiliza &aacute;rea fotosint&eacute;tica en lugar de &aacute;rea foliar por estar incluidas especies suculentas, donde hay &aacute;rea fotosint&eacute;tica y no hojas propiamente dichas. Los resultados indican que el CAF no vari&oacute; entre sitios (sitio m&eacute;sico: 10.53 &plusmn; 0.54, sitio x&eacute;rico: 9.54 &plusmn; 0.65), pero s&iacute; entre especies, dado que las nodrizas mostraron menor CAF (6.9 &plusmn; 0.18) que las protegidas (16.3 &plusmn; 0.51). Dentro de cada sitio, las nodrizas del sitio m&eacute;sico aumentaron su CAF en promedio 26.5% con respecto a las del sitio x&eacute;rico. El CAF entre protegidas no vari&oacute;.</font></p>  	    <p align="justify"><font face="verdana" size="2">El CAF aument&oacute; en todas las especies como respuesta a la luz baja; sin embargo, respondieron de forma diferente. <i>Acacia farnesiana</i> present&oacute; diferencias significativas en los factores de radiaci&oacute;n (F = 127.29, <i>P</i> = &lt; 0.01) y fertilidad (F = 44.76, <i>P</i> = &lt; 0.01). En la radiaci&oacute;n baja el CAF aument&oacute; 16% en comparaci&oacute;n con la radiaci&oacute;n alta, mientras que en la fertilidad alta el CAF fue 10% mayor que en fertilidad baja. Los niveles de humedad no presentaron diferencias (<a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). Tambi&eacute;n se encontraron diferencias en la interacci&oacute;n radiaci&oacute;n y humedad, en todas sus combinaciones; la radiaci&oacute;n y la humedad bajas increment&oacute; el CAF en 9.2%, 17.24% y 23% en comparaci&oacute;n con los de radiaci&oacute;n baja y humedad alta, radiaci&oacute;n y humedad altas y, la radiaci&oacute;n alta y humedad baja, respectivamente (<a href="/img/revistas/bs/v91n3/a7c4.jpg" target="_blank">Cuadro 4</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2"><i>Acacia schaffneri</i> del sitio m&eacute;sico present&oacute; diferencia estad&iacute;stica solamente para el factor radiaci&oacute;n (F = 79.15, <i>P</i> = &lt; 0.01), en la radiaci&oacute;n baja el CAF aument&oacute; 23.6% comparado con el de la radiaci&oacute;n alta (<a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). En <i>A. schaffneri</i> del sitio x&eacute;rico tambi&eacute;n se hallaron diferencias para el factor radiaci&oacute;n (F = 585.94, <i>P</i> = &lt; 0.01), el CAF en la radiaci&oacute;n baja fue 39% mayor que el encontrado en la radiaci&oacute;n alta (<a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). Todas las interacciones dobles fueron significativas (<a href="/img/revistas/bs/v91n3/a7c4.jpg" target="_blank">Cuadro 4</a>). La interacci&oacute;n triple revel&oacute; que el CAF m&aacute;s bajo se encontr&oacute; por efecto de la radiaci&oacute;n alta, humedad baja y fertilidad alta (<a href="/img/revistas/bs/v91n3/a7c4.jpg" target="_blank">Cuadro 4</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2">La radiaci&oacute;n baja aument&oacute; el CAF de <i>Prosopis laevigata</i> en 93% con respecto al de la radiaci&oacute;n alta, mientras que en la fertilidad alta lo aument&oacute; en 23% comparado con el de la fertilidad baja (F = 366.84, <i>P</i> = &lt; 0.01; <i>F</i> = 101.79, <i>P</i> = &lt; 0.01; respectivamente). No hubo efectos por los niveles de humedad (<a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). Sin embargo, el efecto de la humedad fue distinto por el nivel de radiaci&oacute;n: en la radiaci&oacute;n y humedad bajas el CAF aument&oacute; 8.5% en comparaci&oacute;n con el de la radiaci&oacute;n y humedad altas (<a href="/img/revistas/bs/v91n3/a7c4.jpg" target="_blank">Cuadro 4</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2">Para el CAF en <i>Opuntia jaliscana</i> se encontraron diferencias entre los niveles de radiaci&oacute;n con el an&aacute;lisis Kruskal&#45;Wallis (H = 17.28, <i>P</i> = &lt; 0.01), el CAF fue 63% mayor en luz baja que en luz alta (19.7 &plusmn; 0.2, 12.4 &plusmn; 0.33; respectivamente). La humedad y la fertilidad no fueron diferentes (<a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). <i>Opuntia streptacantha</i> present&oacute; diferencias significativas en los factores de radiaci&oacute;n y fertilidad <i>(F</i> = 307.98, <i>P</i> = &lt; 0.1; <i>F</i> = 41.33, <i>P</i> = &lt; 0.1; respectivamente). En la radiaci&oacute;n baja el CAF aument&oacute; 30% en comparaci&oacute;n con el de la radiaci&oacute;n alta, mientras que en la fertilidad alta present&oacute; 13% m&aacute;s CAF que en el de la fertilidad baja (<a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). Los niveles de humedad no fueron estad&iacute;sticamente distintos. Adem&aacute;s, la combinaci&oacute;n de la radiaci&oacute;n baja y fertilidad alta increment&oacute; el CAF en 39%, comparado con el de radiaci&oacute;n alta y fertilidad baja (<a href="/img/revistas/bs/v91n3/a7c4.jpg" target="_blank">Cuadro 4</a>).</font></p>  	    ]]></body>
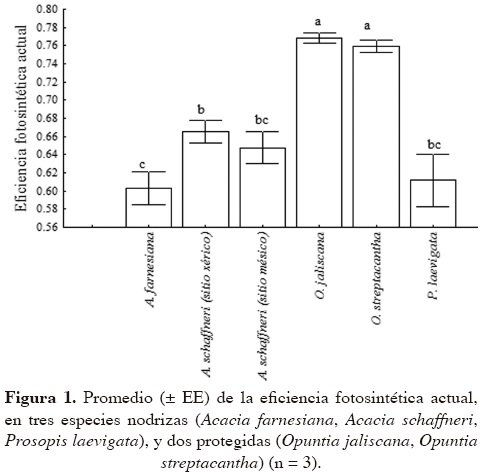
<body><![CDATA[<p align="justify"><font face="verdana" size="2"><i>Tasa de asimilaci&oacute;n neta</i> (TAN, mg/d&iacute;a/cm2). En promedio, la TAN en el sitio x&eacute;rico fue de 0.0024 &plusmn; 0.00017 y en el sitio m&eacute;sico fue de 0.0022 &plusmn; 0.0001. Las nodrizas presentaron una TAN de 0.0027 &plusmn; 0.0.0001 y las protegidas de 0.0014 &plusmn; 0.00007. Todas las especies aumentaron la TAN por efecto de la luz alta; sin embargo, dicho aumento fue diferente en cada especie. En <i>Acacia farnesiana</i> se encontr&oacute; que la TAN aument&oacute; 23.5% en la radiaci&oacute;n alta en comparaci&oacute;n con el de radiaci&oacute;n baja y, en el tratamiento de fertilidad alta disminuy&oacute; 23% en contraste con el de fertilidad baja (F = 39.97, <i>P</i> = &lt; 0.01; <i>F</i> = 41.25, <i>P</i> = &lt; 0.01; respectivamente; <a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). El efecto de la humedad fue distinto por el nivel de fertilidad, la TAN aument&oacute; 42% en el tratamiento de humedad y fertilidad bajas, al compararlo con el de humedad baja y fertilidad alta. Adem&aacute;s, el efecto de la humedad y el de la fertilidad fue distinto por el nivel de radiaci&oacute;n, la mayor TAN se present&oacute; en el tratamiento de radiaci&oacute;n alta, humedad baja y fertilidad alta; mientras que la menor fue en el de radiaci&oacute;n baja, humedad alta y fertilidad baja (<a href="/img/revistas/bs/v91n3/a7c5.jpg" target="_blank">Cuadro 5</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2">Para <i>Acacia schaffneri</i> del sitio m&eacute;sico en los factores de radiaci&oacute;n, humedad y fertilidad hubo diferencias estad&iacute;sticas (F = 409.63, <i>P</i> = &lt; 0.01; <i>F</i> = 34.07, <i>P</i> = &lt; 0.01; <i>F</i> = 9.46, <i>P</i> = &lt; 0.01, respectivamente), en contraste con los tratamientos de radiaci&oacute;n, humedad y fertilidad bajas, la TAN aument&oacute; 41% en presencia de radiaci&oacute;n alta, 15% en humedad alta y 7% en fertilidad alta (<a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). Tambi&eacute;n se presentaron diferencias en todas las interacciones. En el tratamiento de radiaci&oacute;n alta y humedad alta, la TAN fue 55% superior que la que se encontr&oacute; en el de radiaci&oacute;n y humedad bajas. Esta disminuy&oacute; en 40% y 21% por efecto de la radiaci&oacute;n y fertilidad bajas y, en el de la humedad y fertilidad bajas, respectivamente (<a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). El efecto de la humedad y la fertilidad fueron diferentes por el nivel de la radiaci&oacute;n; la TAN fue 67.5% mayor en el de radiaci&oacute;n alta, humedad alta y fertilidad baja, en comparaci&oacute;n con el de radiaci&oacute;n baja, humedad alta y fertilidad baja (<a href="/img/revistas/bs/v91n3/a7c5.jpg" target="_blank">Cuadro 5</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2">En <i>Acacia schaffneri</i> del sitio x&eacute;rico la TAN aument&oacute; 73%, 17% y 22.5% en los tratamientos de radiaci&oacute;n alta, humedad alta y fertilidad baja; en contraste con los de radiaci&oacute;n baja, humedad baja y fertilidad alta; respectivamente (F = 319.5, <i>P</i> = &lt; 0.01; <i>F</i> = 10.6. <i>P</i> = &lt; 0.01; <i>F</i> = 26.3, <i>P</i> = &lt; 0.01; respectivamente) (<a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). En las todas las interacciones se encontraron diferencias. La TAN aument&oacute; 75% en el tratamiento de radiaci&oacute;n y humedad altas, comparado con el de radiaci&oacute;n baja y humedad baja. Sin embargo, disminuy&oacute; 70% en el de radiaci&oacute;n baja y fertilidad alta, en contraste con el de radiaci&oacute;n alta y fertilidad baja, y se redujo 45% en el de humedad y fertilidad altas a diferencia con el de humedad baja y fertilidad baja. El efecto de la humedad y la fertilidad fue diferente por el nivel de radiaci&oacute;n, en el de radiaci&oacute;n alta, humedad alta y fertilidad baja hubo una TAN 66% mayor que el de radiaci&oacute;n baja, humedad baja y fertilidad alta (<a href="/img/revistas/bs/v91n3/a7c5.jpg" target="_blank">Cuadro 5</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2"><i>Prosopis laevigata</i> s&oacute;lo present&oacute; efectos significativos en el factor luz (F = 41.54, <i>P</i> = &lt; 0.01). En la radiaci&oacute;n alta la TAN aument&oacute; en 47% en comparaci&oacute;n con el de radiaci&oacute;n baja. El an&aacute;lisis de Kruskal&#45;Wallis para <i>Opuntia jaliscana</i> revel&oacute; que la TAN fue 52% mayor en el de radiaci&oacute;n alta que en el de radiaci&oacute;n baja <i>(H</i> = 17.28, <i>P</i> = &lt; 0.01), los niveles de humedad y fertilidad no fueron distintos (<a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). <i>Opuntia streptacantha</i> por efecto de la radiaci&oacute;n alta aument&oacute; 66% su TAN en comparaci&oacute;n con la radiaci&oacute;n baja; mientras que por la humedad alta la TAN fue 19% mayor que en la humedad baja (F = 365, <i>P</i> = &lt; 0.01; <i>F</i> = 72.55, <i>P</i> = &lt; 0.01; respectivamente). Los niveles de fertilidad no presentaron diferencias (<a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). Se encontraron diferencias estad&iacute;sticas en las siguientes interacciones: en el tratamiento de radiaci&oacute;n alta y humedad alta, la TAN aument&oacute; 48% en contraste con el de radiaci&oacute;n y humedad bajas. El efecto de la fertilidad fue distinto por el nivel de luz en todas sus combinaciones, en la radiaci&oacute;n alta y fertilidad alta se present&oacute; una TAN 29% mayor que el de radiaci&oacute;n y fertilidad bajas, y en el tratamiento de humedad alta y fertilidad alta fue 31% mayor en contraste con el de humedad y fertilidad bajas (<a href="/img/revistas/bs/v91n3/a7c5.jpg" target="_blank">Cuadro 5</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2"><i>Cociente Ra&iacute;z/V&aacute;stago</i> (C:R/V). El C:R/V vari&oacute; entre sitios, en el m&eacute;sico fue 9% m&aacute;s alto que en el x&eacute;rico (0.74 &plusmn; 0.05, 0.8 &plusmn; 0.08; respectivamente). Entre grupos funcionales se hall&oacute; que las nodrizas presentaron 80% m&aacute;s C:R/V que las protegidas (1.05 &plusmn; 0.5, 0.21 &plusmn; 0.01; respectivamente). El C: R/V de las nodrizas fue superior o cercano a la unidad, lo cual indica que &eacute;stas especies asignaron m&aacute;s biomasa a la ra&iacute;z que al tallo, resultados contrarios se encontraron en las protegidas con valores de C:R/V cercanos al cero, revelando que asignaron m&aacute;s biomasa al tallo que a la ra&iacute;z.</font></p>  	    <p align="justify"><font face="verdana" size="2">En todas las especies, el suelo de fertilidad baja aument&oacute; el C:R/V. Para <i>Acacia farnesiana</i> la fertilidad baja aument&oacute; el C:R/V en 28% en comparaci&oacute;n con el nivel alto (F = 88.29, <i>P</i> = &lt; 0.01); la radiaci&oacute;n y la humedad no presentaron efectos significativos (<a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). Para <i>A. schaffneri</i> del sitio m&eacute;sico, el nivel de radiaci&oacute;n alto y el de fertilidad bajo aumentaron el C:R/V en 24% y 16%, correspondientemente, al compararlos con el de radiaci&oacute;n baja y el de fertilidad alta (F = 44.73, <i>P</i> = &lt; 0.01; <i>F</i> = 17.16, <i>P</i> = &lt; 0.01, respectivamente; <a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). En <i>A. schaffneri</i> del sitio x&eacute;rico como respuesta a la radiaci&oacute;n alta, el C:R/V aument&oacute; 31% (F = 134.32, <i>P</i> = &lt; 0.01), comparado con el de la radiaci&oacute;n baja. Adem&aacute;s, la fertilidad baja increment&oacute; el C:R/V en 8.7%. Los niveles de humedad no presentaron diferencias (<a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). Tambi&eacute;n se encontraron diferencias en el tratamiento de radiaci&oacute;n y fertilidad altas, este aument&oacute; el C:R/V en 80% en contraste con el de radiaci&oacute;n alta y fertilidad baja (<a href="/img/revistas/bs/v91n3/a7c6.jpg" target="_blank">Cuadro 6</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2"><i>Prosopis laevigata</i> present&oacute; diferencias por efecto de los factores de luz, humedad y fertilidad (F = 93.85, <i>P</i> = &lt; 0.01; <i>F</i> = 15, <i>P</i> = &lt; 0.01; <i>F</i> = 109.06, <i>P</i> = &lt; 0.01; respectivamente). El C:R/V en la radiaci&oacute;n alta, humedad alta y fertilidad baja, aument&oacute; 31%, 14% y 32%, respectivamente; en comparaci&oacute;n con los tratamientos de radiaci&oacute;n baja, humedad baja y fertilidad alta (<a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). Tambi&eacute;n el C:R/V en la radiaci&oacute;n alta y humedad baja aument&oacute; 41%, al compararlo con el de la radiaci&oacute;n baja y humedad alta. En el tratamiento de humedad y fertilidad bajas aument&oacute; 44%, al contrastarlo con el de humedad y fertilidad altas. Adem&aacute;s, al combinarse la radiaci&oacute;n alta, humedad baja y fertilidad baja, dicha variable aument&oacute; 96%; en contraste con el de luz baja, humedad alta y fertilidad alta (<a href="/img/revistas/bs/v91n3/a7c6.jpg" target="_blank">Cuadro 6</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2">Para <i>Opuntia jaliscana</i> la fertilidad baja aument&oacute; el C: RIV en 56%, en contraste con la fertilidad alta (F = 49.3, <i>P</i> = &lt; 0.01), los niveles de radiaci&oacute;n y humedad no presentaron diferencias (<a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). Tambi&eacute;n en la radiaci&oacute;n baja, humedad baja y fertilidad baja, el C:R/V aument&oacute; 66%; en comparaci&oacute;n con el de radiaci&oacute;n baja, humedad baja y fertilidad alta (<a href="/img/revistas/bs/v91n3/a7c6.jpg" target="_blank">Cuadro 6</a>). El an&aacute;lisis en <i>O. streptacantha</i> revel&oacute; que en la humedad alta y en la fertilidad alta el C:R/V se increment&oacute; en 12.7% y 10%, correspondientemente, comparados con la humedad y la fertilidad bajas <i>(F</i> = 14.07, <i>P</i> = &lt; 0.01; <i>F</i> = 8.54, <i>P</i> = &lt; 0.01; respectivamente, <a href="/img/revistas/bs/v91n3/html/a7cuadro.html" target="_blank">Cuadro 2</a>). Tambi&eacute;n el efecto de la humedad fue distinto por el nivel de radiaci&oacute;n: en el tratamiento de radiaci&oacute;n baja y humedad alta el C:R/V aument&oacute; 18%, comparado con el de radiaci&oacute;n alta y humedad baja. Mientras que en de radiaci&oacute;n y fertilidad altas, &eacute;sta variable disminuy&oacute; 23.5% (<a href="/img/revistas/bs/v91n3/a7c6.jpg" target="_blank">Cuadro 6</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2"><i>An&aacute;lisis de la fluorescencia de la clorofila.</i> La eficiencia fotosint&eacute;tica potencial (EFP) <i>F<sub>v</sub>/F<sub>m'</sub></i> de todas las especies en promedio present&oacute; valores de 0.8. La eficiencia fotosint&eacute;tica actual (EFA), la tasa de transporte de electrones (TTE) y la densidad del flujo de fotones de la fotos&iacute;ntesis (DFFF), presentaron efecto significativo en el factor radiaci&oacute;n (F = 44.25, <i>P</i> &lt; 0.01). La EFA en el nivel alto de radiaci&oacute;n fue 11% mayor que en el bajo (F = 39.79, <i>P</i> &lt; 0.01; 0.64 &plusmn; 0.01, 0.71 &plusmn; 0.01, respectivamente). La TTE fue 59% mayor en la radiaci&oacute;n alta que en la baja <i>(F</i> = 86.6, <i>P</i> &lt;&lt; 0.01; 87.3 &plusmn; 5.3, 36.3 &plusmn; 2.6, respectivamente).</font></p>  	    <p align="justify"><font face="verdana" size="2">Las protegidas presentaron 21% mayor EFA que las nodrizas (F = 7.23, <i>P</i> &lt; 0.01; <a href="#f1">Figura 1</a>). Adem&aacute;s, el nivel de radiaci&oacute;n afect&oacute; la EFA de las especies (F = 2.67, <i>P</i> = 0.02). Las protegidas exhibieron los valores m&aacute;s altos en ambos niveles de radiaci&oacute;n, mientras que las nodrizas disminuyeron su EFA en presencia de radiaci&oacute;n alta. Dentro de estas &uacute;ltimas, <i>Acacia farnesiana</i> y <i>Prosopis laevigata</i> fueron las m&aacute;s afectadas al presentar los valores m&aacute;s bajos. La DFFF se present&oacute; de manera diferente en las especies (F = 4.13, <i>P</i> &lt; 0.01): las nodrizas mostraron mayor respuesta que las protegidas a los flujos de fotones m&aacute;s altos. La humedad afect&oacute; de manera diferente la TTE de las especies (F = 259.9, <i>P</i> &lt; 0.05). <i>Opuntia jaliscana</i> disminuy&oacute; su TTE en el nivel m&aacute;s bajo de humedad; mientras que <i>A. farnesiana</i> present&oacute; la TTE m&aacute;s alta en el mismo tratamiento.</font></p>  	    ]]></body>
<body><![CDATA[<p align="center"><font face="verdana" size="2"><a name="f1"></a></font></p>  	    <p align="center"><font face="verdana" size="2"><img src="/img/revistas/bs/v91n3/a7f1.jpg"></font></p>  	    <p align="justify"><font face="verdana" size="2">El ANOVA por especie revel&oacute; que la EFA aument&oacute; por efecto de la radiaci&oacute;n alta en la mayor&iacute;a de las especies; los niveles de humedad y fertilidad no afectaron esta variable. S&oacute;lo las protegidas evidenciaron respuesta significativa en las interacciones radiaci&oacute;n y humedad; as&iacute; como radiaci&oacute;n y fertilidad. En <i>Opuntia jaliscana</i> el tratamiento de radiaci&oacute;n baja y humedad alta, y en el de radiaci&oacute;n baja y fertilidad alta, incrementaron la EFA (F = 11.78, <i>P</i> &lt; 0.01; <i>F</i> = 5.67, <i>P</i> = 0.03, respectivamente). <i>Opuntia streptacantha</i> no present&oacute; diferencias entre los niveles de fertilidad ni de radiaci&oacute;n; sin embargo, en este &uacute;ltimo factor se observ&oacute; una tendencia para incrementar la EFA en la radiaci&oacute;n baja. As&iacute; mismo, se encontr&oacute; que la humedad alta increment&oacute; la EFA en contraste con la humedad baja (F = 10.7, <i>P</i> &lt; 0.01).</font></p>  	    <p align="justify"><font face="verdana" size="2">En todas las especies, la TTE aument&oacute; cuando aument&oacute; el nivel de radiaci&oacute;n (<a href="/img/revistas/bs/v91n3/a7f2.jpg" target="_blank">Figura 2</a>). Las especies con menor TTE por efecto de la humedad fueron <i>Prosopis laevigata</i> y <i>Acacia farnesiana</i> (TTE respectivo de 1.02 y 1.05 veces m&aacute;s grande en el nivel bajo de humedad que en el nivel alto). Fue notable la diferencia entre el desempe&ntilde;o de <i>A. schaffneri</i> del sitio m&eacute;sico respecto a la TTE de <i>A. schaffneri</i> del sitio x&eacute;rico, su procedencia determin&oacute; una respuesta en TTE en los niveles de humedad. En el sitio x&eacute;rico la TTE fue mayor en nivel bajo de humedad, mientras que en la del sitio m&eacute;sico fue en la humedad alta. Para las dos especies de <i>Opuntia</i> la TTE fue mayor (entre 1.8 y 2.5 veces) en la humedad alta (60%).</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Discusi&oacute;n</b></font></p>  	    <p align="justify"><font face="verdana" size="2"><i>Tasa relativa de crecimiento</i> (TRC). Se esperaba que las protegidas presentaran tasas relativas de crecimiento m&aacute;s altas en la radiaci&oacute;n baja, mientras que en las nodrizas el crecimiento fuera mayor en la radiaci&oacute;n alta. Sin embargo, la mayor&iacute;a de las especies presentaron tasas relativas de crecimiento mayores en la radiaci&oacute;n alta que en la baja. Adem&aacute;s, se esperaba que las nodrizas crecieran m&aacute;s que las protegidas por efecto de la radiaci&oacute;n alta; sin embargo, se encontraron claras diferencias en el crecimiento entre protegidas y nodrizas; las primeras crecieron entre 5% y 27% m&aacute;s que las segundas. Este resultado es contrario a la hip&oacute;tesis que plantea que las especies protegidas, que son especies con crecimiento lento (Grime, 1977), presentan TRC m&aacute;s bajas que las especies nodrizas (sensu Grime y Hunt, 1975), especies de crecimiento r&aacute;pido (Lambers y Poorter, 1992; Chapin <i>et al.,</i> 1993).</font></p>  	    <p align="justify"><font face="verdana" size="2">Por otra parte, el efecto positivo que tiene la nodriza sobre la supervivencia y crecimiento de las pl&aacute;ntulas de especies protegidas por la reducci&oacute;n de la radiaci&oacute;n ha sido bien documentado (Valiente&#45;Banuet y Ezcurra, 1991; Flores&#45;Mart&iacute;nez <i>et al.,</i> 1994). Sin embargo, en este trabajo se encontr&oacute; que las protegidas crecieron m&aacute;s en condiciones de luz alta; estos resultados son contrarios con otros estudios que mencionan que la reducci&oacute;n en la radiaci&oacute;n aumenta la supervivencia de las protegidas y tiene un efecto positivo en su crecimiento (Valiente&#45;Banuet y Ezcurra, 1991; Flores&#45;Mart&iacute;nez <i>et al.,</i> 1994; Palleiro <i>et al.,</i> 2006), pero concuerda con la expectativa de que radiaciones altas resultan en TRC altas (Mart&iacute;nez&#45;Berdeja y Valverde 2008; Miquelajauregui y Valverde, 2010).</font></p>  	    <p align="justify"><font face="verdana" size="2">Se considera que bajo el dosel de las nodrizas, las protegidas incrementan su supervivencia y crecimiento como resultado de una mayor disponibilidad de humedad (Valiente&#45;Banuet y Ezcurra, 1991; Flores&#45;Mart&iacute;nez <i>et al.,</i> 1994; Mart&iacute;nez&#45;Berdeja y Valverde, 2008; Miquelajauregui y Valverde, 2010). En este trabajo se encontr&oacute; que la humedad alta aument&oacute; el crecimiento en la mayor&iacute;a de las especies. Sin embargo, s&oacute;lo en las protegidas se encontr&oacute; que la interacci&oacute;n radiaci&oacute;n alta y humedad alta afect&oacute; positivamente el crecimiento; este resultado est&aacute; de acuerdo con los obtenidos por Miquelajauregui y Valverde (2010) en cact&aacute;ceas columnares.</font></p>  	    <p align="justify"><font face="verdana" size="2">Por efecto de la fertilidad alta (suelo debajo de dosel de <i>Acacia schaffneri),</i> las suculentas crecieron entre 23.5% y 30.4% m&aacute;s que las le&ntilde;osas; de hecho, &eacute;stas &uacute;ltimas disminuyeron su crecimiento en el suelo de dosel. El mayor crecimiento de las suculentas coincide con la hip&oacute;tesis que plantea que el aumento en fertilidad debajo del dosel de plantas adultas crea "islas de fertilidad" que facilitan y aumentan el crecimiento de pl&aacute;ntulas suculentas que crecen bajo su sombra (Garc&iacute;a&#45;Moya y McKell, 1970; Franco y Nobel, 1989; Valiente&#45;Banuet <i>et al.,</i> 1991). Tambi&eacute;n coincide con lo reportado por Castillo <i>et al.</i> (2010) quienes encontraron que la supervivencia y las tasas de crecimiento del cactus columnar <i>Neobuxbaumia mezcalaensis</i> fueron altas y positivamente relacionadas con el incremento de la distancia filogen&eacute;tica a diferentes especies nodrizas en el valle de Tehuac&aacute;n&#45;Cuicatl&aacute;n; es decir, el efecto nodriza es mayor cuando crece bajo el dosel de especies no emparentadas.</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">El menor crecimiento de los arbustos le&ntilde;osos en el suelo obtenido debajo de dosel de <i>Acacia schaffneri</i> coincide con Puerta&#45;Pi&ntilde;ero <i>et al.</i> (2006), quienes encontraron que las pl&aacute;ntulas de <i>Quercus ilex</i> crecieron menos en suelo con mayor N, P y K obtenido debajo de individuos adultos de <i>Q. ilex</i> (considerados como plantas nodriza), que en suelos de espacios abiertos con menor cantidad de nutrientes. Es probable que los suelos debajo de <i>A. schaffneri</i> y de <i>Q. ilex</i> contengan pat&oacute;genos que inhiban el crecimiento de las pl&aacute;ntulas de sus mismas especies y de otras arbustivas emparentadas, lo anterior basado en Webb <i>et al.</i> (2006), quienes encontraron que los pat&oacute;genos pueden infectar hospederos emparentados debido a que las barreras contra pat&oacute;genos son con frecuencia filogen&eacute;ticamente conservadas.</font></p>  	    <p align="justify"><font face="verdana" size="2">Se puede suponer, que la acci&oacute;n ben&eacute;fica de la sombra del dosel de las le&ntilde;osas sobre las suculentas est&aacute; mediada por la variaci&oacute;n temporal que presenta la precipitaci&oacute;n (Tielb&ouml;rger y Kadmon, 2000), cuando en los sitios abiertos hay d&eacute;ficit de humedad; sin embargo, en los periodos con lluvias abundantes la acci&oacute;n ben&eacute;fica del dosel se convierte en una limitante de acceso a la luz en las protegidas (Franco y Nobel, 1989), por lo que en ese caso la interacci&oacute;n ser&iacute;a de competencia m&aacute;s que de facilitaci&oacute;n (Holmgren <i>et al.,</i> 1997).</font></p>  	    <p align="justify"><font face="verdana" size="2">Otra consideraci&oacute;n importante es que las suculentas al presentar mayor crecimiento que las nodrizas, pueden resultar en una r&aacute;pida ocupaci&oacute;n del espacio y por lo tanto, sea una ventaja competitiva (Grime y Hunt, 1975), como lo encontraron Flores y Yeaton (2000) en <i>Opuntia streptacantha,</i> que en la fase de pl&aacute;ntulas se desempe&ntilde;an como protegidas y en la fase de adultas se comportan como especies competitivamente superiores y reemplazan a su nodriza <i>(Acacia schaffneri).</i></font></p>  	    <p align="justify"><font face="verdana" size="2"><i>Cociente del &aacute;rea fotosint&eacute;tica</i> (CAF). La limitaci&oacute;n de luz aumenta la supervivencia de las protegidas (Valiente&#45;Banuet y Ezcurra, 1991; Flores&#45;Mart&iacute;nez <i>et al.,</i> 1994), pero, al disminuir la luz, tambi&eacute;n disminuye su crecimiento (Sack, 2004). Las plantas que crecen en ambientes sombreados responden a esta condici&oacute;n asignando m&aacute;s biomasa a los &oacute;rganos fotosint&eacute;ticos para incrementar el &aacute;rea de exposici&oacute;n y adquirir m&aacute;s luz (Villar <i>et al.,</i> 2008); es decir, presentan un CAF alto, lo que maximiza la intercepci&oacute;n de luz (Poorter y Van der Werf, 1998; Quero <i>et al.,</i> 2008). Entonces la asignaci&oacute;n de recursos al &aacute;rea fotosint&eacute;tica se convierte en un factor clave en la eficiencia para cosechar luz en las pl&aacute;ntulas que crecen debajo del dosel de nodrizas (Bazzaz y Wayne, 1994). En este estudio todas las especies presentaron un CAF mayor en la radiaci&oacute;n baja que en la alta; estos resultados son consistentes con los encontrados en otros trabajos (Walters <i>et al.,</i> 1993; Poorter <i>et al.,</i> 1995; Reich <i>et al.,</i> 1998; Walters y Reich, 1999; S&aacute;nchez&#45;G&oacute;mez <i>et al.,</i> 2006; Portsmouth y Niinemets, 2007). Sin embargo, en comparaci&oacute;n con las protegidas, las nodrizas realizaron menos ajustes morfol&oacute;gicos (tuvieron menor CAF) en el nivel bajo de radiaci&oacute;n. Las nodrizas presentaron valores del CAF hasta dos veces menores que las protegidas, por lo que las segundas fueron m&aacute;s eficientes en la captura de luz bajo condiciones de radiaci&oacute;n baja (Poorter, 1999).</font></p>  	    <p align="justify"><font face="verdana" size="2"><i>Tasa de asimilaci&oacute;n neta</i> (TAN). En todas las especies la TAN fue mayor en la radiaci&oacute;n alta que en la baja. Sin embargo, las nodrizas expusieron valores de la TAN hasta dos veces mayores que las protegidas. Una TAN alta es vital para especies que crecen en espacios abiertos con demandas de luz altas, donde son importantes las adaptaciones fisiol&oacute;gicas que les ayudan a equilibrar la capacidad fotosint&eacute;tica y los gastos en la respiraci&oacute;n (Strauss&#45;Debenedetti y Bazzaz, 1991; Montgomery, 2004). Esta es una caracter&iacute;stica fisiol&oacute;gica de especies adaptadas a niveles de radiaci&oacute;n altos (Pons, 1977; Valladares <i>et al.,</i> 2002; Souza y V&aacute;lio, 2003; Montgomery, 2004; Portsmuth y Niinemets, 2007). Adem&aacute;s de la luz, la fertilidad fue clave en las diferencias fisiol&oacute;gicas entre especies. En la mayor&iacute;a de las nodrizas, el suelo de fertilidad baja increment&oacute; la TAN, mientras que en las protegidas no fueron afectadas. Esta condici&oacute;n ya ha sido encontrada en especies que se establecen en espacios abiertos con suelos pobres, como en la sabana brasile&ntilde;a (Hoffmann y Franco, 2003).</font></p>  	    <p align="justify"><font face="verdana" size="2">Las nodrizas presentaron mayores cambios debidos al componente fisiol&oacute;gico (TAN) y, en las protegidas fue el componente morfol&oacute;gico (CAF). Estos resultados est&aacute;n de acuerdo con otros autores (Poorter y Van der Werf, 1998; Lambers <i>et al.,</i> 1998; Veneklaas y Poorter, 1998; Montgomery, 2004), en que la TAN tiene una contribuci&oacute;n importante con variaci&oacute;n de la TRC de especies que crecen en intensidades altas de luz, mientras que el CAF es el componente que m&aacute;s contribuye a la variaci&oacute;n de la TRC en ambientes sombreados. El crecimiento de las nodrizas present&oacute; una correlaci&oacute;n positiva con el componente fisiol&oacute;gico (TAN); mientras que en las protegidas fue negativa y ambos componentes (CAF y TAN), contribuyeron en la variaci&oacute;n de la tasa relativa de crecimiento. Este balance puede indicar que las protegidas se adaptan tanto a ambientes sombreados como iluminados (i.e. diferentes condiciones de radiaci&oacute;n solar), por lo que pueden explotar mayor cantidad de recursos (Poorter y Garnier, 1999; Portsmuth y Niinemets, 2007). Es probable que estas especies, en la fase de pl&aacute;ntula, se comporten m&aacute;s como especies tolerantes a la sombra que como especies adaptadas a la sombra (Valladares <i>et al.,</i> 2002; Niinemets y Valladares, 2004). Adem&aacute;s, presentaron mayor adaptaci&oacute;n a suelos ricos en nutrimentos, una caracter&iacute;stica importante en especies que aumentan su cosecha de luz (mayor CAF), al establecerse bajo el dosel de otras especies (Portsmuth y Niinemets, 2006).</font></p>  	    <p align="justify"><font face="verdana" size="2"><i>Cociente ra&iacute;z/v&aacute;stago</i> (C:R/V). Se encontr&oacute; una clara tendencia en la mayor&iacute;a de las especies en asignar m&aacute;s biomasa a la ra&iacute;z en el suelo de menor fertilidad. Estos resultados son compatibles con otras observaciones (Huante <i>et al.,</i> 1995; Portsmuth y Niinemets, 2007; Villar <i>et al.,</i> 2008). En contraste con las protegidas, las nodrizas presentaron los valores m&aacute;s altos del cociente ra&iacute;z/v&aacute;stago (C:R/V). Un C:R/V alto indica que las plantas asignan m&aacute;s biomasa a la ra&iacute;z, lo que maximiza la toma de nutrimentos en suelos con fertilidad limitada (Tilman, 1988). En los espacios abiertos las plantas deben establecer ra&iacute;ces profundas que les asegure la adquisici&oacute;n de agua, espacio, luz y nutrimentos. Desde la perspectiva ecol&oacute;gica, las plantas con mayor proporci&oacute;n de biomasa en la ra&iacute;z tienen un crecimiento m&aacute;s lento; sin embargo, obtienen ventajas como una mayor superficie de absorci&oacute;n y mayor supervivencia en h&aacute;bitats donde los recursos como el agua y los nutrimentos son limitados (Villar <i>et al.,</i> 2008).</font></p>  	    <p align="justify"><font face="verdana" size="2"><i>Fluorescencia de la clorofila.</i> Las reacciones fotoqu&iacute;micas de la fotos&iacute;ntesis son sensibles a la radiaci&oacute;n alta, lo que afecta la eficiencia fotosint&eacute;tica potencial y actual del fotosistema II (osmond, 1994), por otro lado, a la reducci&oacute;n de la capacidad fotoqu&iacute;mica total se le conoce como fotoinhibici&oacute;n (Ribeiro <i>et al.,</i> 2005). La eficiencia fotosint&eacute;tica potencial (EFP) de una planta saludable presenta valores de 0.8, y valores menores indican estr&eacute;s en plantas por exceso de luz (Cavender&#45;Bares y Bazzaz, 2004). En este trabajo, los valores de EFP oscilaron alrededor de 0.8, por lo que ninguna especie present&oacute; fotoinhibici&oacute;n como respuesta a la radiaci&oacute;n alta (Cavender&#45;Bares y Bazzaz, 2004).</font></p>  	    <p align="justify"><font face="verdana" size="2">La densidad de flujo de fotones para la fotos&iacute;ntesis (DFFF) de los niveles de luz afect&oacute; la eficiencia fotosint&eacute;tica actual (EFA) y la tasa de transporte de electrones (TTE). Las nodrizas presentaron menor EFA que las protegidas en el tratamiento de luz alta. Estos resultados est&aacute;n de acuerdo con los encontrados en especies que crecen en sitios abiertos y debajo de arbustos (Souza <i>et al.,</i> 2009). Frecuentemente, especies arb&oacute;reas adaptadas a espacios abiertos presentan menor EFA en contraste con especies de ambientes sombreados (Ribeiro et al., 2005). Adem&aacute;s, en este estudio, las protegidas mostraron valores de EFA superiores a los encontrados en otras protegidas (Hern&aacute;ndez&#45;Gonz&aacute;lez y Briones, 2007).</font></p>  	    <p align="justify"><font face="verdana" size="2">Los valores de la tasa de transporte de electrones (TTE) m&aacute;s altos fueron encontrados en condiciones de irradiaci&oacute;n alta, y como se esperaba, las nodrizas presentaron TTE mayor que las protegidas. Estos resultados son similares a los encontrados en especies de &aacute;rboles tropicales de diferentes estadios sucesionales (Ribeiro <i>et al.,</i> 2005). Por otra parte, en <i>Opuntia jaliscana</i> la humedad baja fue la que m&aacute;s disminuy&oacute; la TTE. Se conoce que el estr&eacute;s h&iacute;drico aumenta la competencia por el uso de los electrones, entre el proceso de fotorespiraci&oacute;n y la asimilaci&oacute;n de CO<sub>2</sub> (Flexas <i>et al.,</i> 1999); estos resultados coinciden con los encontrados por Flexas <i>et al.</i> (2002) en plantas C<sub>3</sub> en condiciones de campo.</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Conclusiones</b></font></p>  	    <p align="justify"><font face="verdana" size="2">En este trabajo es evidente que las nodrizas presentaron caracter&iacute;sticas morfol&oacute;gicas y fisiol&oacute;gicas de especies adaptadas a sitios abiertos y soleados, donde prevalecen condiciones limitantes de humedad y fertilidad; mientras que las suculentas presentaron caracter&iacute;sticas de especies protegidas, adaptadas a la sombra, con humedad y fertilidad altas. Las diferentes respuestas ecofisiol&oacute;gicas, entre nodrizas y protegidas, sugieren que pueden tener capacidad competitiva contrastante, y la segregaci&oacute;n de su nicho de regeneraci&oacute;n est&aacute; relacionada con la disponibilidad de recursos. Tales diferencias pueden desempe&ntilde;ar un papel importante en el &eacute;xito de la coexistencia entre estas especies que forman interacciones de facilitaci&oacute;n, lo que organiza la din&aacute;mica de poblaciones en comunidades vegetales del Altiplano Mexicano.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Agradecimientos</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Agradecemos el apoyo al Consejo Nacional para la Ciencia y la Tecnolog&iacute;a, al Programa Multidisciplinario de Posgrado en Ciencias Ambientales de la Universidad Aut&oacute;noma de San Luis Potos&iacute;, al Instituto de Investigaci&oacute;n en Zonas Des&eacute;rticas, al Instituto Potosino de Investigaci&oacute;n Cient&iacute;fica y Tecnol&oacute;gica, al Dr. Pablo Delgado y a la Dra. Olivia Hern&aacute;ndez por su apoyo para las mediciones y an&aacute;lisis de la fluorescencia de la clorofila II, a Ruth Mireles, Miguel Cortina, Yakanqui Romo y Jaciel Flores por su ayuda para la toma de datos, a Oscar Carvajal por su apoyo en la conversi&oacute;n de las figuras, a Edgar L&oacute;pez por su revisi&oacute;n en la traducci&oacute;n del resumen en ingl&eacute;s, as&iacute; como a dos revisores an&oacute;nimos por sus comentarios y sugerencias que ayudaron a mejorar el escrito.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Literatura citada</b></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Barnes P.W. y Archer S. 1999. Tree&#45;shrub interactions in subtropical savanna parkland: competition or facilitation? <i>Journal of Vegetation Science</i> <b>10</b>:525&#45;536.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1793994&pid=S2007-4298201300030000700001&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    ]]></body>
<body><![CDATA[<!-- ref --><p align="justify"><font face="verdana" size="2">Brown J.R. y Archer S. 1987. Woody plant seed dispersal and gap formation in a North American subtropical savanna: the role of domestic herbivores. <i>Vegetatio</i> <b>73</b>:73&#45;80.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1793996&pid=S2007-4298201300030000700002&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Bush J.K. y Van Auken O.W. 1987. Light requirements for growth of <i>Prosopis glandulosa</i> seedlings. <i>Southwestern Naturalist</i> <b>32</b>:469&#45;473.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1793998&pid=S2007-4298201300030000700003&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Butterfield B.J. y Briggs J.M. 2011. Regeneration niche differentiates functional strategies of desert woody plant species. <i>Oecologia</i> <b>165</b>:477&#45;487.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794000&pid=S2007-4298201300030000700004&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Callaway R.M. 1995. Positive interactions among plants. <i>The Botanical Review</i> <b>61</b>:306&#45;349.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794002&pid=S2007-4298201300030000700005&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Cardillo E. y Bernal C.J. 2006. Morphological response and growth of cork oak <i>(Quercus suber</i> L.) seedlings at different shade levels. <i>Forest Ecology and Management</i> <b>222</b>:296&#45;301.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794004&pid=S2007-4298201300030000700006&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    ]]></body>
<body><![CDATA[<!-- ref --><p align="justify"><font face="verdana" size="2">Castillo J.P, Verd&uacute; M. y Valiente&#45;Banuet A. 2010. Neighborhood phylodiversity affects plant performance. <i>Ecology</i> <b>91</b>:3656&#45;3663.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794006&pid=S2007-4298201300030000700007&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Cavender&#45;Bares J. y Bazzaz F.A. 2004. From leaves to ecosystems: Using chlorophyll fluorescence to assess photosynthesis and plant function in ecological studies. En: Papageorgiou G.C. y Govindjee. Eds. <i>Chlorophyll a Fluorescence: A Signature of Photosynthesis,</i> pp. 737&#45;755, Springer, Dordrecht.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794008&pid=S2007-4298201300030000700008&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Chapin III F.S., Moilanen L. y Kielland K. 1993. Preferential use of organic nitrogen for growth by a non&#45;mycorrhizal arctic sedge. <i>Nature</i> <b>361</b>:150&#45;153.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794010&pid=S2007-4298201300030000700009&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Cody M.L. 1993. Do cholla cacti <i>(Opuntia</i> spp., subgenus <i>Cylin&#45;dropuntia)</i> use or need nurse plants in the Mojave Desert? <i>Journal of Arid Environments</i> <b>24</b>:139&#45;154.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794012&pid=S2007-4298201300030000700010&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Domingo F., Villagarc&iacute;a L., Brenner A.J. y Puigdef&aacute;bregas J. 1999. Evapotranspiration model for semi&#45;arid shrublands tested against data from SE Spain. <i>Agricultural and Forest Meteorology</i> <b>95</b>:67&#45;84.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794014&pid=S2007-4298201300030000700011&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    ]]></body>
<body><![CDATA[<!-- ref --><p align="justify"><font face="verdana" size="2">Ehleringer J. 1981. Leaf absorptances of Mohave and Sonoran Deserts plants. <i>Oecologia</i> <b>49</b>:366&#45;370.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794016&pid=S2007-4298201300030000700012&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Evans G.C. 1972. <i>The Quantitative Analysis of Plant growth.</i> University of California Press, Berkeley.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794018&pid=S2007-4298201300030000700013&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Flexas J., Escalona J.M. y Medrano H.1999. Water stress induces different levels of photosynthesis and electron transport rate regulation in grapevines. <i>Plant, Cell and Environment</i> <b>22</b>:39&#45;48.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794020&pid=S2007-4298201300030000700014&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Flexas J., Escalona J.M., Evain S., Gul&iacute;as J., Moya I., Osmond C.B. y Medrano H. 2002. Steady&#45;state chlorophyll fluorescence (Fs) measurements as a tool to follow variations of net CO<sub>2</sub> assimilation and stomatal conductance during water&#45;stress in C<sub>3</sub> plants. <i>Physiologia Plantarum</i> <b>114</b>:231&#45;240.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794022&pid=S2007-4298201300030000700015&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Flores J. y Jurado E. 2003. Are nurse&#45;prot&eacute;g&eacute; interactions more common among plants from arid environments? <i>Journal of Vegetation Science</i> <b>14</b>:911&#45;916.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794024&pid=S2007-4298201300030000700016&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    ]]></body>
<body><![CDATA[<!-- ref --><p align="justify"><font face="verdana" size="2">Flores&#45;Mart&iacute;nez A., Ezcurra E. y S&aacute;nchez&#45;Col&oacute;n S. 1994. Effect on <i>Neobuxbaumia tetetzo</i> on growth and fecundity of its nurse plant <i>Mimosa luisana. Journal of Ecology</i> <b>82</b>:325&#45;330.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794026&pid=S2007-4298201300030000700017&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Flores F.J.L y Yeaton H.R.I. 2000. La importancia de la competencia en la organizaci&oacute;n de las comunidades vegetales en el Altiplano Mexicano. <i>Interciencia</i> <b>25</b>:365&#45;371.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794028&pid=S2007-4298201300030000700018&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Franco A.C. y Nobel PS.1989. Effect of nurse plants on the micro&#45;habitat and growth of cacti. <i>Journal of Ecology</i> <b>77</b>:870&#45;886.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794030&pid=S2007-4298201300030000700019&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Garc&iacute;a&#45;Moya E. y McKell C.M. 1970. Contribution of shrubs to the nitrogen economy of a desert&#45;wash plant community. <i>Ecology</i> <b>51</b>:81&#45;88.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794032&pid=S2007-4298201300030000700020&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">God&iacute;nez&#45;&Aacute;lvarez H., Valverde T. y Ortega&#45;Baes P. 2003. Demographic trends in the Cactaceae. <i>The Botanical Review</i> <b>69</b>:173&#45;203.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794034&pid=S2007-4298201300030000700021&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    ]]></body>
<body><![CDATA[<!-- ref --><p align="justify"><font face="verdana" size="2">Gon&ccedil;alvez J.F.C., Barreto D.C.S., Santos Junior U.M., Fernandes A.V., Sampaio P.T.B. y Buckeridge M.S. 2005. Growth, photosynthesis and stress indicators in young rosewood plants <i>(Aniba rosaeodora</i> Ducke) under different light intensities. <i>Brazilian Journal of Plant Physiology</i> <b>17</b>:325&#45;334.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794036&pid=S2007-4298201300030000700022&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Grime J.P 1977. Evidence for the existence of three primary strategies in plants and its relevance to ecological and evolutionary theory. <i>American Naturalist</i> <b>111</b>:1169&#45;1194.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794038&pid=S2007-4298201300030000700023&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Grime J.P y Hunt R. 1975. Relative growth&#45;rate; its range and adaptative significance in a local flora. <i>Journal of Ecology</i> <b>63</b>:393&#45;422.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794040&pid=S2007-4298201300030000700024&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Hern&aacute;ndez&#45;Gonz&aacute;lez O. y Briones V.O. 2007. Crassulacean acid metabolism photosynthesis in columnar cactus seedlings during ontogeny: the effect of light on nocturnal acidity accumulation and chlorophyll fluorescence. <i>American Journal of Botany</i> <b>94</b>:1344&#45;1351.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794042&pid=S2007-4298201300030000700025&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Hoffmann W.A. y Franco A.C. 2003. Comparative growth analysis of tropical forest and savanna woody plants using phylogenetically independent contrasts. <i>Journal of Ecology</i> <b>91</b>:475&#45;484.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794044&pid=S2007-4298201300030000700026&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    ]]></body>
<body><![CDATA[<!-- ref --><p align="justify"><font face="verdana" size="2">Holmgren M., Scheffer M. y Huston M.A. 1997. The interplay of facilitation and competition in plant communities. <i>Ecology</i> <b>78</b>:1966&#45;1975.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794046&pid=S2007-4298201300030000700027&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Huante P., Rinc&oacute;n E. y Chapin III F.S. 1995. Responses to phosphorus of contrasting successional tree&#45;seedling species from the tropical deciduous forest of Mexico. <i>Functional Ecology</i> <b>9</b>:760&#45;766.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794048&pid=S2007-4298201300030000700028&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">INEGI (Instituto Nacional de Estad&iacute;stica, Geograf&iacute;a e Inform&aacute;tica). 1981. <i>S&iacute;ntesis geogr&aacute;fica del estado de Jalisco.</i> Secretar&iacute;a de Planeaci&oacute;n y Presupuesto. M&eacute;xico, D.F.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794050&pid=S2007-4298201300030000700029&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">INEGI (Instituto Nacional de Estad&iacute;stica, Geograf&iacute;a e Inform&aacute;tica). 2002. <i>S&iacute;ntesis geogr&aacute;fica del estado de San Luis Potos&iacute;.</i> 2da. edici&oacute;n. Secretar&iacute;a de Planeaci&oacute;n y Presupuesto, M&eacute;xico. D.F.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794052&pid=S2007-4298201300030000700030&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Jandel Scientific. 1993. Sigma Scan/Image. Measurement Software for Windows. Jandel Scientific, San Rafael.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794054&pid=S2007-4298201300030000700031&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    ]]></body>
<body><![CDATA[<!-- ref --><p align="justify"><font face="verdana" size="2">Lambers H. y Poorter H. 1992. Inherent variation in growth rate between higher plants: A search for physiological causes and ecological consequences. <i>Advances in Ecology Research</i> <b>23</b>:187&#45;261.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794056&pid=S2007-4298201300030000700032&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Lambers H., Chapin III F.S. y Pons T.L. 1998. <i>Plant Physiological Ecology.</i> Springer&#45;Verlag, Nueva York.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794058&pid=S2007-4298201300030000700033&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Mart&iacute;nez&#45;Berdeja A. y Valverde T. 2008. Growth response of three globose cacti to radiation and soil moisture: An experimental test of the mechanism behind the nurse effect. <i>Journal of Arid Environments</i> <b>72</b>:1766&#45;1774.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794060&pid=S2007-4298201300030000700034&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Maxwell K. y Johnson G.N. 2000. Chlorophyll fluorescence &#45; a practical guide. <i>Journal of Experimental Botany</i> <b>51</b>:659&#45;668.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794062&pid=S2007-4298201300030000700035&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">McAuliffe J.R. 1988. Markovian dynamics of simple and complex desert plant communities. <i>American Naturalist</i> <b>131:</b> 459&#45;490.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794064&pid=S2007-4298201300030000700036&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    ]]></body>
<body><![CDATA[<!-- ref --><p align="justify"><font face="verdana" size="2">Miquelajauregui Y. y Valverde T. 2010. Survival and early growth of two congeneric cacti that differ in their level of rarity. <i>Journal of Arid Environments</i> <b>74</b>:1624&#45;1631.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794066&pid=S2007-4298201300030000700037&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Miranda F. y Hern&aacute;ndez X.E. 1963. Los tipos de vegetaci&oacute;n de M&eacute;xico y su clasificaci&oacute;n. <i>Bolet&iacute;n de la Sociedad Bot&aacute;nica de M&eacute;xico</i> <b>28</b>:29&#45;179.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794068&pid=S2007-4298201300030000700038&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Montgomery R. 2004. Relative importance of photosynthetic physiology and biomass allocation for tree seedling growth across a broad light gradient. <i>Tree Physiology</i> <b>24</b>:155&#45;167.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794070&pid=S2007-4298201300030000700039&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Niering W.A., Whittaker R.H. y Lowe C.H. 1963. The saguaro: a population in relation to environment. <i>Science</i> <b>142</b>:15&#45;23.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794072&pid=S2007-4298201300030000700040&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Niinemets &Uuml;. y Valladares F. 2004. Photosynthetic acclimation to simultaneous and interacting environmental stresses along natural light gradients: optimality and constraints. <i>Plant Biology</i> <b>6</b>:254&#45;268.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794074&pid=S2007-4298201300030000700041&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    ]]></body>
<body><![CDATA[<!-- ref --><p align="justify"><font face="verdana" size="2">Nobel PS. 1980. Morphology, nurse plants and minimum apical temperatures for young <i>Carnegiea gigantea. Botanical Gazette</i> <b>141</b>:188&#45;191.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794076&pid=S2007-4298201300030000700042&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Osmond C.B. 1994. What is photoinhibition? Some insights from comparisons of shade and sun plants. En: Baker N.R. y Bowyer J.R. Eds. <i>Photoinhibition: Molecular Mechanisms to the Field,</i> pp. 1&#45;24, Bios Scientific Publishers, Oxford.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794078&pid=S2007-4298201300030000700043&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Palleiro N., Mandujano M.C. y Golubov J. 2006. Aborted fruits of <i>Opuntia microdasys</i> (Cactaceae): insurance against reproductive failure. <i>American Journal of Botany</i> <b>93</b>:505&#45;511.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794080&pid=S2007-4298201300030000700044&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Pons T.L. 1977. An ecophysiological study in the field layer of ash coppice II. Experiment with <i>Geum urbanum</i> and <i>Cirsium pa</i><i>lustre</i> in different light intensities. <i>Acta Botanica Neerlandica</i> <b>26</b>:29&#45;42.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794082&pid=S2007-4298201300030000700045&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Poorter L. 1999. Growth responses of 15 rain&#45;forest tree species to a light gradient: the relative importance of morphological and physiological traits. <i>Functional Ecology</i> <b>13</b>:396&#45;410.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794084&pid=S2007-4298201300030000700046&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    ]]></body>
<body><![CDATA[<!-- ref --><p align="justify"><font face="verdana" size="2">Poorter H. y Garnier E. 1999. Ecological significance of relative growth rate and its components. En: Pugnaire F.I. y Valladares F. Eds. <i>Handbook of Functional Plant Ecology,</i> pp. 81&#45;120, CRC Press, Nueva York.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794086&pid=S2007-4298201300030000700047&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Poorter H. y Van der Werf A.A. 1998. Is inherent variation in RGR determined by LAR at low irradiance and by NAR at high irradiance? A review of herbaceous species. En: Lambers H., Poorter H. y van Vuuren M.M.I. Eds. <i>Inherent Variation in Plant Growth. Physiological Mechanisms and Ecological Consequences,</i> pp 309&#45;336, Backhuys Publishers, Leiden.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794088&pid=S2007-4298201300030000700048&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Poorter H., van de Vijver C.A.D.M., Boot R.G.A. y Lambers H. 1995. Growth and carbon economy of a fast&#45;growing and a slow&#45;growing grass species as dependent on nitrate supply. <i>Plant and Soil</i> <b>171</b>:217&#45;227.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794090&pid=S2007-4298201300030000700049&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Portsmuth A. y Niinemets &Uuml;. 2006. Interacting controls by light availability and nutrient supply on biomass allocation and growth of <i>Betula pendula</i> and <i>B. pubescens</i> seedling. <i>Forest Ecology and Management</i> <b>227</b>:122&#45;134.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794092&pid=S2007-4298201300030000700050&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Portsmuth A. y Niinemets &Uuml;. 2007. Structural and physiological plasticity in response to light and nutrients in five temperate deciduous woody species of contrasting shade tolerance. <i>Functional Ecology</i> <b>21</b>:61&#45;77.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794094&pid=S2007-4298201300030000700051&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    ]]></body>
<body><![CDATA[<!-- ref --><p align="justify"><font face="verdana" size="2">Puerta&#45;Pi&ntilde;ero C., G&oacute;mez J.M. y Zamora R. 2006. Species&#45;specific effects on topsoil development affect <i>Quercus ilex</i> seedling performance. <i>Acta Oecologica</i> <b>29</b>:65&#45;71.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794096&pid=S2007-4298201300030000700052&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Quero J.L., Villar R., Mara&ntilde;&oacute;n T., Zamora R., Vega D. y Sack L. 2008. Relating leaf photosynthetic rate to whole&#45;plant growth: drought and shade effects on seedlings of four <i>Quercus</i> species. <i>Functional Plant Biology</i> <b>35</b>:725&#45;737.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794098&pid=S2007-4298201300030000700053&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Reich P.B., Walters M.B., Tjoelker M.G., Vanderklein D. y Bus&#45;chena C. 1998. Photosynthesis and respiration rates depend on leaf and root morphology and nitrogen concentration in nine boreal tree species differing in relative growth rate. <i>Functional Ecology</i> <b>12</b>:395&#45;405.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794100&pid=S2007-4298201300030000700054&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Ribeiro R.V., Souza G.M., Oliveira R.F. y Machado E.C. 2005. Photosynthetic responses of tropical tree species from different successional groups under contrasting irradiance conditions. <i>Revista Brasileira de Bot&acirc;nica</i> <b>28</b>:149&#45;161.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794102&pid=S2007-4298201300030000700055&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Rzedowski J. 1966. Vegetaci&oacute;n del estado de San Luis Potos&iacute;, M&eacute;xico. <i>Acta Cient&iacute;fica Potosina</i> <b>5</b>:5&#45;291.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794104&pid=S2007-4298201300030000700056&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    ]]></body>
<body><![CDATA[<!-- ref --><p align="justify"><font face="verdana" size="2">Sack L. 2004. Responses of temperate woody seedlings to shade and drought: do trade&#45;offs limit potential niche differentiation? <i>Oikos</i> <b>107</b>:110&#45;127.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794106&pid=S2007-4298201300030000700057&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">S&aacute;nchez&#45;G&oacute;mez D., Valladares F. y Zavala M.A. 2006. Functional traits and plasticity in response to light in seedlings of four Iberian forest tree species. <i>Tree Physiology</i> <b>26</b>:1425&#45;1433.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794108&pid=S2007-4298201300030000700058&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">SAS Institute Inc. 2002. SAS/STAT software, version 9. SAS Institute, Inc., Cary.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794110&pid=S2007-4298201300030000700059&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Souza R.P. y V&aacute;lio I.F.M. 2003. Seedling growth of fifteen Brazilian tropical tree species differing in successional status. <i>Revista Brasileira de Bot&acirc;nica</i> <b>26</b>:35&#45;47.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794112&pid=S2007-4298201300030000700060&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Souza G.M., Balmant B.D., V&iacute;tolo H.F., Gomes K.B.P, Florentino T.M., Catuchi T. A. y Vieira W.L. 2009. Estrat&eacute;gias de utiliza&ccedil;&atilde;o de luz e estabilidade do desenvolvimento de pl&aacute;ntulas de <i>Cordia superba</i> Cham. (Boraginaceae) crescidas em diferentes ambientes luminosos. <i>Acta Botanica Brasilica</i> <b>23</b>:474&#45;485.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794114&pid=S2007-4298201300030000700061&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    ]]></body>
<body><![CDATA[<!-- ref --><p align="justify"><font face="verdana" size="2">Strauss&#45;Debenedetti S. y Bazzaz F.A. 1991. Plasticity and acclimation to light in tropical Moraceae of different successional positions. <i>Oecologia</i> <b>87</b>:377&#45;387.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794116&pid=S2007-4298201300030000700062&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Tielb&ouml;rger K. y Kadmon R. 2000. Temporal environmental variation tips the balance between facilitation and interference in desert plants. <i>Ecology</i> <b>81</b>:1544&#45;1553.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794118&pid=S2007-4298201300030000700063&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Tilman D. 1988. <i>Plant Strategies and the Dynamics and Structure of</i> <i>Plant Communities.</i> Princeton university Press, Nueva Jersey.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794120&pid=S2007-4298201300030000700064&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Tirado R. y Pugnaire F.I. 2003. Shrub spatial aggregation and consequences for reproductive success. <i>Oecologia</i> <b>136</b>:296&#45;301.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794122&pid=S2007-4298201300030000700065&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Valiente&#45;Banuet A. y Ezcurra E. 1991. Shade as cause of the association between the cactus <i>Neobuxbaumia tetetzo</i> and the nurse plant <i>Mimosa luisana</i> in the Tehuac&aacute;n Valley, M&eacute;xico. <i>Journal of Ecology</i> <b>79</b>:961&#45;971.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794124&pid=S2007-4298201300030000700066&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    ]]></body>
<body><![CDATA[<!-- ref --><p align="justify"><font face="verdana" size="2">Valiente&#45;Banuet A. y Verd&uacute; M. 2007. Facilitation can increase the phylogenetic diversity of plant communities. <i>Ecology Letters</i> <b>10</b>:1029&#45;1036.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794126&pid=S2007-4298201300030000700067&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Valiente&#45;Banuet A., Vite F. y Zavala&#45;Hurtado J.A. 1991. Interaction between the cactus <i>Neobuxbaumia tetetzo</i> and the nurse shrub <i>Mimosa luisana. Journal of Vegetation Science</i> <b>2</b>:11&#45;14.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794128&pid=S2007-4298201300030000700068&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Valladares F., Skillman J.B. y Pearcy R.W. 2002. Convergence in light capture efficiencies among tropical forest understory plants with contrasting crown architectures: a case of morphological compensation. <i>American Journal of Botany</i> <b>89</b>:1275&#45;1284.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794130&pid=S2007-4298201300030000700069&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Veneklaas E.J. y Poorter L. 1998. Growth and carbon partitioning of tropical tree seedlings in contrasting light environments. En: Lambers H, Poorter H. y van Vuuren M.M.I. Eds. <i>Inherent Variation in Plant Growth,</i> pp. 337&#45;361, Backhuys Publishers, Leiden.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794132&pid=S2007-4298201300030000700070&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Villar R., Ruiz&#45;Robleto J,. Quero J.L., Poorter H., Valladares F. y Mara&ntilde;on T. 2008. Tasas de crecimiento en especies le&ntilde;osas: aspectos funcionales e implicaciones ecol&oacute;gicas. En: Valladares F. Ed. <i>Ecolog&iacute;a del Bosque Mediterr&aacute;neo en un Mundo Cambiante,</i> pp. 191&#45;227, Ministerio de Medio Ambiente, EGRAF, S.A., Madrid.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794134&pid=S2007-4298201300030000700071&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    ]]></body>
<body><![CDATA[<!-- ref --><p align="justify"><font face="verdana" size="2">Walters M.B. y Reich P.B. 1999. Low&#45;light carbon balance and shade tolerance in the seedlings of woody plants: do winter deciduous and broad&#45;leaved evergreen species differ? <i>New Phytologist</i> <b>143</b>:143&#45;154.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794136&pid=S2007-4298201300030000700072&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Walters M.B., Kruger E.L. y Reich P.B. 1993. Growth, biomass distribution and CO<sub>2</sub> exchange of northern hardwood seedlings in high and low light: relationships with successional status and shade tolerance. <i>Oecologia</i> <b>94</b>:7&#45;16.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794138&pid=S2007-4298201300030000700073&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">Webb C.O., Gilbert G.S., y Donoghue M.J. 2006. Phylodiversity&#45;dependent seedling mortality, size structure, and disease in a Bornean rain forest. <i>Ecology</i> <b>87(Suppl.)</b>:S123&#45;S131.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1794140&pid=S2007-4298201300030000700074&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>      ]]></body>
<back>
<ref-list>
<ref id="B1">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Barnes]]></surname>
<given-names><![CDATA[P.W.]]></given-names>
</name>
<name>
<surname><![CDATA[Archer]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Tree-shrub interactions in subtropical savanna parkland: competition or facilitation?]]></article-title>
<source><![CDATA[Journal of Vegetation Science]]></source>
<year>1999</year>
<volume>10</volume>
<page-range>525-536</page-range></nlm-citation>
</ref>
<ref id="B2">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Brown]]></surname>
<given-names><![CDATA[J.R.]]></given-names>
</name>
<name>
<surname><![CDATA[Archer]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Woody plant seed dispersal and gap formation in a North American subtropical savanna: the role of domestic herbivores]]></article-title>
<source><![CDATA[Vegetatio]]></source>
<year>1987</year>
<volume>73</volume>
<page-range>73-80</page-range></nlm-citation>
</ref>
<ref id="B3">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bush]]></surname>
<given-names><![CDATA[J.K.]]></given-names>
</name>
<name>
<surname><![CDATA[Van Auken]]></surname>
<given-names><![CDATA[O.W.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Light requirements for growth of Prosopis glandulosa seedlings]]></article-title>
<source><![CDATA[Southwestern Naturalist]]></source>
<year>1987</year>
<volume>32</volume>
<page-range>469-473</page-range></nlm-citation>
</ref>
<ref id="B4">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Butterfield]]></surname>
<given-names><![CDATA[B.J.]]></given-names>
</name>
<name>
<surname><![CDATA[Briggs]]></surname>
<given-names><![CDATA[J.M.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Regeneration niche differentiates functional strategies of desert woody plant species]]></article-title>
<source><![CDATA[Oecologia]]></source>
<year>2011</year>
<volume>165</volume>
<page-range>477-487</page-range></nlm-citation>
</ref>
<ref id="B5">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Callaway]]></surname>
<given-names><![CDATA[R.M.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Positive interactions among plants]]></article-title>
<source><![CDATA[The Botanical Review]]></source>
<year>1995</year>
<volume>61</volume>
<page-range>306-349</page-range></nlm-citation>
</ref>
<ref id="B6">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Cardillo]]></surname>
<given-names><![CDATA[E.]]></given-names>
</name>
<name>
<surname><![CDATA[Bernal]]></surname>
<given-names><![CDATA[C.J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Morphological response and growth of cork oak (Quercus suber L.) seedlings at different shade levels]]></article-title>
<source><![CDATA[Forest Ecology and Management]]></source>
<year>2006</year>
<volume>222</volume>
<page-range>296-301</page-range></nlm-citation>
</ref>
<ref id="B7">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Castillo]]></surname>
<given-names><![CDATA[J.P]]></given-names>
</name>
<name>
<surname><![CDATA[Verdú]]></surname>
<given-names><![CDATA[M.]]></given-names>
</name>
<name>
<surname><![CDATA[Valiente-Banuet]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Neighborhood phylodiversity affects plant performance]]></article-title>
<source><![CDATA[Ecology]]></source>
<year>2010</year>
<volume>91</volume>
<page-range>3656-3663</page-range></nlm-citation>
</ref>
<ref id="B8">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Cavender-Bares]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
<name>
<surname><![CDATA[Bazzaz]]></surname>
<given-names><![CDATA[F.A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[From leaves to ecosystems: Using chlorophyll fluorescence to assess photosynthesis and plant function in ecological studies]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Papageorgiou]]></surname>
<given-names><![CDATA[G.C.]]></given-names>
</name>
<name>
<surname><![CDATA[Govindjee]]></surname>
</name>
</person-group>
<source><![CDATA[Chlorophyll a Fluorescence: A Signature of Photosynthesis]]></source>
<year>2004</year>
<page-range>737-755</page-range><publisher-loc><![CDATA[Dordrecht ]]></publisher-loc>
<publisher-name><![CDATA[Springer]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B9">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Chapin III]]></surname>
<given-names><![CDATA[F.S.]]></given-names>
</name>
<name>
<surname><![CDATA[Moilanen]]></surname>
<given-names><![CDATA[L.]]></given-names>
</name>
<name>
<surname><![CDATA[Kielland]]></surname>
<given-names><![CDATA[K.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Preferential use of organic nitrogen for growth by a non-mycorrhizal arctic sedge]]></article-title>
<source><![CDATA[Nature]]></source>
<year>1993</year>
<volume>361</volume>
<page-range>150-153</page-range></nlm-citation>
</ref>
<ref id="B10">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Cody]]></surname>
<given-names><![CDATA[M.L.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Do cholla cacti (Opuntia spp., subgenus Cylin-dropuntia) use or need nurse plants in the Mojave Desert?]]></article-title>
<source><![CDATA[Journal of Arid Environments]]></source>
<year>1993</year>
<volume>24</volume>
<page-range>139-154</page-range></nlm-citation>
</ref>
<ref id="B11">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Domingo]]></surname>
<given-names><![CDATA[F.]]></given-names>
</name>
<name>
<surname><![CDATA[Villagarcía]]></surname>
<given-names><![CDATA[L.]]></given-names>
</name>
<name>
<surname><![CDATA[Brenner]]></surname>
<given-names><![CDATA[A.J.]]></given-names>
</name>
<name>
<surname><![CDATA[Puigdefábregas]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Evapotranspiration model for semi-arid shrublands tested against data from SE Spain]]></article-title>
<source><![CDATA[Agricultural and Forest Meteorology]]></source>
<year>1999</year>
<volume>95</volume>
<page-range>67-84</page-range></nlm-citation>
</ref>
<ref id="B12">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ehleringer]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Leaf absorptances of Mohave and Sonoran Deserts plants]]></article-title>
<source><![CDATA[Oecologia]]></source>
<year>1981</year>
<volume>49</volume>
<page-range>366-370</page-range></nlm-citation>
</ref>
<ref id="B13">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Evans]]></surname>
<given-names><![CDATA[G.C.]]></given-names>
</name>
</person-group>
<source><![CDATA[The Quantitative Analysis of Plant growth]]></source>
<year>1972</year>
<publisher-loc><![CDATA[Berkeley ]]></publisher-loc>
<publisher-name><![CDATA[University of California Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B14">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Flexas]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
<name>
<surname><![CDATA[Escalona]]></surname>
<given-names><![CDATA[J.M.]]></given-names>
</name>
<name>
<surname><![CDATA[Medrano]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Water stress induces different levels of photosynthesis and electron transport rate regulation in grapevines]]></article-title>
<source><![CDATA[Plant, Cell and Environment]]></source>
<year>1999</year>
<volume>22</volume>
<page-range>39-48</page-range></nlm-citation>
</ref>
<ref id="B15">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Flexas]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
<name>
<surname><![CDATA[Escalona]]></surname>
<given-names><![CDATA[J.M.]]></given-names>
</name>
<name>
<surname><![CDATA[Evain]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
<name>
<surname><![CDATA[Gulías]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
<name>
<surname><![CDATA[Moya]]></surname>
<given-names><![CDATA[I.]]></given-names>
</name>
<name>
<surname><![CDATA[Osmond]]></surname>
<given-names><![CDATA[C.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Medrano]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Steady-state chlorophyll fluorescence (Fs) measurements as a tool to follow variations of net CO2 assimilation and stomatal conductance during water-stress in C3 plants]]></article-title>
<source><![CDATA[Physiologia Plantarum]]></source>
<year>2002</year>
<volume>114</volume>
<page-range>231-240</page-range></nlm-citation>
</ref>
<ref id="B16">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Flores]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
<name>
<surname><![CDATA[Jurado]]></surname>
<given-names><![CDATA[E.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Are nurse-protégé interactions more common among plants from arid environments?]]></article-title>
<source><![CDATA[Journal of Vegetation Science]]></source>
<year>2003</year>
<volume>14</volume>
<page-range>911-916</page-range></nlm-citation>
</ref>
<ref id="B17">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Flores-Martínez]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
<name>
<surname><![CDATA[Ezcurra]]></surname>
<given-names><![CDATA[E.]]></given-names>
</name>
<name>
<surname><![CDATA[Sánchez-Colón]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Effect on Neobuxbaumia tetetzo on growth and fecundity of its nurse plant Mimosa luisana]]></article-title>
<source><![CDATA[Journal of Ecology]]></source>
<year>1994</year>
<volume>82</volume>
<page-range>325-330</page-range></nlm-citation>
</ref>
<ref id="B18">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Flores]]></surname>
<given-names><![CDATA[F.J.L]]></given-names>
</name>
<name>
<surname><![CDATA[Yeaton]]></surname>
<given-names><![CDATA[H.R.I.]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[La importancia de la competencia en la organización de las comunidades vegetales en el Altiplano Mexicano]]></article-title>
<source><![CDATA[Interciencia]]></source>
<year>2000</year>
<volume>25</volume>
<page-range>365-371</page-range></nlm-citation>
</ref>
<ref id="B19">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Franco]]></surname>
<given-names><![CDATA[A.C.]]></given-names>
</name>
<name>
<surname><![CDATA[Nobel]]></surname>
<given-names><![CDATA[PS]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Effect of nurse plants on the micro-habitat and growth of cacti]]></article-title>
<source><![CDATA[Journal of Ecology]]></source>
<year>1989</year>
<volume>77</volume>
<page-range>870-886</page-range></nlm-citation>
</ref>
<ref id="B20">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[García-Moya]]></surname>
<given-names><![CDATA[E.]]></given-names>
</name>
<name>
<surname><![CDATA[McKell]]></surname>
<given-names><![CDATA[C.M.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Contribution of shrubs to the nitrogen economy of a desert-wash plant community]]></article-title>
<source><![CDATA[Ecology]]></source>
<year>1970</year>
<volume>51</volume>
<page-range>81-88</page-range></nlm-citation>
</ref>
<ref id="B21">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Godínez-Álvarez]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
<name>
<surname><![CDATA[Valverde]]></surname>
<given-names><![CDATA[T.]]></given-names>
</name>
<name>
<surname><![CDATA[Ortega-Baes]]></surname>
<given-names><![CDATA[P.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Demographic trends in the Cactaceae]]></article-title>
<source><![CDATA[The Botanical Review]]></source>
<year>2003</year>
<volume>69</volume>
<page-range>173-203</page-range></nlm-citation>
</ref>
<ref id="B22">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Gonçalvez]]></surname>
<given-names><![CDATA[J.F.C.]]></given-names>
</name>
<name>
<surname><![CDATA[Barreto]]></surname>
<given-names><![CDATA[D.C.S.]]></given-names>
</name>
<name>
<surname><![CDATA[Santos Junior]]></surname>
<given-names><![CDATA[U.M.]]></given-names>
</name>
<name>
<surname><![CDATA[Fernandes]]></surname>
<given-names><![CDATA[A.V.]]></given-names>
</name>
<name>
<surname><![CDATA[Sampaio]]></surname>
<given-names><![CDATA[P.T.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Buckeridge]]></surname>
<given-names><![CDATA[M.S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Growth, photosynthesis and stress indicators in young rosewood plants (Aniba rosaeodora Ducke) under different light intensities]]></article-title>
<source><![CDATA[Brazilian Journal of Plant Physiology]]></source>
<year>2005</year>
<volume>17</volume>
<page-range>325-334</page-range></nlm-citation>
</ref>
<ref id="B23">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Grime]]></surname>
<given-names><![CDATA[J.P]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Evidence for the existence of three primary strategies in plants and its relevance to ecological and evolutionary theory]]></article-title>
<source><![CDATA[American Naturalist]]></source>
<year>1977</year>
<volume>111</volume>
<page-range>1169-1194</page-range></nlm-citation>
</ref>
<ref id="B24">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Grime]]></surname>
<given-names><![CDATA[J.P]]></given-names>
</name>
<name>
<surname><![CDATA[Hunt]]></surname>
<given-names><![CDATA[R.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Relative growth-rate; its range and adaptative significance in a local flora]]></article-title>
<source><![CDATA[Journal of Ecology]]></source>
<year>1975</year>
<volume>63</volume>
<page-range>393-422</page-range></nlm-citation>
</ref>
<ref id="B25">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Hernández-González]]></surname>
<given-names><![CDATA[O.]]></given-names>
</name>
<name>
<surname><![CDATA[Briones]]></surname>
<given-names><![CDATA[V.O.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Crassulacean acid metabolism photosynthesis in columnar cactus seedlings during ontogeny: the effect of light on nocturnal acidity accumulation and chlorophyll fluorescence]]></article-title>
<source><![CDATA[American Journal of Botany]]></source>
<year>2007</year>
<volume>94</volume>
<page-range>1344-1351</page-range></nlm-citation>
</ref>
<ref id="B26">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Hoffmann]]></surname>
<given-names><![CDATA[W.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Franco]]></surname>
<given-names><![CDATA[A.C.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Comparative growth analysis of tropical forest and savanna woody plants using phylogenetically independent contrasts]]></article-title>
<source><![CDATA[Journal of Ecology]]></source>
<year>2003</year>
<volume>91</volume>
<page-range>475-484</page-range></nlm-citation>
</ref>
<ref id="B27">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Holmgren]]></surname>
<given-names><![CDATA[M.]]></given-names>
</name>
<name>
<surname><![CDATA[Scheffer]]></surname>
<given-names><![CDATA[M.]]></given-names>
</name>
<name>
<surname><![CDATA[Huston]]></surname>
<given-names><![CDATA[M.A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The interplay of facilitation and competition in plant communities]]></article-title>
<source><![CDATA[Ecology]]></source>
<year>1997</year>
<volume>78</volume>
<page-range>1966-1975</page-range></nlm-citation>
</ref>
<ref id="B28">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Huante]]></surname>
<given-names><![CDATA[P.]]></given-names>
</name>
<name>
<surname><![CDATA[Rincón]]></surname>
<given-names><![CDATA[E.]]></given-names>
</name>
<name>
<surname><![CDATA[Chapin III]]></surname>
<given-names><![CDATA[F.S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Responses to phosphorus of contrasting successional tree-seedling species from the tropical deciduous forest of Mexico]]></article-title>
<source><![CDATA[Functional Ecology]]></source>
<year>1995</year>
<volume>9</volume>
<page-range>760-766</page-range></nlm-citation>
</ref>
<ref id="B29">
<nlm-citation citation-type="">
<collab>Instituto Nacional de Estadística, Geografía e Informática</collab>
<source><![CDATA[Síntesis geográfica del estado de Jalisco. Secretaría de Planeación y Presupuesto]]></source>
<year>1981</year>
<publisher-loc><![CDATA[México^eD.F. D.F.]]></publisher-loc>
</nlm-citation>
</ref>
<ref id="B30">
<nlm-citation citation-type="book">
<collab>Instituto Nacional de Estadística, Geografía e Informática</collab>
<source><![CDATA[Síntesis geográfica del estado de San Luis Potosí]]></source>
<year>2002</year>
<edition>2</edition>
<publisher-loc><![CDATA[México^eD.F. D.F.]]></publisher-loc>
<publisher-name><![CDATA[Secretaría de Planeación y Presupuesto]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B31">
<nlm-citation citation-type="book">
<collab>Jandel Scientific</collab>
<source><![CDATA[Sigma Scan/Image. Measurement Software for Windows]]></source>
<year>1993</year>
<publisher-loc><![CDATA[San Rafael ]]></publisher-loc>
<publisher-name><![CDATA[Jandel Scientific]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B32">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lambers]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
<name>
<surname><![CDATA[Poorter]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Inherent variation in growth rate between higher plants: A search for physiological causes and ecological consequences]]></article-title>
<source><![CDATA[Advances in Ecology Research]]></source>
<year>1992</year>
<volume>23</volume>
<page-range>187-261</page-range></nlm-citation>
</ref>
<ref id="B33">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lambers]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
<name>
<surname><![CDATA[Chapin III]]></surname>
<given-names><![CDATA[F.S.]]></given-names>
</name>
<name>
<surname><![CDATA[Pons]]></surname>
<given-names><![CDATA[T.L.]]></given-names>
</name>
</person-group>
<source><![CDATA[Plant Physiological Ecology]]></source>
<year>1998</year>
<publisher-loc><![CDATA[Nueva York ]]></publisher-loc>
<publisher-name><![CDATA[SpringerVerlag]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B34">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Martínez-Berdeja]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
<name>
<surname><![CDATA[Valverde]]></surname>
<given-names><![CDATA[T.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Growth response of three globose cacti to radiation and soil moisture: An experimental test of the mechanism behind the nurse effect]]></article-title>
<source><![CDATA[Journal of Arid Environments]]></source>
<year>2008</year>
<volume>72</volume>
<page-range>1766-1774</page-range></nlm-citation>
</ref>
<ref id="B35">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Maxwell]]></surname>
<given-names><![CDATA[K.]]></given-names>
</name>
<name>
<surname><![CDATA[Johnson]]></surname>
<given-names><![CDATA[G.N.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Chlorophyll fluorescence - a practical guide]]></article-title>
<source><![CDATA[Journal of Experimental Botany]]></source>
<year>2000</year>
<volume>51</volume>
<page-range>659-668</page-range></nlm-citation>
</ref>
<ref id="B36">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[McAuliffe]]></surname>
<given-names><![CDATA[J.R.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Markovian dynamics of simple and complex desert plant communities]]></article-title>
<source><![CDATA[American Naturalist]]></source>
<year>1988</year>
<volume>131</volume>
<page-range>459-490</page-range></nlm-citation>
</ref>
<ref id="B37">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Miquelajauregui]]></surname>
<given-names><![CDATA[Y.]]></given-names>
</name>
<name>
<surname><![CDATA[Valverde]]></surname>
<given-names><![CDATA[T.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Survival and early growth of two congeneric cacti that differ in their level of rarity]]></article-title>
<source><![CDATA[Journal of Arid Environments]]></source>
<year>2010</year>
<volume>74</volume>
<page-range>1624-1631</page-range></nlm-citation>
</ref>
<ref id="B38">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Miranda]]></surname>
<given-names><![CDATA[F.]]></given-names>
</name>
<name>
<surname><![CDATA[Hernández]]></surname>
<given-names><![CDATA[X.E.]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Los tipos de vegetación de México y su clasificación]]></article-title>
<source><![CDATA[Boletín de la Sociedad Botánica de México]]></source>
<year>1963</year>
<volume>28</volume>
<page-range>29-179</page-range></nlm-citation>
</ref>
<ref id="B39">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Montgomery]]></surname>
<given-names><![CDATA[R.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Relative importance of photosynthetic physiology and biomass allocation for tree seedling growth across a broad light gradient]]></article-title>
<source><![CDATA[Tree Physiology]]></source>
<year>2004</year>
<volume>24</volume>
<page-range>155-167</page-range></nlm-citation>
</ref>
<ref id="B40">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Niering]]></surname>
<given-names><![CDATA[W.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Whittaker]]></surname>
<given-names><![CDATA[R.H.]]></given-names>
</name>
<name>
<surname><![CDATA[Lowe]]></surname>
<given-names><![CDATA[C.H.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The saguaro: a population in relation to environment]]></article-title>
<source><![CDATA[Science]]></source>
<year>1963</year>
<volume>142</volume>
<page-range>15-23</page-range></nlm-citation>
</ref>
<ref id="B41">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Niinemets]]></surname>
<given-names><![CDATA[Ü.]]></given-names>
</name>
<name>
<surname><![CDATA[Valladares]]></surname>
<given-names><![CDATA[F.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Photosynthetic acclimation to simultaneous and interacting environmental stresses along natural light gradients: optimality and constraints]]></article-title>
<source><![CDATA[Plant Biology]]></source>
<year>2004</year>
<volume>6</volume>
<page-range>254-268</page-range></nlm-citation>
</ref>
<ref id="B42">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Nobel]]></surname>
<given-names><![CDATA[PS.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Morphology, nurse plants and minimum apical temperatures for young Carnegiea gigantea]]></article-title>
<source><![CDATA[Botanical Gazette]]></source>
<year>1980</year>
<volume>141</volume>
<page-range>188-191</page-range></nlm-citation>
</ref>
<ref id="B43">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Osmond]]></surname>
<given-names><![CDATA[C.B.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[What is photoinhibition? Some insights from comparisons of shade and sun plants]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Baker]]></surname>
<given-names><![CDATA[N.R.]]></given-names>
</name>
<name>
<surname><![CDATA[Bowyer]]></surname>
<given-names><![CDATA[J.R.]]></given-names>
</name>
</person-group>
<source><![CDATA[Photoinhibition: Molecular Mechanisms to the Field]]></source>
<year>1994</year>
<page-range>1-24</page-range><publisher-loc><![CDATA[Oxford ]]></publisher-loc>
<publisher-name><![CDATA[Bios Scientific Publishers]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B44">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Palleiro]]></surname>
<given-names><![CDATA[N.]]></given-names>
</name>
<name>
<surname><![CDATA[Mandujano]]></surname>
<given-names><![CDATA[M.C.]]></given-names>
</name>
<name>
<surname><![CDATA[Golubov]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Aborted fruits of Opuntia microdasys (Cactaceae): insurance against reproductive failure]]></article-title>
<source><![CDATA[American Journal of Botany]]></source>
<year>2006</year>
<volume>93</volume>
<page-range>505-511</page-range></nlm-citation>
</ref>
<ref id="B45">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Pons]]></surname>
<given-names><![CDATA[T.L.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[An ecophysiological study in the field layer of ash coppice II. Experiment with Geum urbanum and Cirsium palustre in different light intensities]]></article-title>
<source><![CDATA[Acta Botanica Neerlandica]]></source>
<year>1977</year>
<volume>26</volume>
<page-range>29-42</page-range></nlm-citation>
</ref>
<ref id="B46">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Poorter]]></surname>
<given-names><![CDATA[L.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Growth responses of 15 rain-forest tree species to a light gradient: the relative importance of morphological and physiological traits]]></article-title>
<source><![CDATA[Functional Ecology]]></source>
<year>1999</year>
<volume>13</volume>
<page-range>396-410</page-range></nlm-citation>
</ref>
<ref id="B47">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Poorter]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
<name>
<surname><![CDATA[Garnier]]></surname>
<given-names><![CDATA[E.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Ecological significance of relative growth rate and its components]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Pugnaire]]></surname>
<given-names><![CDATA[F.I.]]></given-names>
</name>
<name>
<surname><![CDATA[Valladares]]></surname>
<given-names><![CDATA[F.]]></given-names>
</name>
</person-group>
<source><![CDATA[Handbook of Functional Plant Ecology]]></source>
<year>1999</year>
<page-range>81-120</page-range><publisher-loc><![CDATA[Nueva York ]]></publisher-loc>
<publisher-name><![CDATA[CRC Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B48">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Poorter]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
<name>
<surname><![CDATA[Van der Werf]]></surname>
<given-names><![CDATA[A.A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Is inherent variation in RGR determined by LAR at low irradiance and by NAR at high irradiance? A review of herbaceous species]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Lambers]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
<name>
<surname><![CDATA[Poorter]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
<name>
<surname><![CDATA[van Vuuren]]></surname>
<given-names><![CDATA[M.M.I.]]></given-names>
</name>
</person-group>
<source><![CDATA[Inherent Variation in Plant Growth. Physiological Mechanisms and Ecological Consequences]]></source>
<year>1998</year>
<page-range>309-336</page-range><publisher-loc><![CDATA[Leiden ]]></publisher-loc>
<publisher-name><![CDATA[Backhuys Publishers]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B49">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Poorter]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
<name>
<surname><![CDATA[van de Vijver]]></surname>
<given-names><![CDATA[C.A.D.M.]]></given-names>
</name>
<name>
<surname><![CDATA[Boot]]></surname>
<given-names><![CDATA[R.G.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Lambers]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Growth and carbon economy of a fast-growing and a slow-growing grass species as dependent on nitrate supply]]></article-title>
<source><![CDATA[Plant and Soil]]></source>
<year>1995</year>
<volume>171</volume>
<page-range>217-227</page-range></nlm-citation>
</ref>
<ref id="B50">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Portsmuth]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
<name>
<surname><![CDATA[Niinemets]]></surname>
<given-names><![CDATA[Ü.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Interacting controls by light availability and nutrient supply on biomass allocation and growth of Betula pendula and B. pubescens seedling]]></article-title>
<source><![CDATA[Forest Ecology and Management]]></source>
<year>2006</year>
<volume>227</volume>
<page-range>122-134</page-range></nlm-citation>
</ref>
<ref id="B51">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Portsmuth]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
<name>
<surname><![CDATA[Niinemets]]></surname>
<given-names><![CDATA[Ü.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Structural and physiological plasticity in response to light and nutrients in five temperate deciduous woody species of contrasting shade tolerance]]></article-title>
<source><![CDATA[Functional Ecology]]></source>
<year>2007</year>
<volume>21</volume>
<page-range>61-77</page-range></nlm-citation>
</ref>
<ref id="B52">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Puerta-Piñero]]></surname>
<given-names><![CDATA[C.]]></given-names>
</name>
<name>
<surname><![CDATA[Gómez]]></surname>
<given-names><![CDATA[J.M.]]></given-names>
</name>
<name>
<surname><![CDATA[Zamora]]></surname>
<given-names><![CDATA[R.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Species-specific effects on topsoil development affect Quercus ilex seedling performance]]></article-title>
<source><![CDATA[Acta Oecologica]]></source>
<year>2006</year>
<volume>29</volume>
<page-range>65-71</page-range></nlm-citation>
</ref>
<ref id="B53">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Quero]]></surname>
<given-names><![CDATA[J.L.]]></given-names>
</name>
<name>
<surname><![CDATA[Villar]]></surname>
<given-names><![CDATA[R.]]></given-names>
</name>
<name>
<surname><![CDATA[Marañón]]></surname>
<given-names><![CDATA[T.]]></given-names>
</name>
<name>
<surname><![CDATA[Zamora]]></surname>
<given-names><![CDATA[R.]]></given-names>
</name>
<name>
<surname><![CDATA[Vega]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
<name>
<surname><![CDATA[Sack]]></surname>
<given-names><![CDATA[L.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Relating leaf photosynthetic rate to whole-plant growth: drought and shade effects on seedlings of four Quercus species]]></article-title>
<source><![CDATA[Functional Plant Biology]]></source>
<year>2008</year>
<volume>35</volume>
<page-range>725-737</page-range></nlm-citation>
</ref>
<ref id="B54">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Reich]]></surname>
<given-names><![CDATA[P.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Walters]]></surname>
<given-names><![CDATA[M.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Tjoelker]]></surname>
<given-names><![CDATA[M.G.]]></given-names>
</name>
<name>
<surname><![CDATA[Vanderklein]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
<name>
<surname><![CDATA[Bus-chena]]></surname>
<given-names><![CDATA[C.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Photosynthesis and respiration rates depend on leaf and root morphology and nitrogen concentration in nine boreal tree species differing in relative growth rate]]></article-title>
<source><![CDATA[Functional Ecology]]></source>
<year>1998</year>
<volume>12</volume>
<page-range>395-405</page-range></nlm-citation>
</ref>
<ref id="B55">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ribeiro]]></surname>
<given-names><![CDATA[R.V.]]></given-names>
</name>
<name>
<surname><![CDATA[Souza]]></surname>
<given-names><![CDATA[G.M.]]></given-names>
</name>
<name>
<surname><![CDATA[Oliveira]]></surname>
<given-names><![CDATA[R.F.]]></given-names>
</name>
<name>
<surname><![CDATA[Machado]]></surname>
<given-names><![CDATA[E.C.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Photosynthetic responses of tropical tree species from different successional groups under contrasting irradiance conditions]]></article-title>
<source><![CDATA[Revista Brasileira de Botânica]]></source>
<year>2005</year>
<volume>28</volume>
<page-range>149-161</page-range></nlm-citation>
</ref>
<ref id="B56">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Rzedowski]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Vegetación del estado de San Luis Potosí, México]]></article-title>
<source><![CDATA[Acta Científica Potosina]]></source>
<year>1966</year>
<volume>5</volume>
<page-range>5-291</page-range></nlm-citation>
</ref>
<ref id="B57">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sack]]></surname>
<given-names><![CDATA[L.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Responses of temperate woody seedlings to shade and drought: do trade-offs limit potential niche differentiation?]]></article-title>
<source><![CDATA[Oikos]]></source>
<year>2004</year>
<volume>107</volume>
<page-range>110-127</page-range></nlm-citation>
</ref>
<ref id="B58">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sánchez-Gómez]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
<name>
<surname><![CDATA[Valladares]]></surname>
<given-names><![CDATA[F.]]></given-names>
</name>
<name>
<surname><![CDATA[Zavala]]></surname>
<given-names><![CDATA[M.A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Functional traits and plasticity in response to light in seedlings of four Iberian forest tree species]]></article-title>
<source><![CDATA[Tree Physiology]]></source>
<year>2006</year>
<volume>26</volume>
<page-range>1425-1433</page-range></nlm-citation>
</ref>
<ref id="B59">
<nlm-citation citation-type="book">
<collab>SAS Institute Inc.</collab>
<source><![CDATA[SAS/STAT software, version 9]]></source>
<year>2002</year>
<publisher-name><![CDATA[SAS Institute, Inc.]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B60">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Souza]]></surname>
<given-names><![CDATA[R.P.]]></given-names>
</name>
<name>
<surname><![CDATA[Válio]]></surname>
<given-names><![CDATA[I.F.M.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Seedling growth of fifteen Brazilian tropical tree species differing in successional status]]></article-title>
<source><![CDATA[Revista Brasileira de Botânica]]></source>
<year>2003</year>
<volume>26</volume>
<page-range>35-47</page-range></nlm-citation>
</ref>
<ref id="B61">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Souza]]></surname>
<given-names><![CDATA[G.M.]]></given-names>
</name>
<name>
<surname><![CDATA[Balmant]]></surname>
<given-names><![CDATA[B.D.]]></given-names>
</name>
<name>
<surname><![CDATA[Vítolo]]></surname>
<given-names><![CDATA[H.F.]]></given-names>
</name>
<name>
<surname><![CDATA[Gomes]]></surname>
<given-names><![CDATA[K.B.P]]></given-names>
</name>
<name>
<surname><![CDATA[Florentino]]></surname>
<given-names><![CDATA[T.M.]]></given-names>
</name>
<name>
<surname><![CDATA[Catuchi]]></surname>
<given-names><![CDATA[T. A.]]></given-names>
</name>
<name>
<surname><![CDATA[Vieira]]></surname>
<given-names><![CDATA[W.L.]]></given-names>
</name>
</person-group>
<article-title xml:lang="pt"><![CDATA[Estratégias de utilização de luz e estabilidade do desenvolvimento de plántulas de Cordia superba Cham. (Boraginaceae) crescidas em diferentes ambientes luminosos]]></article-title>
<source><![CDATA[Acta Botanica Brasilica]]></source>
<year>2009</year>
<volume>23</volume>
<page-range>474-485</page-range></nlm-citation>
</ref>
<ref id="B62">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Strauss-Debenedetti]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
<name>
<surname><![CDATA[Bazzaz]]></surname>
<given-names><![CDATA[F.A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Plasticity and acclimation to light in tropical Moraceae of different successional positions]]></article-title>
<source><![CDATA[Oecologia]]></source>
<year>1991</year>
<volume>87</volume>
<page-range>377-387</page-range></nlm-citation>
</ref>
<ref id="B63">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Tielbörger]]></surname>
<given-names><![CDATA[K.]]></given-names>
</name>
<name>
<surname><![CDATA[Kadmon]]></surname>
<given-names><![CDATA[R.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Temporal environmental variation tips the balance between facilitation and interference in desert plants]]></article-title>
<source><![CDATA[Ecology]]></source>
<year>2000</year>
<volume>81</volume>
<page-range>1544-1553</page-range></nlm-citation>
</ref>
<ref id="B64">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Tilman]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
</person-group>
<source><![CDATA[Plant Strategies and the Dynamics and Structure of Plant Communities]]></source>
<year>1988</year>
<publisher-loc><![CDATA[Nueva Jersey ]]></publisher-loc>
<publisher-name><![CDATA[Princeton university Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B65">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Tirado]]></surname>
<given-names><![CDATA[R.]]></given-names>
</name>
<name>
<surname><![CDATA[Pugnaire]]></surname>
<given-names><![CDATA[F.I.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Shrub spatial aggregation and consequences for reproductive success]]></article-title>
<source><![CDATA[Oecologia]]></source>
<year>2003</year>
<volume>136</volume>
<page-range>296-301</page-range></nlm-citation>
</ref>
<ref id="B66">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Valiente-Banuet]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
<name>
<surname><![CDATA[Ezcurra]]></surname>
<given-names><![CDATA[E.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Shade as cause of the association between the cactus Neobuxbaumia tetetzo and the nurse plant Mimosa luisana in the Tehuacán Valley, México]]></article-title>
<source><![CDATA[Journal of Ecology]]></source>
<year>1991</year>
<volume>79</volume>
<page-range>961-971</page-range></nlm-citation>
</ref>
<ref id="B67">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Valiente-Banuet]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
<name>
<surname><![CDATA[Verdú]]></surname>
<given-names><![CDATA[M.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Facilitation can increase the phylogenetic diversity of plant communities]]></article-title>
<source><![CDATA[Ecology Letters]]></source>
<year>2007</year>
<volume>10</volume>
<page-range>1029-1036</page-range></nlm-citation>
</ref>
<ref id="B68">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Valiente-Banuet]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
<name>
<surname><![CDATA[Vite]]></surname>
<given-names><![CDATA[F.]]></given-names>
</name>
<name>
<surname><![CDATA[Zavala-Hurtado]]></surname>
<given-names><![CDATA[J.A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Interaction between the cactus Neobuxbaumia tetetzo and the nurse shrub Mimosa luisana]]></article-title>
<source><![CDATA[Journal of Vegetation Science]]></source>
<year>1991</year>
<volume>2</volume>
<page-range>11-14</page-range></nlm-citation>
</ref>
<ref id="B69">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Valladares]]></surname>
<given-names><![CDATA[F.]]></given-names>
</name>
<name>
<surname><![CDATA[Skillman]]></surname>
<given-names><![CDATA[J.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Pearcy]]></surname>
<given-names><![CDATA[R.W.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Convergence in light capture efficiencies among tropical forest understory plants with contrasting crown architectures: a case of morphological compensation]]></article-title>
<source><![CDATA[American Journal of Botany]]></source>
<year>2002</year>
<volume>89</volume>
<page-range>1275-1284</page-range></nlm-citation>
</ref>
<ref id="B70">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Veneklaas]]></surname>
<given-names><![CDATA[E.J.]]></given-names>
</name>
<name>
<surname><![CDATA[Poorter]]></surname>
<given-names><![CDATA[L.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Growth and carbon partitioning of tropical tree seedlings in contrasting light environments]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Lambers]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Poorter]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
<name>
<surname><![CDATA[van Vuuren]]></surname>
<given-names><![CDATA[M.M.I.]]></given-names>
</name>
</person-group>
<source><![CDATA[Inherent Variation in Plant Growth]]></source>
<year>1998</year>
<page-range>337-361</page-range><publisher-loc><![CDATA[Leiden ]]></publisher-loc>
<publisher-name><![CDATA[Backhuys Publishers]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B71">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Villar]]></surname>
<given-names><![CDATA[R.]]></given-names>
</name>
<name>
<surname><![CDATA[Ruiz-Robleto]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Quero]]></surname>
<given-names><![CDATA[J.L.]]></given-names>
</name>
<name>
<surname><![CDATA[Poorter]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
<name>
<surname><![CDATA[Valladares]]></surname>
<given-names><![CDATA[F.]]></given-names>
</name>
<name>
<surname><![CDATA[Marañon]]></surname>
<given-names><![CDATA[T.]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Tasas de crecimiento en especies leñosas: aspectos funcionales e implicaciones ecológicas]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Valladares]]></surname>
<given-names><![CDATA[F.]]></given-names>
</name>
</person-group>
<source><![CDATA[Ecología del Bosque Mediterráneo en un Mundo Cambiante]]></source>
<year>2008</year>
<page-range>191-227</page-range><publisher-loc><![CDATA[Madrid ]]></publisher-loc>
<publisher-name><![CDATA[Ministerio de Medio AmbienteEGRAF, S.A.]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B72">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Walters]]></surname>
<given-names><![CDATA[M.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Reich]]></surname>
<given-names><![CDATA[P.B.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Low-light carbon balance and shade tolerance in the seedlings of woody plants: do winter deciduous and broad-leaved evergreen species differ?]]></article-title>
<source><![CDATA[New Phytologist]]></source>
<year>1999</year>
<volume>143</volume>
<page-range>143-154</page-range></nlm-citation>
</ref>
<ref id="B73">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Walters]]></surname>
<given-names><![CDATA[M.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Kruger]]></surname>
<given-names><![CDATA[E.L.]]></given-names>
</name>
<name>
<surname><![CDATA[Reich]]></surname>
<given-names><![CDATA[P.B.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Growth, biomass distribution and CO2 exchange of northern hardwood seedlings in high and low light: relationships with successional status and shade tolerance]]></article-title>
<source><![CDATA[Oecologia]]></source>
<year>1993</year>
<volume>94</volume>
<page-range>7-16</page-range></nlm-citation>
</ref>
<ref id="B74">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Webb]]></surname>
<given-names><![CDATA[C.O.]]></given-names>
</name>
<name>
<surname><![CDATA[Gilbert]]></surname>
<given-names><![CDATA[G.S.]]></given-names>
</name>
<name>
<surname><![CDATA[Donoghue]]></surname>
<given-names><![CDATA[M.J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Phylodiversity-dependent seedling mortality, size structure, and disease in a Bornean rain forest]]></article-title>
<source><![CDATA[Ecology]]></source>
<year>2006</year>
<volume>87</volume>
<numero>^sS123-S131</numero>
<issue>^sS123-S131</issue>
<supplement>S123-S131</supplement>
</nlm-citation>
</ref>
</ref-list>
</back>
</article>
