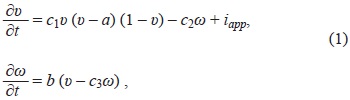
<?xml version="1.0" encoding="ISO-8859-1"?><article xmlns:mml="http://www.w3.org/1998/Math/MathML" xmlns:xlink="http://www.w3.org/1999/xlink" xmlns:xsi="http://www.w3.org/2001/XMLSchema-instance">
<front>
<journal-meta>
<journal-id>1405-888X</journal-id>
<journal-title><![CDATA[TIP. Revista especializada en ciencias químico-biológicas]]></journal-title>
<abbrev-journal-title><![CDATA[TIP]]></abbrev-journal-title>
<issn>1405-888X</issn>
<publisher>
<publisher-name><![CDATA[Universidad Nacional Autónoma de México, Facultad de Estudios Superiores Zaragoza]]></publisher-name>
</publisher>
</journal-meta>
<article-meta>
<article-id>S1405-888X2013000200001</article-id>
<title-group>
<article-title xml:lang="es"><![CDATA[Modelo de propagación de ondas solitarias en el corazón]]></article-title>
<article-title xml:lang="en"><![CDATA[Model for propagation of solitary waves in the heart]]></article-title>
</title-group>
<contrib-group>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Domínguez]]></surname>
<given-names><![CDATA[Ivonne]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Barrio]]></surname>
<given-names><![CDATA[Rafael A.]]></given-names>
</name>
<xref ref-type="aff" rid="A02"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Varea]]></surname>
<given-names><![CDATA[Carmen]]></given-names>
</name>
<xref ref-type="aff" rid="A02"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Aragón]]></surname>
<given-names><![CDATA[José Luis]]></given-names>
</name>
<xref ref-type="aff" rid="A03"/>
</contrib>
</contrib-group>
<aff id="A01">
<institution><![CDATA[,Universidad Nacional Autónoma de México Facultad de Ciencias ]]></institution>
<addr-line><![CDATA[México D.F.]]></addr-line>
</aff>
<aff id="A02">
<institution><![CDATA[,Universidad Nacional Autónoma de México Instituto de Física Departamento de Física Química]]></institution>
<addr-line><![CDATA[México D.F.]]></addr-line>
</aff>
<aff id="A03">
<institution><![CDATA[,Universidad Nacional Autónoma de México Centro de Física Aplicada y Tecnología Avanzada Departamento de Nanotecnología]]></institution>
<addr-line><![CDATA[Querétaro ]]></addr-line>
<country>México</country>
</aff>
<pub-date pub-type="pub">
<day>00</day>
<month>12</month>
<year>2013</year>
</pub-date>
<pub-date pub-type="epub">
<day>00</day>
<month>12</month>
<year>2013</year>
</pub-date>
<volume>16</volume>
<numero>2</numero>
<fpage>79</fpage>
<lpage>92</lpage>
<copyright-statement/>
<copyright-year/>
<self-uri xlink:href="http://www.scielo.org.mx/scielo.php?script=sci_arttext&amp;pid=S1405-888X2013000200001&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://www.scielo.org.mx/scielo.php?script=sci_abstract&amp;pid=S1405-888X2013000200001&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://www.scielo.org.mx/scielo.php?script=sci_pdf&amp;pid=S1405-888X2013000200001&amp;lng=en&amp;nrm=iso"></self-uri><abstract abstract-type="short" xml:lang="es"><p><![CDATA[En la actividad eléctrica cardiaca, distintos tipos de onda viajan a través del corazón. Presentamos un modelo de la actividad eléctrica del corazón, proponemos que los frentes de onda homogéneos que se propagan en el corazón son, de hecho, ondas solitarias, o "solitones". Usamos un conjunto general de ecuaciones de reacción-difusión conocido como el modelo de Barrio-Varea-Aragón-Maini (BVAM)[1], el cual presenta una abundancia de bifurcaciones no lineales, siendo capaces de encontrar la ruta al caos usando un mapeo de las ecuaciones de amplitud a la dinámica de la ecuación compleja de Ginzburg-Landau. Estudiamos numéricamente la dinámica de los frentes de onda en el modelo BVAM para describir los mecanismos que conducen a la fibrilación en el corazón y comparamos los resultados con datos experimentales.]]></p></abstract>
<abstract abstract-type="short" xml:lang="en"><p><![CDATA[In cardiac electrical activity, different types of waves meander through the heart. We present a model of the electrical activity of the heart that proposes that the homogeneous wave fronts propagating through the heart are in fact solitons. We use a general set of reaction-diffusion equations known as the Barrio-Varea-Aragón-Maini (BVAM) model[1]that presents a wealth of non-linear bifurcations, and we are able to follow the route to chaos, using a mapping of the amplitude equations to the dynamics of the complex Ginzburg-Landau equation. We study the dynamics of wave fronts numerically in the BVAM model to describe the mechanisms leading to heart fibrillation and compare the findings with experimental data.]]></p></abstract>
<kwd-group>
<kwd lng="es"><![CDATA[Actividad eléctrica del corazón]]></kwd>
<kwd lng="es"><![CDATA[caos]]></kwd>
<kwd lng="es"><![CDATA[sistemas de reacción difusión]]></kwd>
<kwd lng="es"><![CDATA[solitones]]></kwd>
<kwd lng="en"><![CDATA[Electrical activity of the heart]]></kwd>
<kwd lng="en"><![CDATA[chaos]]></kwd>
<kwd lng="en"><![CDATA[reaction-difusion systems]]></kwd>
<kwd lng="en"><![CDATA[solitons]]></kwd>
</kwd-group>
</article-meta>
</front><body><![CDATA[  	    <p align="justify"><font face="verdana" size="4">Art&iacute;culo original</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="center"><font face="verdana" size="4"><b>Modelo de propagaci&oacute;n de ondas solitarias en el coraz&oacute;n</b></font></p> 	    <p align="center">&nbsp;</p> 	    <p align="center"><font face="verdana" size="3"><b>Model for propagation of solitary waves in the heart</b></font></p> 	    <p align="center">&nbsp;</p> 	    <p align="center"><font face="verdana" size="2"><b>Ivonne Dom&iacute;nguez<sup>1</sup>, Rafael A. Barrio<sup>2</sup>*, Carmen Varea<sup>2</sup> y Jos&eacute; Luis Arag&oacute;n<sup>3</sup></b></font></p>     <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><sup><i>1</i></sup> <i>Facultad de Ciencias, Universidad Nacional Aut&oacute;noma de M&eacute;xico (UNAM). Ciudad Universitaria, Deleg. Coyoac&aacute;n, C.P. 04510, M&eacute;xico, D.F.</i></font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2"><sup><i>2</i></sup> <i>Depto. de F&iacute;sica Qu&iacute;mica, Instituto de F&iacute;sica, Universidad Nacional Aut&oacute;noma de M&eacute;xico (UNAM). Apdo. Postal 20&#45;364, C.P. 01000, M&eacute;xico, D.F. E&#45;mail:</i> *<a href="mailto:barrio@fisica.unam.mx">barrio@fisica.unam.mx</a></font></p>  	    <p align="justify"><font face="verdana" size="2"><sup><i>3</i></sup> <i>Depto. de Nanotecnolog&iacute;a, Centro de F&iacute;sica Aplicada y Tecnolog&iacute;a Avanzada, Universidad Nacional Aut&oacute;noma de M&eacute;xico (UNAM). Apdo. Postal 1&#45;1010, C.P. 76000, Quer&eacute;taro, M&eacute;xico.</i></font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2">Art&iacute;culo recibido el 12 de marzo de 2013.    <br> 	Aceptado el 31 de julio de 2013.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Resumen</b></font></p>  	    <p align="justify"><font face="verdana" size="2">En la actividad el&eacute;ctrica cardiaca, distintos tipos de onda viajan a trav&eacute;s del coraz&oacute;n. Presentamos un modelo de la actividad el&eacute;ctrica del coraz&oacute;n, proponemos que los frentes de onda homog&eacute;neos que se propagan en el coraz&oacute;n son, de hecho, ondas solitarias, o "solitones". Usamos un conjunto general de ecuaciones de reacci&oacute;n&#45;difusi&oacute;n conocido como el modelo de Barrio&#45;Varea&#45;Arag&oacute;n&#45;Maini (BVAM)<sup>&#91;1&#93;</sup>, el cual presenta una abundancia de bifurcaciones no lineales, siendo capaces de encontrar la ruta al caos usando un mapeo de las ecuaciones de amplitud a la din&aacute;mica de la ecuaci&oacute;n compleja de Ginzburg&#45;Landau. Estudiamos num&eacute;ricamente la din&aacute;mica de los frentes de onda en el modelo BVAM para describir los mecanismos que conducen a la fibrilaci&oacute;n en el coraz&oacute;n y comparamos los resultados con datos experimentales.</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Palabras Clave:</b> Actividad el&eacute;ctrica del coraz&oacute;n, caos, sistemas de reacci&oacute;n difusi&oacute;n, solitones.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2"><b>Abstract</b></font></p>  	    <p align="justify"><font face="verdana" size="2">In cardiac electrical activity, different types of waves meander through the heart. We present a model of the electrical activity of the heart that proposes that the homogeneous wave fronts propagating through the heart are in fact solitons. We use a general set of reaction&#45;diffusion equations known as the Barrio&#45;Varea&#45;Arag&oacute;n&#45;Maini (BVAM) model<sup>&#91;1&#93;</sup>that presents a wealth of non&#45;linear bifurcations, and we are able to follow the route to chaos, using a mapping of the amplitude equations to the dynamics of the complex Ginzburg&#45;Landau equation. We study the dynamics of wave fronts numerically in the BVAM model to describe the mechanisms leading to heart fibrillation and compare the findings with experimental data.</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Key Words:</b> Electrical activity of the heart, chaos, reaction&#45;difusion systems, solitons.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Introducci&oacute;n</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Durante las &uacute;ltimas d&eacute;cadas, la investigaci&oacute;n sobre el coraz&oacute;n ha sido motivada, no s&oacute;lo por el deseo de descubrir los secretos de este &oacute;rgano vital, sino tambi&eacute;n por su importancia cl&iacute;nica.</font></p>  	    <p align="justify"><font face="verdana" size="2">Para el bombeo eficiente del coraz&oacute;n se requiere que las c&eacute;lulas que constituyen el tejido muscular cardiaco se contraigan coordinadas en el espacio, de tal forma que el &oacute;rgano pueda cambiar su forma y cumplir su funci&oacute;n de bombear la sangre. Este proceso de contracci&oacute;n est&aacute; originado por un est&iacute;mulo el&eacute;ctrico que se propaga a trav&eacute;s de todas las c&eacute;lulas cardiacas de manera coherente y ordenada. El ciclo r&iacute;tmico de contracci&oacute;n y relajaci&oacute;n de ~10<sup>10</sup> c&eacute;lulas musculares es controlado por un patr&oacute;n complejo de activaci&oacute;n el&eacute;ctrica.</font></p>  	    <p align="justify"><font face="verdana" size="2">El ritmo cardiaco normal puede ser resultado de muy distintas interacciones entre las c&eacute;lulas que dan origen al funcionamiento sin falla en m&aacute;s de 3 x 10<sup>9</sup> latidos consecutivos a lo largo de una vida. Es evidente que el proceso din&aacute;mico tiene que ser muy robusto y sin p&eacute;rdidas de energ&iacute;a o desgaste. Por lo tanto, podemos pensar que el proceso debe ser la consecuencia de una bifurcaci&oacute;n no&#45;lineal. Sin embargo, para discernir de qu&eacute; mecanismo se trata, podemos examinar la informaci&oacute;n que podamos extraer de las fallas y alteraciones en su funcionamiento, ya que cada fen&oacute;meno no&#45;lineal tiene una forma caracter&iacute;stica de seguir un &aacute;rbol de bifurcaciones.</font></p>  	    <p align="justify"><font face="verdana" size="2">El estrecho v&iacute;nculo entre las alteraciones de la actividad el&eacute;ctrica del coraz&oacute;n y los problemas cardiacos es la base de la capacidad diagn&oacute;stica del electrocardiograma o ECG, que es la m&aacute;s antigua herramienta no invasiva para el diagn&oacute;stico de enfermedades del coraz&oacute;n. Tres categor&iacute;as funcionales del coraz&oacute;n; automatismo, excitabilidad y conductividad, se relacionan con las propiedades el&eacute;ctricas de la masa y de las fibras cardiacas<sup>&#91;2&#93;</sup>. Son estas propiedades las que, registradas gr&aacute;ficamente mediante electrodos colocados en la superficie corporal, dan origen al electrocardiograma, el cual se genera debido a que las fibras musculares deben accionar sincr&oacute;nicamente por zonas, para que el coraz&oacute;n cumpla adecuadamente con su funci&oacute;n de bombear la sangre. Esto implica el registro de se&ntilde;ales el&eacute;ctricas del orden de algunos milivolts, sobre cualquier punto de su volumen corporal. El electrocardiograma es entonces la historia temporal de la suma de la actividad el&eacute;ctrica de las c&eacute;lulas en un volumen, registrada desde la superficie corporal.</font></p>  	    <p align="justify"><font face="verdana" size="2">Existen muchos modelos que pueden explicar la actividad oscilatoria coherente del sistema, e incluso reproducir los datos experimentales de un ECG. Sin embargo, casi ninguno puede reproducir las anomal&iacute;as que se presentan en la muerte cardiaca, como por ejemplo la aparici&oacute;n del estado de fibrilaci&oacute;n usualmente observado antes de la p&eacute;rdida de la funci&oacute;n cardiaca.</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">En este art&iacute;culo propondremos un modelo simple que cumple con estos requisitos y adem&aacute;s revela el hecho sorprendente, pero aceptable a posteriori, de que la excitaci&oacute;n el&eacute;ctrica en el coraz&oacute;n se propaga en el espacio como frentes de onda solitarias ("solitones"). En efecto, este tipo de ondas no lineales tienen la particularidad de que su propagaci&oacute;n es no disipativa, hecho muy relevante cuando se considera que el coraz&oacute;n no puede dejar de funcionar, ni por unos momentos, durante toda una vida. Adem&aacute;s, debido a la refractoriedad de las c&eacute;lulas excitables, cuando dos frentes chocan no se suman como las ondas lineales, sino que el estado excitado se comparte con los dos frentes que chocan y cuando se alejan se recupera la forma de ambos frentes. Esto sucede tanto en im&aacute;genes experimentales<sup>&#91;3&#93;</sup>, como en simulaciones din&aacute;micas de los solitones en nuestro modelo (ver animaciones en Barrio<sup>&#91;4&#93;</sup>). Demostraremos que este tipo de excitaci&oacute;n es susceptible de presentar caos cuando se var&iacute;an los par&aacute;metros del sistema no&#45;lineal. Adem&aacute;s, realizaremos c&aacute;lculos num&eacute;ricos cuyos resultados pueden ser comparados con datos experimentales que validen las conclusiones de nuestro modelo.</font></p>  	    <p align="justify"><font face="verdana" size="2">En la siguiente secci&oacute;n revisaremos los modelos que actualmente s&iacute; pueden simular tanto el funcionamiento normal, como las fallas que mencionamos, lo cual ser&aacute; necesario para presentar lo original de nuestro modelo.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Modelos actualmente usados</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Al proponer un modelo de la actividad el&eacute;ctrica del coraz&oacute;n se tienen que tomar en cuenta ciertos hechos biol&oacute;gicos de suma importancia<sup>&#91;5&#93;</sup>: 1) Debe existir un solo marcapasos que coordine en el tiempo las excitaciones que se propagan en el espacio. 2) Estas excitaciones deben estar coordinadas en una cavidad, y se deben acoplar a las modificaciones de forma causadas por la contracci&oacute;n de las c&eacute;lulas. 3) Las contracciones deben responder a se&ntilde;ales externas qu&iacute;micas y mec&aacute;nicas que sean capaces de modificar su frecuencia y amplitud. 4) El mecanismo debe ser robusto ante ruido y perturbaciones externas. 5) El coraz&oacute;n tiene una forma muy precisa de dejar de funcionar, relacionada con una ruta espec&iacute;fica al caos<sup>&#91;6&#93;</sup>.</font></p>  	    <p align="justify"><font face="verdana" size="2">Podemos clasificar los modelos existentes en tres categor&iacute;as: 1) Los modelos fenomenol&oacute;gicos que consideran una interacci&oacute;n no lineal c&uacute;bica, como el modelo de FitzHugh&#45;Nagumo<sup>&#91;</sup><sup>7,8&#93;</sup> y otros<sup>&#91;</sup><sup>9&#93;</sup>. 2) Los modelos de primera generaci&oacute;n, que explican el comportamiento y descripci&oacute;n de las corrientes i&oacute;nicas, todos ellos basados en el modelo del potencial de acci&oacute;n de Hodgking&#45;Huxley (modelo H&#45;H)<sup>&#91;</sup><sup>10&#93;</sup>. Por ejemplo, los modelos de Beeler&#45; Reuter'<sup>&#91;11&#93;</sup> y Low&#45;Rudy<sup>&#91;</sup><sup>12&#93;</sup>. Y 3) Los modelos de segunda generaci&oacute;n, que hacen &eacute;nfasis en la descripci&oacute;n detallada de la fisiolog&iacute;a celular, como la concentraci&oacute;n de iones y funcionamiento de bombas, y est&aacute;n &iacute;ntimamente ligados a datos experimentales. Describimos a continuaci&oacute;n con m&aacute;s detalle el modelo fenomenol&oacute;gico y el de primera generaci&oacute;n, que han sido la base de casi todos los actualmente usados.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>El modelo de FitzHugh&#45;Nagumo</b></font></p>  	    <p align="justify"><font face="verdana" size="2">El modelo de FitzHugh&#45;Nagumo<sup>&#91;</sup><sup>7&#93;</sup> es una simplificaci&oacute;n del modelo H&#45;H a dos variables, de tal forma que presenta una bifurcaci&oacute;n de Hopf subcr&iacute;tica que provoca un cambio repentino en el valor de la variable que representa el potencial de membrana. En su formulaci&oacute;n original el modelo est&aacute; dado por:</font></p>  	    <p align="center"><font face="verdana" size="2"><img src="/img/revistas/tip/v16n2/a1fo1.jpg"></font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">donde <i>a, b, c<sub>1</sub>, c<sub>2</sub> y c<sub>3</sub></i> son par&aacute;metros ajustables. El valor de estos par&aacute;metros da un potencial de acci&oacute;n normalizado. La corriente aplicada <i>i<sub>app</sub></i> tambi&eacute;n se escala para que coincida con este modelo normalizado. Im&aacute;genes de <i>&#965;</i> y <i>&#969;</i> se muestran en la </font><font face="verdana" size="2"><a href="#a1f1">Figura 1</a>. El potencial de acci&oacute;n mostrado en la figura resulta de aplicar una corriente <i>i<sub>app</sub></i> con resistencia de 0.05 Ohms, y una duracion de <i>t</i> = 50 s hasta <i>t</i> = 60 s.</font></p>     <p align="center"><font face="verdana" size="2"><a name="a1f1"></a></font></p>  	    <p align="center"><font face="verdana" size="2"><img src="/img/revistas/tip/v16n2/a1f1.jpg"></font></p>  	    <p align="center"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2">Se han hecho algunas variaciones de este modelo para superar las limitaciones del modelo original. Por ejemplo, un detalle de la formulaci&oacute;n original que no es consistente con los datos fisiol&oacute;gicos es que la neurona hiperpolariza en la fase de repolarizaci&oacute;n. Esto puede verse en la <a href="#a1f1">Fig. 1</a>, donde <i>&#965;</i> alcanza valores muy por debajo del potencial de reposo antes de volver al estado de reposo. Una modificaci&oacute;n de las ecuaciones que elimina este problema fue sugerida por Rogers y McCulloch<sup>&#91;</sup><sup>13&#93;</sup>.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>El modelo de Hodgking&#45;Huxley</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Este modelo ha sido el m&aacute;s exitoso para tratar todo tipo de c&eacute;lulas excitables, incluyendo neuronas, miocitos, c&eacute;lulas musculares, etc. Fue concebido originalmente para estudiar la propagaci&oacute;n de se&ntilde;ales el&eacute;ctricas en el ax&oacute;n gigante de un calamar. El modelo original publicado en 1952, y que concedi&oacute; el Premio Nobel a sus autores, es un sistema de al menos tres ecuaciones diferenciales parciales acopladas en las que los potenciales de acci&oacute;n se producen debido a la no linealidad de las interacciones entre las corrientes de diversos iones.</font></p>  	    <p align="justify"><font face="verdana" size="2">El principio f&iacute;sico usado es muy elemental y consiste en la Ley de Ohm. En el funcionamiento normal de una c&eacute;lula, varias corrientes i&oacute;nicas contribuyen a los cambios en el potencial de membrana. Hodgkin y Huxley<sup>&#91;2&#93;</sup> tomaron como premisa el modelo circuital de membrana, donde cada corriente i&oacute;nica est&aacute; representada como:</font></p>  	    <p align="center"><font face="verdana" size="2"><img src="/img/revistas/tip/v16n2/a1fo2.jpg"></font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">donde <i>I<sub>x</sub></i> es la corriente asociada al i&oacute;n <i>x, g<sub>x</sub></i> es la conductancia del canal i&oacute;nico correspondiente, <i>V<sub>m</sub></i> es el potencial de membrana y <i>E<sub>x</sub></i> es el potencial de Nernst del i&oacute;n x.</font></p>  	    <p align="justify"><font face="verdana" size="2">El modelo H&#45;H fue desarrollado para una c&eacute;lula aislada; en estas condiciones, ninguna corriente puede fluir hacia el medio intracelular, por tanto <i>I<sub>m</sub></i>= 0, y la evoluci&oacute;n del potencial de membrana puede escribirse, a partir de la Ecuaci&oacute;n 2 como:</font></p>  	    <p align="center"><font face="verdana" size="2"><img src="/img/revistas/tip/v16n2/a1fo3.jpg"></font></p>  	    <p align="justify"><font face="verdana" size="2">A partir de sus experimentos, observaron que cuando la membrana de una c&eacute;lula nerviosa se despolariza m&aacute;s all&aacute; de un valor umbral, se produce en la c&eacute;lula una corriente de entrada transitoria producida por iones de sodio, seguida por una corriente de salida, formada por iones de potasio. Caracterizaron la dependencia con el voltaje de la conductancia de los canales i&oacute;nicos del ax&oacute;n gigante postulando la existencia de ciertas part&iacute;culas cargadas que, unidas al canal i&oacute;nico correspondiente, permitir&iacute;an o no el flujo de iones por el canal. Cada una de estas part&iacute;culas controlar&iacute;a las compuertas de un canal, de forma que la acci&oacute;n individual de cada part&iacute;cula corresponder&iacute;a a la probabilidad de apertura (z) o cierre (1 &#45; z) de cada compuerta (0 &le; <i>z</i> &le; 1). Cada compuerta puede pasar del estado abierto al cerrado o viceversa, siguiendo una ley dependiente del voltaje de primer orden:</font></p>  	    <p align="center"><font face="verdana" size="2"><img src="/img/revistas/tip/v16n2/a1fo4.jpg"></font></p>  	    <p align="justify"><font face="verdana" size="2">donde la variable <i>&#945;<sub>z</sub></i> es el intervalo de tiempo en el que el canal i&oacute;nico est&aacute; abierto y <i>&#946;<sub>z</sub></i> el intervalo de tiempo en el que est&aacute; cerrado. &Eacute;stas se obtienen emp&iacute;ricamente y tienen una dependencia no lineal de funciones exponenciales de <i>V<sub>m</sub>.</i> Las Ecuaciones 2, 3 y 4 son, por lo tanto, un sistema de ecuaciones diferenciales acopladas, cuya soluci&oacute;n, bajo condiciones de estado estacionario, se caracteriza por sus valores asint&oacute;ticos <i>z</i><sub>&infin;</sub> y su constante de tiempo &#964;<i><sub>z</sub></i>.</font></p>  	    <p align="justify"><font face="verdana" size="2">Finalmente, los modelos de segunda generaci&oacute;n, proveen una liga entre los mecanismos celulares y el comportamiento colectivo, pero son complicados y particulares, sin embargo, daremos una breve descripci&oacute;n de los avances obtenidos paralelamente a los obtenidos experimentalmente. Denis Noble<sup>&#91;</sup><sup>14&#93;</sup> public&oacute; el primer modelo matem&aacute;tico de c&eacute;lula cardiaca, en el que se describ&iacute;a el potencial de acci&oacute;n de las fibras de Purkinje, a partir de la adaptaci&oacute;n de las ecuaciones del modelo H&#45;H. M&aacute;s de una d&eacute;cada despu&eacute;s, en 1975, McAllister <i>et</i> al.<sup>&#91;</sup><sup>15&#93;</sup> mejoraron el modelo de Noble mediante la incorporaci&oacute;n de nuevas evidencias experimentales sobre las propiedades de la membrana celular. Seguidamente, Beeler y Reuter<sub>&#91;11&#93;</sub> desarrollaron en 1977 el primer modelo de miocito ventricular, reformulado despu&eacute;s por Luo y Rudy en 1994<sup>&#91;</sup><sup>12,16&#93;</sup>. Si bien la mayor parte de los modelos celulares cardiacos estaban dirigidos a representar el comportamiento de las c&eacute;lulas ventriculares, unos pocos modelos fueron desarrollados tambi&eacute;n para las c&eacute;lulas auriculares. Las c&eacute;lulas del nodo sinoauricular fueron las primeras c&eacute;lulas auriculares en ser descritas matem&aacute;ticamente. En1998, Nygren et al.<sup>&#91;</sup><sup>17&#93;</sup> publicaron un modelo de miocito auricular, reformulado en 1999 por Courtemanche et al.<sup>&#91;</sup><sup>18,19&#93;</sup>.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Modelo BVAM</b></font></p>  	    <p align="justify"><font face="verdana" size="2">El modelo de reacci&oacute;n&#45;difusi&oacute;n que estudiamos en este trabajo es el llamado BVAM (por Barrio&#45;Varea&#45;Arag&oacute;n&#45; Maini)'<sup>2&#93;</sup>. Este modelo, a diferencia de otros, fue concebido no para modelar un sistema o mecanismo espec&iacute;fico, sino que se obtuvo como la forma m&aacute;s general de un sistema de reacci&oacute;n&#45;difusi&oacute;n con dos variables, que respeta la conservaci&oacute;n de masa.</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">Consideremos la expresi&oacute;n m&aacute;s general de un sistema de reacci&oacute;n&#45;difusi&oacute;n<sup>&#91;</sup><sup>20&#93;</sup>:</font></p>  	    <p align="center"><font face="verdana" size="2"><img src="/img/revistas/tip/v16n2/a1fo5.jpg"></font></p>  	    <p align="justify"><font face="verdana" size="2">donde &#965; y <i>&#957;</i> son los morf&oacute;genos con coeficientes de difusi&oacute;n D<sub>&#965;</sub> y D<sub>&#957;</sub>, respectivamente. F y G son funciones que describen la cin&eacute;tica qu&iacute;mica y son, en general, no lineales y no existe un criterio general para establecerlas, sus expresiones dependen del problema qu&iacute;mico o biol&oacute;gico bajo estudio.</font></p>  	    <p align="justify"><font face="verdana" size="2">En el modelo BVAM, los t&eacute;rminos que representan a la cin&eacute;tica qu&iacute;mica, F y G, se obtienen suponiendo que son funciones no lineales anal&iacute;ticas y se desarrollan en serie de Taylor hasta orden tres. Varios coeficientes de la expansi&oacute;n en serie se eliminan para garantizar la conservaci&oacute;n de masa y el resultado se puede escribir, en forma adimensional, como:</font></p>  	    <p align="center"><font face="verdana" size="2"><img src="/img/revistas/tip/v16n2/a1fo6.jpg"></font></p>  	    <p align="justify"><font face="verdana" size="2">donde <i>&#951;</i> es un par&aacute;metro que impone la escala espacio temporal del sistema. Las tasas de crecimiento de &#965; y <i>&#957;</i> est&aacute;n descritas en t&eacute;rminos de los par&aacute;metros <i>f, g</i> y <i>h,</i> que son convenientes para explorar la regi&oacute;n de par&aacute;metros de inter&eacute;s en este trabajo. La raz&oacute;n entre las intensidades de los t&eacute;rminos cuadr&aacute;ticos y c&uacute;bicos est&aacute; dada por <i>C</i>.</font></p>  	    <p align="justify"><font face="verdana" size="2">Los criterios para obtener una inestabilidad de Turing<sup>&#91;21&#93;</sup>, imponen restricciones sobre los coeficientes de difusi&oacute;n y los par&aacute;metros <i>f, g, h</i> y C. Se ha mostrado tambi&eacute;n que, adem&aacute;s de los patrones espaciales estacionarios (patrones de Turing), que han sido usados en m&uacute;ltiples ocasiones para modelar procesos de pigmentaci&oacute;n en la piel de los animales y otros sistemas biol&oacute;gicos (ver por ejemplo Barrio et al.<sup>&#91;</sup><sup>1&#93;</sup>), en el espacio de par&aacute;metros se pueden encontrar tambi&eacute;n varias bifurcaciones de Hopf y de Hopf&#45;Turing<sup>&#91;22&#93;</sup>. En otra regi&oacute;n de par&aacute;metros se encuentra una bifurcaci&oacute;n que produce patrones espaciales de puntos de radio constante, que no es una bifurcaci&oacute;n de Turing<sup>&#91;23&#93;</sup>.</font></p>  	    <p align="justify"><font face="verdana" size="2">De gran inter&eacute;s para nuestro trabajo se encuentra una regi&oacute;n en el espacio de par&aacute;metros, cercana a una bifurcaci&oacute;n de Hopf, en donde se obtienen frentes de ondas viajeras, cuya velocidad depende de la curvatura local<sup>&#91;</sup><sup>24&#93;</sup>. Debido a este hecho, en un dominio bidimensional plano los frentes giran alrededor de los puntos donde la curvatura cambia de signo.</font></p>  	    <p align="justify"><font face="verdana" size="2">Otro aspecto interesante del modelo es que existe una regi&oacute;n de par&aacute;metros que produce soluciones con caos. Usando el par&aacute;metro C , que indica la raz&oacute;n entre los t&eacute;rminos cuadr&aacute;ticos y c&uacute;bicos en la cin&eacute;tica, se encuentran patrones espaciales de Turing cuya amplitud oscila en el tiempo<sup>&#91;</sup><sup>25&#93;</sup>. Variando el par&aacute;metro de bifurcaci&oacute;n, las oscilaciones doblan su per&iacute;odo, subsecuentes variaciones del par&aacute;metro de bifurcaci&oacute;n, producen una regi&oacute;n de oscilaciones cuasiperi&oacute;dicas (hay por lo menos dos frecuencias de oscilaci&oacute;n inconmesuradas entre s&iacute;<sup>&#91;26&#93;</sup>), tambi&eacute;n llamada bifurcaci&oacute;n de Toro, y eventualmente las oscilaciones se vuelven ca&oacute;ticas. Esta ruta al caos se conoce como el mecanismo de Ruelle&#45;Takens&#45;Newhouse<sup>&#91;27&#93;</sup>.</font></p>  	    <p align="justify"><font face="verdana" size="2">En este art&iacute;culo analizaremos m&aacute;s profundamente esta ruta al caos, empezando con un sistema que presente ondas solitarias, con el objeto de comparar los resultados te&oacute;ricos con los procesos de fibrilaci&oacute;n que producen la muerte cardiaca. Para esto, comenzaremos por analizar las propiedades del sistema y la posibilidad de obtener una ruta al caos. En el <a href="/img/revistas/tip/v16n2/html/a1apen1.html" target="_blank">Ap&eacute;ndice</a> mostramos el m&eacute;todo matem&aacute;tico que seguimos para este an&aacute;lisis. La clave es mostrar que las ecuaciones de amplitud del modelo BVAM se pueden transformar en una ecuaci&oacute;n de Landau&#45;Ginzburg con coeficientes complejos (Eq. VIII.25), la cual presenta caos.</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Aplicaci&oacute;n a la actividad el&eacute;ctrica cardiaca</b> <b>Regi&oacute;n en el espacio de par&aacute;metros para Ondas Solitarias</b></font></p>  	    <p align="justify"><font face="verdana" size="2">En ausencia de difusi&oacute;n, en el espacio fase <i>(&#965;, &#957;),</i> el modelo BVAM tiene los tres puntos fijos mostrados en la ecuaci&oacute;n VIII.15. Si h = &#45;1 todos ellos colapsan en el punto (&#965;<sub>0</sub> , <i>&#957;</i><sub>0</sub>) = (0, 0). En el caso h 4 1, diferentes elecciones de par&aacute;metros pueden llevarnos a diferentes configuraciones de los puntos de equilibrio en el espacio fase, por ejemplo un punto de silla en el origen (0, 0) rodeado de dos puntos fijos estables, con una trayectoria heterocl&iacute;nica entre ellos. Esto significa que el sistema no lineal puede tener una bifurcaci&oacute;n a un sistema biestable (dos puntos de equlibrio estable) en que algunas regiones del dominio f&iacute;sico ser&aacute;n atra&iacute;das por uno de los puntos fijos estables y otras ser&aacute;n atra&iacute;das hacia el otro. En esta situaci&oacute;n se producen interfases entre estas regiones en las que la concentraci&oacute;n de los morf&oacute;genos cambia abruptamente, provocando un perfil sigmoidal al atravesar dichas regiones.</font></p>  	    <p align="justify"><font face="verdana" size="2">La bifurcaci&oacute;n puede estudiarse con un an&aacute;lisis lineal de las cin&eacute;ticas <i>F</i> y <i>G</i> de la ecuaci&oacute;n 6 (por ejemplo vea Varea <i>et</i> al.<sup>&#91;24&#93;</sup>) y el resultado se muestra en la <a href="#a1f2">Fig. 2</a>.</font></p>  	    <p align="center"><font face="verdana" size="2"><a name="a1f2"></a></font></p>  	    <p align="center"><font face="verdana" size="2"><img src="/img/revistas/tip/v16n2/a1f2.jpg"></font></p>  	    <p align="justify"><font face="verdana" size="2">La regi&oacute;n de par&aacute;metros de inter&eacute;s es el &aacute;rea entre la curva punteada y la continua de la <a href="#a1f2">Fig. 2</a>. La regi&oacute;n presenta oscilaciones regulares de alta frecuencia (taquicardia) causadas por la existencia de un ciclo l&iacute;mite que encierra a los puntos fijos, los cuales son inestables. En la frontera azul, los puntos fijos se vuelven estables y la cuenca de atracci&oacute;n crece al cruzar la curva, donde se tiene un sistema biestable con frentes de ondas viajeras. Por ejemplo, un punto de la frontera es <i>(g<sub>c</sub>,</i> <i>f<sub>c</sub>)</i> = (0.165, 0.5043), para C = 0, h = &#45;2.5 y <i>&#951;</i>= 0.5.</font></p>  	    <p align="justify"><font face="verdana" size="2">Estos solitones se mueven con velocidad proporcional a la curvatura local del perfil y, como consecuencia tiene un movimiento giratorio alrededor de los puntos donde cambia la curvatura del frente. Adem&aacute;s, muy cerca de la l&iacute;nea punteada la distancia entre frentes es constante, pero si uno se aleja de la frontera de la transici&oacute;n entonces uno obtiene franjas delgadas y franjas anchas alternadas, como se muestra en el recuadro inferior de la <a href="#a1f3">Fig. 3</a>.</font></p>  	    <p align="center"><font face="verdana" size="2"><a name="a1f3"></a></font></p>  	    <p align="center"><font face="verdana" size="2"><img src="/img/revistas/tip/v16n2/a1f3.jpg"></font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">En el apartado siguiente mostraremos los resultados de c&aacute;lculos num&eacute;ricos efectuados variando los par&aacute;metros alrededor de la regi&oacute;n de inter&eacute;s.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>C&aacute;lculos num&eacute;ricos en un plano</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Para explorar la regi&oacute;n de par&aacute;metros de inter&eacute;s, integramos las ecuaciones (6) usando una variaci&oacute;n del m&eacute;todo de gradiente conjugado (Conjugate Gradient Method), con condiciones peri&oacute;dicas a la frontera y con intervalo de tiempo &#916;t = 0.01 en un entramado bidimensional (matriz) de 120 x 120. Este valor del paso del tiempo asegura la estabilidad del proceso<sup>'28&#93;</sup> y la confiabilidad de los resultados. En la <a href="#a1f3">Fig. 3</a> mostramos los patrones obtenidos num&eacute;ricamente para varios puntos en la regi&oacute;n de inter&eacute;s.</font></p>  	    <p align="justify"><font face="verdana" size="2">Los recuadros muestran la concentraci&oacute;n de <i>&#965;</i> en un c&oacute;digo de color en donde el rojo indica concentraci&oacute;n alta y azul baja. Esto puede asociarse al estado de polarizaci&oacute;n de las c&eacute;lulas en una regi&oacute;n. Observe que para valores grandes de f aparecen ondas espirales, que se mueven lentamente, pero cambian de color r&aacute;pidamente en el tiempo, lo cual resulta en un espectro con dos frecuencias distintas. A la izquierda de la l&iacute;nea azul se obtienen ondas espirales del tipo Belousov&#45;Zhabotinsky<sup>&#91;21&#93;</sup> con diversas frecuencias. Al aproximarse a la bifurcaci&oacute;n de Hopf, se observa que aparecen gotas y "ojos", cuya descripci&oacute;n y an&aacute;lisis est&aacute; fuera del prop&oacute;sito de este art&iacute;culo. Si en esta regi&oacute;n se cambia la raz&oacute;n entre los coeficientes de difusi&oacute;n, entonces los patrones dejan de oscilar y se obtiene un patr&oacute;n espacial fijo, del tipo Turing.</font></p>  	    <p align="justify"><font face="verdana" size="2">La regi&oacute;n en que se presentan solitones est&aacute; a la derecha de la l&iacute;nea azul para valores de g ~ 0.165. Al disminuir el valor de f las oscilaciones dejan de ser regulares. T&iacute;picamente se observa que aparece un doblamiento de per&iacute;odo, la forma de onda cambia y adem&aacute;s pueden aparecer algunas componentes de Fourier inconmensuradas con las ya existentes en el espectro (cuasiperiodicidad).</font></p>  	    <p align="justify"><font face="verdana" size="2">El funcionamiento de un coraz&oacute;n latiendo regularmente puede ser simulado por latidos regulares y robustos. En este trabajo proponemos que la actividad el&eacute;ctrica en un coraz&oacute;n sano puede simularse con solitones regulares. En la <a href="#a1f4">Fig. 4(A)</a> mostramos la forma de onda que se obtiene con este modelo. Esta forma de onda contiene un n&uacute;mero finito (y conmensuradas entre s&iacute;) de componentes de Fourier, como se puede constatar en el espectro de potencias mostrado en la <a href="#a1f4">Fig. 4(B)</a>. El retrato de fase en la <a href="#a1f4">Fig. 4(C)</a> muestra claramente las trayectorias heterocl&iacute;nicas que unen a los dos puntos fijos estables.</font></p>  	    <p align="center"><font face="verdana" size="2"><a name="a1f4"></a></font></p>  	    <p align="center"><font face="verdana" size="2"><img src="/img/revistas/tip/v16n2/a1f4.jpg"></font></p>  	    <p align="justify"><font face="verdana" size="2">Todos los c&aacute;lculos fueron hechos con el programa COMSOL Multiphysics (COMSOL), que usa el m&eacute;todo del elemento finito, y con MATLAB, usando un m&eacute;todo de Euler simple. Todos los c&aacute;lculos concuerdan.</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>C&aacute;lculos num&eacute;ricos en una superficie con curvatura</b></font></p>  	    <p align="justify"><font face="verdana" size="2">No es evidente que los patrones obtenidos en un dominio bidimensional plano con condiciones peri&oacute;dicas se obtengan en otras geometr&iacute;as. Para aplicar nuestro modelo al funcionamiento de un coraz&oacute;n real, al menos es necesario hacer los c&aacute;lculos en una superficie cerrada convexa. En la <a href="/img/revistas/tip/v16n2/a1f5.jpg" target="_blank">Fig. 5</a> mostramos que las ondas viajeras se presentan en una superficie param&eacute;trica simple que se asemeja a la forma de una cavidad cardiaca. En esta figura hemos asociado una contracci&oacute;n del radio de curvatura local de la superficie proporcional al valor de u(x, y) y la barra de colores se&ntilde;ala en amarillo las regiones de contracci&oacute;n. &Eacute;sta es una representaci&oacute;n burda de la actividad muscular del coraz&oacute;n debida a la actividad el&eacute;ctrica modelada.</font></p>  	    <p align="justify"><font face="verdana" size="2">Los solitones que se muestran en la <a href="/img/revistas/tip/v16n2/a1f5.jpg" target="_blank">Fig. 5(A)</a> rotan alrededor de los puntos de curvatura cero, es decir, tienen el mismo comportamiento que en un dominio plano. En la <a href="/img/revistas/tip/v16n2/a1f5.jpg" target="_blank">Fig. 5(B)</a> se muestran estos solitones pero para un c&aacute;lculo en el que se obtienen ondas espirales del tipo de las mostradas en la <a href="#a1f3">Fig 3</a>, del lado izquierdo de la l&iacute;nea azul.</font></p>  	    <p align="justify"><font face="verdana" size="2">El tama&ntilde;o del dominio fue regulado variando <i>&#951;</i> de tal forma que s&oacute;lo presentar&aacute; dos centros de rotaci&oacute;n, en una cavidad modelo de un "coraz&oacute;n sano".</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>En un dominio tridimensional</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Es evidente que el m&uacute;sculo cardiaco es un dominio tridimensional, por lo tanto debemos probar nuestro modelo de la actividad el&eacute;ctrica del coraz&oacute;n en tres dimensiones. Para esto usamos el programa COMSOL Multiphysics, que es capaz de integrar ecuaciones diferenciales no lineales en un dominio de tres dimensiones usando el m&eacute;todo de elemento finito.</font></p>  	    <p align="justify"><font face="verdana" size="2">En la <a href="/img/revistas/tip/v16n2/a1f6.jpg" target="_blank">Fig. 6</a> se muestra una instant&aacute;nea de la concentraci&oacute;n de <i>&#965;</i> en un dominio acotado por dos semi&#45;elipses de diferente excentricidad y una cubierta inferior esf&eacute;rica, en un c&aacute;lculo con los mismos par&aacute;metros de la <a href="#a1f4">Fig 4</a>. Esto simula la forma de una cavidad cardiaca. La escala de colores es igual que en las dem&aacute;s figuras. Debido a la transparencia de la figura, observamos que el patr&oacute;n de ondas solitarias sigue un comportamiento igual que en el dominio plano y se transmite en la tercera dimensi&oacute;n, lo cual significa que todos los puntos del interior presentan la misma concentraci&oacute;n de <i>&#965;</i> que en las superficies que los acotan. En un coraz&oacute;n sano se presentandos nodos principales, por lo que, para obtener dos nodos fijos, en este c&aacute;lculo se fij&oacute; el valor de u = 0 en los extremos superior e inferior del dominio, lo cual tiene el efecto de fijar el punto de rotaci&oacute;n de los solitones, simulando as&iacute; la excitaci&oacute;n externa del coraz&oacute;n.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2"><b>Comparaci&oacute;n con el funcionamiento del coraz&oacute;n</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Un dato clave experimental es el electrocardiograma que, en t&eacute;rminos generales, simula la historia temporal del potencial de membrana de las c&eacute;lulas cardiacas. La <a href="#a1f7">Fig. 7</a> muestra un electrocardiograma t&iacute;pico de una persona sana.</font></p>  	    <p align="center"><font face="verdana" size="2"><a name="a1f7"></a></font></p>  	    <p align="center"><font face="verdana" size="2"><img src="/img/revistas/tip/v16n2/a1f7.jpg"></font></p>  	    <p align="justify"><font face="verdana" size="2">Como puede observarse, el retrato de fase es comparable con el mostrado por los solitones, en el sentido de formar una trayectoria cerrada entre dos puntos fijos. Sin embargo, la forma de onda no es similar. Esto se debe obviamente a que en el ECG no se registra la actividad en una &uacute;nica c&eacute;lula. De todas formas podemos ver que la forma de onda obtenida con nuestro modelo es mucho m&aacute;s estructurada que las del modelo de FiztHugh&#45;Nagumo, mostradas en la <a href="#a1f1">Fig. 1</a>.</font></p>  	    <p align="justify"><font face="verdana" size="2">Nuestro modelo es capaz de reproducir historias temporales de excitaci&oacute;n similares a las formas de onda registradas en un ECG, si variamos los par&aacute;metros adecuadamente. En la <a href="/img/revistas/tip/v16n2/a1f8.jpg" target="_blank">Fig. 8(A)</a> mostramos un c&aacute;lculo que presenta "wavelets", en los que los frentes de <i>u</i> m&aacute;xima son angostos, la forma de onda es muy similar a la mostrada en la <a href="#a1f7">Fig. 7</a>. Tambi&eacute;n mostramos el espectro de Fourier de las oscilaciones.</font></p>  	    <p align="justify"><font face="verdana" size="2">En la <a href="/img/revistas/tip/v16n2/a1f8.jpg" target="_blank">Fig. 8(B)</a> mostramos el patr&oacute;n de ondas espirales que se obtiene justo antes de cruzar la l&iacute;nea de bifurcaci&oacute;n azul de la <a href="#a1f3">Fig. 3</a>, que se atraviesa al disminuir g. Observe que la historia temporal en la <a href="/img/revistas/tip/v16n2/a1f8.jpg" target="_blank">Fig. 8(B)</a> muestra oscilaciones mucho m&aacute;s r&aacute;pidas que en la <a href="/img/revistas/tip/v16n2/a1f8.jpg" target="_blank">Fig. 8(A)</a>, simulando taquicardia. Adem&aacute;s, la forma de onda de las ondas espirales es pr&aacute;cticamente senoidal como se puede constatar en el espectro de frecuencias mostrado.</font></p>  	    <p align="justify"><font face="verdana" size="2">Uno de los puntos importantes que pueden validar este modelo es investigar si es capaz de simular las fallas y anormalidades del funcionamiento de un coraz&oacute;n. Una de las afecciones m&aacute;s frecuentes, que implican la muerte cardiaca, es la llamada fibrilaci&oacute;n ventricular, en la que despu&eacute;s de una taquicardia, se presentan arritmias severas y finalmente la muerte, ya que en estas condiciones el coraz&oacute;n no puede bombear sangre eficientemente.</font></p>  	    <p align="justify"><font face="verdana" size="2">En la <a href="/img/revistas/tip/v16n2/a1f9.jpg" target="_blank">Fig. 9</a> mostramos los cambios producidos en los patrones y en el comportamiento temporal de <i>u</i> cuando se cambian los par&aacute;metros del modelo.</font></p>  	    <p align="justify"><font face="verdana" size="2">Empezamos mostrando en (a) los solitones usando los valores de f y g de la <a href="/img/revistas/tip/v16n2/a1f8.jpg" target="_blank">Fig. 8</a>, que corresponden a la simulaci&oacute;n de un coraz&oacute;n sano. En (b) se muestra la aparici&oacute;n de un doblamiento de per&iacute;odo cuando se aumenta el valor de f=f + 0.012 y <i>g</i> = g<sub>c</sub>. Observe la aparici&oacute;n de otros nodos. En (c) obtenemos la aparici&oacute;n de "wavelets" rotando a alta frecuencia cuando se baja el valor de <i>f</i> para acercarse al valor f y g<sub>c</sub>. En (d) sigue la aproximaci&oacute;n a la l&iacute;nea cr&iacute;tica, que se alcanza en el c&aacute;lculo mostrado en (f ). Observe la sucesi&oacute;n de bifurcaciones al hacer esto. En ese punto se modifica el valor de C = 0.2 y se cumple la condici&oacute;n de caos obtenida en el <a href="/img/revistas/tip/v16n2/html/a1apen1.html" target="_blank">ap&eacute;ndice</a> (ver <a href="/img/revistas/tip/v16n2/html/a1apen1.html" target="_blank">Ec. VIII.31</a>) poniendo <i>D<sub>u</sub>/D<sub>&#957;</sub></i> = 0.77. Observe la irregularidad de las oscilaciones y la aparici&oacute;n de m&uacute;ltiples frecuencias.</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">Este panorama es muy similar al mostrado en la <a href="/img/revistas/tip/v16n2/a1f5.jpg" target="_blank">Fig. 5</a> de Garfinkel <i>et</i> al.<sup>&#91;</sup><sup>6&#93;</sup>, que muestran los electrocardiogramas de corazones humanos y caninos con fibrilaci&oacute;n. Es conveniente enfatizar que los retratos de fase mostrados en esa referencia son similares a los obtenidos con nuestro modelo, tanto para un coraz&oacute;n sano, como con fibrilaci&oacute;n.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Conclusiones</b></font></p>  	    <p align="justify"><font face="verdana" size="2">En este trabajo hemos examinado las propiedades de un modelo lo suficientemente rico para ser usado en diversos sistemas complejos. El trabajo fue guiado por un an&aacute;lisis lineal del sistema de ecuaciones, hecho alrededor de un punto fijo diferente al usado para obtener patrones de Turing. La riqueza de patrones que se obtienen es debida a la proximidad de dos l&iacute;neas cr&iacute;ticas en el espacio de par&aacute;metros. Esto permite tener una regi&oacute;n de transici&oacute;n entre una bifuraci&oacute;n de Hopf y otra de silla&#45;nodo, la primera exhibe oscilaciones regulares en un ciclo l&iacute;mite, y la segunda presenta una situaci&oacute;n biestable, que puede presentar frentes de onda viajeras del tipo solit&oacute;n.</font></p>  	    <p align="justify"><font face="verdana" size="2">Todas estas caracter&iacute;sticas hacen de este modelo un sistema apropiado para simular la actividad el&eacute;ctrica en el coraz&oacute;n, ya que en este &oacute;rgano se presentan situaciones muy peculiares en el momento en que falla. Si esto es as&iacute;, podr&iacute;amos proponer que las ondas observadas en el m&uacute;sculo cardiaco son en realidad solitones, lo cual tiene sentido <i>a posteriori,</i> si se toma en cuenta que las oscilaciones tienen que ser lo suficientemente robustas para que el coraz&oacute;n lata sin fallar m&aacute;s de 10<sup>9</sup> veces. Las ondas espirales no tienen esta robustez ni producen una forma de onda comparable a la medida en los ECG. Adem&aacute;s, los solitones encontrados en nuestro modelo se pueden comportar de distinta forma al chocar con un obst&aacute;culo o una pared, dependiendo de las condiciones a la frontera. Pueden rebotar, como es usual, o anularse en la pared, o bien pueden proseguir el estado de excitaci&oacute;n del bulto en la pared<sup>&#91;24&#93;</sup>, lo cual se observa en el coraz&oacute;n.</font></p>  	    <p align="justify"><font face="verdana" size="2">Si consideramos la forma de onda, podemos ver que la forma de onda del comportamiento colectivo en el dominio es comparable a la registrada en un ECG, mientras que otros modelos no lo hacen. Adem&aacute;s, es de vital importancia que la frecuencia cardiaca pueda ser regulada en forma directa y sencilla. En nuestro modelo esto se puede hacer de dos maneras, disminuyendo <i>f</i>, o aumentando g. Si interpretamos a los morf&oacute;genos <i>&#965;</i> y <i>&#957;</i> como las substancias cuya reacci&oacute;n provoca el latido cardiaco, por ejemplo en la fosforilaci&oacute;n, el tiempo de reacci&oacute;n debe depender de otra substancia, por ejemplo la adrenalina, que modifica los valores de los par&aacute;metros externos, los cuales tienen precisamente este significado.</font></p>  	    <p align="justify"><font face="verdana" size="2">Hemos mostrado adem&aacute;s que las ecuaciones de amplitud del modelo BVAM pueden transformarse en un sistema de Landau&#45;Ginzburg, el cual es susceptible de presentar caos bajo ciertas condiciones de los par&aacute;metros (ver <a href="/img/revistas/tip/v16n2/html/a1apen1.html" target="_blank">Ap&eacute;ndice</a>). Esto es de suma importancia, ya que trabajos experimentales<sup>&#91;6,29&#93;</sup> muestran que cuando el coraz&oacute;n muere, lo hace siguiendo una ruta espec&iacute;fica al caos, que se manifiesta como taquicardia, arritmia y fibrilaci&oacute;n. La sugerencia experimental es que la ruta al caos sea siguiendo el mecanismo de Ruelle&#45;Takens&#45;Newhouse<sup>&#91;27&#93;</sup>. En un art&iacute;culo anterior hemos mostrado que el modelo BVAM presenta patrones de Turing con caos temporal siguiendo precisamente esa ruta<sup>&#91;25&#93;</sup>.</font></p>  	    <p align="justify"><font face="verdana" size="2">En este trabajo sugerimos que las fallas cardiacas pueden ser modeladas encontrando una ruta al caos similar a la observada experimentalmente. Es alentador que el tipo de fen&oacute;menos que el modelo BVAM presenta cerca de los estados cr&iacute;ticos se asemeje mucho a los datos experimentales. Sin embargo, una demostraci&oacute;n de la aparici&oacute;n de caos y una comparaci&oacute;n detallada con los datos experimentales est&aacute; actualmente en proceso y ser&aacute; el objeto de un trabajo futuro.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Agradecimientos</b></font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">Este trabajo fue parcialmente financiado por los proyectos de CONACYT Nos. 179616 y 167244. Agradecemos a Gertrudis Hortensia Gonz&aacute;lez G&oacute;mez por sus excelentes comentarios en la revisi&oacute;n del manuscrito.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Referencias</b></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">1. Barrio, R.A., Varea, C., Arag&oacute;n, J.L. &amp; Maini, P.K. A two dimensional numerical study of spatial pattern formation in interactiong turing systems. <i>Bull. Math. Biol.</i> 61, 483 (1999).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088057&pid=S1405-888X201300020000100001&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">2. Barrio, R.A. Morphogenesis in Introducci&oacute;n a la F&iacute;sica Biol&oacute;gica. Vol. 3. Col&iacute;n, L.G., Dagdug, L., Picquart, M. &amp; V&aacute;zquez, E. (El Colegio Nacional, M&eacute;xico, D.F., 2010).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088059&pid=S1405-888X201300020000100002&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">3. Bub, G., Shrier, A. &amp; Glass, L. Spiral wave generation in heterogeneous excitable media. <i>Phys. Rev. Lett.</i> 85, 058101 (2002).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088061&pid=S1405-888X201300020000100003&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">4. Barrio, R.A. Aplicaciones del modelo bvam a sistemas complejos. <i>Revista Digital Universitaria,</i><a href="http://www.revista.unam.mx/vol.ll/num6/art55" target="_blank">http://www.revista.unam.mx/vol.ll/num6/art55</a>, 11(6) (2010).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088063&pid=S1405-888X201300020000100004&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">5. Sundnes, J. <i>et al.</i> in Computing the Electrical activity of the Heart, Monographs in Computational Science and Engineering (eds. Bart, T.J. <i>et al.)</i> (Springer, Berlin, 2006).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088065&pid=S1405-888X201300020000100005&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">6. Garfinkel, A. <i>et al.</i> Quasiperiodicity and chaos in cardiac fibrillation. <i>The Journal of Clinical Investigation</i> 99(2) (1997) . P&aacute;gs. 305&#45;314.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088067&pid=S1405-888X201300020000100006&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">7. FitzHugh, R.A. Impuses and physiological states in theoretical models of nerve membrane. <i>Biophysical Journal</i> 1, 465 (1961). P&aacute;gs. 445&#45;466.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088069&pid=S1405-888X201300020000100007&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">8. Nagumo, J., Arimoto, S. &amp; Yoshizawa, S. An active pulse transmission line simulating nerve axon. <i>Proceedings of the IRE</i> 50(10), 2061&#45;2070 (1962).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088071&pid=S1405-888X201300020000100008&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">9. Echebarr&iacute;a, B. &amp; Karma, A. Instability and spatiotemporal dynamics of alternants in paced cardiac tissue. <i>Phys. Rev. Lett.</i> 88(20), 208101 (2002).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088073&pid=S1405-888X201300020000100009&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">10. Hodgkin, A.L. &amp; Huxley, A.F. A quantitative description of membrane current and its application to conduction and excitation in nerve. <i>Journal of Physiology</i> 117, 500&#45;544 (1952).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088075&pid=S1405-888X201300020000100010&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">11. Beeler, G.W. &amp; Reuter, H. Reconstruction of the action potential of ventricular myocardial fibres. <i>J. Physiol.</i> 268, 177&#45;210, 1975).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088077&pid=S1405-888X201300020000100011&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">12. Luo, C.H. &amp; Rudy, Y. A dynamic model of the cardiac action potential. ii. Afterdepolarizations, triggered activity, and potentiation. <i>Circ. Res.</i> 74, 1097&#45;113 (1994).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088079&pid=S1405-888X201300020000100012&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">13. Rogers, J.M. &amp; McCullock, A.D. A collocation&#45;galerkin fe of cardiac action potential propagation. <i>IEEE Trans. on Biomedical Engineering</i> 41, 743&#45;757 (1994).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088081&pid=S1405-888X201300020000100013&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">14. Noble, D. A modification of the hodgkin&#45;huxley equations applicable to Purkinje fibre action and pace&#45;maker potentials. <i>J. Physiol.</i> 160, 317&#45;52 (1962).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088083&pid=S1405-888X201300020000100014&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">15. McAllister, R.E., Noble, D. &amp;Tsien, R.W. Reconstruction of the electrical activity of cardiac Purkinje fibres. <i>J. Physiol.</i> 251, 1&#45;59 (1975).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088085&pid=S1405-888X201300020000100015&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">16. Luo, C.H. &amp; Rudy, Y. A dynamic model of the cardiac ventricular action potential. i. Simulations of ionic currents and concentration changes. <i>Circ. Res.</i> 74, 1071&#45;96 (1994).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088087&pid=S1405-888X201300020000100016&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">17. Nygren, A. <i>et al.</i> Mathematical model of an adult human atrial cell: the role of k+ cu&#45; rrents in repolarization. <i>Circ. Res.</i> 82, 63&#45;81 (1998).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088089&pid=S1405-888X201300020000100017&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">18. Courtemanche, M., Ram&iacute;rez, R.J. &amp; Nattel, S. Ionic mechanisms underlying human atrial action potential properties: insights from a mathematical model. <i>Am. J. Physiol.</i> 275, 301&#45;321 (1998) .    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088091&pid=S1405-888X201300020000100018&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">19. Courtemanche, M., Ram&iacute;rez, R.J. &amp; Nattel, S. Ionic targets for drug therapy and atrial fibrillation&#45;induced electrical remodeling: insights from a mathematical model. <i>Cardiovas.</i> <i>Res.</i> 42, 477&#45;489 (1999).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088093&pid=S1405-888X201300020000100019&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">20. Turing, A.M. The chemical basis of morphogenesis. <i>Phil.Trans.</i> <i>R. Soc. London B</i> 237(641), 37&#45;72 (1952).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088095&pid=S1405-888X201300020000100020&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">21. Murray, J.D. Mathematical Biology II: Spatial Models and Biomedical Applications. Vol. 2. Interdisciplinary Applied Mathematics. 3<sup>rd</sup> ed. (Springer, 2003).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088097&pid=S1405-888X201300020000100021&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">22. Lepannen, T. Computational Studies of Pattern Formation in Turing Systems. Ph.D. Thesis, Helsinki University of Technology (2004).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088099&pid=S1405-888X201300020000100022&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">23. Wolley, T.E. <i>et al.</i> Analysis of stationary droplets in a generic turing reaction&#45;diffusion system. <i>Phys. Rev. E. 82,</i> 051929 (2010).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088101&pid=S1405-888X201300020000100023&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">24. Varea, C., Barrio, R.A. &amp; Hern&aacute;ndez, D. Soliton behaviour in reaction&#45;diffusion model. <i>J. Math. Biol.</i> 54, 797&#45;813 (2007).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088103&pid=S1405-888X201300020000100024&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">25. Arag&oacute;n, J.L., Barrio, R.A., Woolley, T.E., Baker, R.E. &amp; Maini, P.K. Non&#45;linear effects on turing patterns: Time oscillations and chaos. <i>Phys. Rev. E.,</i> 86, 026201 (2012).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088105&pid=S1405-888X201300020000100025&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">26. Strogatz, S.H. Nonlinear Dynamics And Chaos: With Applications To Physics, Biology, Chemistry, And Engineering. Studies in Nonlinearity (Westview Press, Cambridge, MA, 2008).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088107&pid=S1405-888X201300020000100026&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">27. Newhouse, S., Ruelle, D. &amp; Takens, F. Occurrence of strange axiom a attractors near quasi periodic flows on tm, m &gt; 3. <i>Commun. Math. Phys.</i> 64, 35-40 (1978).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088109&pid=S1405-888X201300020000100027&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">28. Arag&oacute;n, J.L., Torres, M., Gil, D., Barrio, R.A. &amp; Maini, P.K. Turing patterns with pentagonal symmetry. <i>Phys. Rev. E.</i> 65, 051913 (2002).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088111&pid=S1405-888X201300020000100028&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">29. Herlin, A. &amp; Jacquemet, V. Eikonal&#45;base initiation of fribillatory activity in thin walled cardiac propagation models. <i>Chaos</i> 21, 043136 (2011).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088113&pid=S1405-888X201300020000100029&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2">30. Kuramoto, Y. Chemical Oscillations, Waves, and Turbulence (Springer, Berlin, NewYork, 1984).    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=10088115&pid=S1405-888X201300020000100030&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Informaci&oacute;n sobre los autores</b></font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Ivonne Dom&iacute;nguez</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Ivonne Dom&iacute;nguez curs&oacute; sus estudios de Licenciatura en F&iacute;sica en la Facultad de Ciencias de la UNAM y durante un semestre en la Fakult&auml;t f&uuml;r Physics de la Universit&auml;t Wien, Viena, Austria.</font></p>  	    <p align="justify"><font face="verdana" size="2">Actualmente se desempe&ntilde;a como asistente de investigador en el Instituto de F&iacute;sica de la UNAM donde realiza su tesis de licenciatura. Su l&iacute;nea de investigaci&oacute;n est&aacute; dirigida a la Din&aacute;mica no lineal y Sistemas complejos. &Eacute;sta se centra en el estudio de la fibrilaci&oacute;n cardiaca usando un modelo de reacci&oacute;n&#45;difusi&oacute;n. Ha tomado varios talleres nacionales de investigaci&oacute;n en Nanotecnolog&iacute;a, Energ&iacute;as renovables, Matem&aacute;ticas y Matem&aacute;ticas aplicadas. Recientemente particip&oacute; en la escuela internacional "Spring College on Physics of Complex Systems" organizada por el ICTP (International Centre for Theoretical Physics) en Trieste, Italia.</font></p>  	    <p align="justify"><font face="verdana" size="2">Responsable de varios proyectos DGPA, PRIDE y CONACYT. Se le otorg&oacute; el Premio SMF a la Investigaci&oacute;n Cient&iacute;fica.</font></p> 	    <p align="justify"><font face="verdana" size="2"><b>Rafael A. Barrio</b></font></p>         ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">Rafael A. Barrio obtuvo su licenciatura y dos maestr&iacute;as en la UNAM, su doctorado en F&iacute;sica Te&oacute;rica en la Universidad de Oxford UK y ha trabajado en la UNAM por 39 a&ntilde;os, primero en el Instituto de Investigaciones en Materiales y actualmente en el Instituto de F&iacute;sica, como Investigador Titular "C" de tiempo completo. Es Profesor Honorario (Adjunt Professor) del Centre of Excellence in Computational Complex Systems Research de la Universidad Aalto, Helsinki, Finlandia. Actualmente coordina el proyecto Patterning, Segregation and Differentiation in Complex Networks, en el que participan la UNAM, la Universidad de Barcelona, la Universidad de Oxford y la Universidad de Helsinki. Es nivel III del SNI. Ha publicado 171 art&iacute;culos a nivel internacional, entre 15 libros y cap&iacute;tulos de libros; asesorado 19 tesis. Ha presentado 86 conferencias internacionales y 122 pl&aacute;ticas por invitaci&oacute;n, tambi&eacute;n a nivel internacional.</font></p>         <p align="justify"><font face="verdana" size="2">Su campo de especialidad es muy amplio en Metalurgia, Estado s&oacute;lido y Sistemas complejos. Ha sido miembro de varios comit&eacute;s. Responsable de varios proyectos DGPA, PRIDE Y CONACYT. Se le otorg&oacute; el Premio SMF a la Investigaci&oacute;n Cient&iacute;fica.</font></p>     <p align="justify"><font face="verdana" size="2"><b>Carmen varea</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Carmen Varea es Doctora en Ciencias por la Universidad de California en Berkeley. Actualmente, trabaja como Investigadora Titular "C" en el Instituto de F&iacute;sica de la UNAM. Sus principales l&iacute;neas de investigaci&oacute;n son: la mec&aacute;nica estad&iacute;stica de sistemas inhomog&eacute;neos, la formaci&oacute;n de patrones, las cin&eacute;ticas en sistemas f&iacute;sicos, qu&iacute;micos, biol&oacute;gicos y humanos, y la f&iacute;sica del estado s&oacute;lido. Es miembro del SNI nivel III. Ha colaborado con art&iacute;culos en diversas publicaciones internacionales y recibi&oacute;, en 1996, el Premio de investigaci&oacute;n de la Sociedad Mexicana de F&iacute;sica.</font></p>     <p align="justify"><font face="verdana" size="2"><b>J</b><b>os&eacute;</b> <b>L</b><b>uis</b> <b>Arag&oacute;n</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Jos&eacute; Luis Arag&oacute;n es Ingeniero F&iacute;sico egresado de la Universidad Aut&oacute;noma Metropolitana, doctor en f&iacute;sica de materiales por el CICESE e Investigador Titular "C" del Centro de F&iacute;sica Aplicada y Tecnolog&iacute;a Avanzada de la UNAM. Su l&iacute;nea de investigaci&oacute;n principal es Biomatem&aacute;ticas y sus &aacute;reas de inter&eacute;s son F&iacute;sica del estado s&oacute;lido y Biolog&iacute;a matem&aacute;tica. Ha publicado 99 art&iacute;culos, la mayor&iacute;a en revistas indexadas; tambi&eacute;n cap&iacute;tulos de libros y art&iacute;culos <i>in extenso</i> en memorias con refereo, as&iacute; como art&iacute;culos period&iacute;sticos y de divulgaci&oacute;n. Otras publicaciones son 26 libros de texto, un libro traducido y 2 n&uacute;meros de libros especiales.</font></p>  	    <p align="justify"><font face="verdana" size="2">Ha dirigido 5 tesis de licenciatura, 1 de maestr&iacute;a y 3 de doctorado. Ha impartido 57 cursos de licenciatura y 7 de doctorado. Ha sido Jefe del Depto. de Nanotecnolog&iacute;a del Centro de F&iacute;sica Aplicada y Tecnolog&iacute;a Avanzada y Coordinador de Licenciatura en Tecnolog&iacute;a. Es miembro del SNI nivel III.</font></p>      ]]></body><back>
<ref-list>
<ref id="B1">
<label>1</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Barrio]]></surname>
<given-names><![CDATA[R.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Varea]]></surname>
<given-names><![CDATA[C.]]></given-names>
</name>
<name>
<surname><![CDATA[Aragón]]></surname>
<given-names><![CDATA[J.L.]]></given-names>
</name>
<name>
<surname><![CDATA[Maini]]></surname>
<given-names><![CDATA[P.K.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A two dimensional numerical study of spatial pattern formation in interactiong turing systems]]></article-title>
<source><![CDATA[Bull. Math. Biol]]></source>
<year>1999</year>
<volume>61</volume>
<page-range>483</page-range></nlm-citation>
</ref>
<ref id="B2">
<label>2</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Barrio]]></surname>
<given-names><![CDATA[R.A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Morphogenesis]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Colín]]></surname>
<given-names><![CDATA[L.G.]]></given-names>
</name>
<name>
<surname><![CDATA[Dagdug]]></surname>
<given-names><![CDATA[L.]]></given-names>
</name>
<name>
<surname><![CDATA[Picquart]]></surname>
<given-names><![CDATA[M.]]></given-names>
</name>
<name>
<surname><![CDATA[Vázquez]]></surname>
<given-names><![CDATA[E.]]></given-names>
</name>
</person-group>
<source><![CDATA[Introducción a la Física Biológica]]></source>
<year>2010</year>
<volume>3</volume>
<publisher-loc><![CDATA[México^eD.F. D.F.]]></publisher-loc>
<publisher-name><![CDATA[El Colegio Nacional]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B3">
<label>3</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bub]]></surname>
<given-names><![CDATA[G.]]></given-names>
</name>
<name>
<surname><![CDATA[Shrier]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
<name>
<surname><![CDATA[Glass]]></surname>
<given-names><![CDATA[L.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Spiral wave generation in heterogeneous excitable media]]></article-title>
<source><![CDATA[Phys. Rev. Lett]]></source>
<year>2002</year>
<volume>85</volume>
</nlm-citation>
</ref>
<ref id="B4">
<label>4</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Barrio]]></surname>
<given-names><![CDATA[R.A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Aplicaciones del modelo bvam a sistemas complejos]]></article-title>
<source><![CDATA[Revista Digital Universitaria]]></source>
<year>2010</year>
<volume>11</volume>
<numero>6</numero>
<issue>6</issue>
</nlm-citation>
</ref>
<ref id="B5">
<label>5</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sundnes]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
</person-group>
<source><![CDATA[Computing the Electrical activity of the Heart]]></source>
<year>2006</year>
<publisher-loc><![CDATA[Berlin ]]></publisher-loc>
<publisher-name><![CDATA[Springer]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B6">
<label>6</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Garfinkel]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Quasiperiodicity and chaos in cardiac fibrillation]]></article-title>
<source><![CDATA[The Journal of Clinical Investigation]]></source>
<year>1997</year>
<volume>99</volume>
<numero>2</numero>
<issue>2</issue>
<page-range>305-314</page-range></nlm-citation>
</ref>
<ref id="B7">
<label>7</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[FitzHugh]]></surname>
<given-names><![CDATA[R.A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Impuses and physiological states in theoretical models of nerve membrane]]></article-title>
<source><![CDATA[Biophysical Journal]]></source>
<year>1961</year>
<volume>1</volume>
<numero>465</numero>
<issue>465</issue>
<page-range>445-466</page-range></nlm-citation>
</ref>
<ref id="B8">
<label>8</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Nagumo]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
<name>
<surname><![CDATA[Arimoto]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
<name>
<surname><![CDATA[Yoshizawa]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[An active pulse transmission line simulating nerve axon]]></article-title>
<source><![CDATA[Proceedings of the IRE]]></source>
<year>1962</year>
<volume>50</volume>
<numero>10</numero>
<issue>10</issue>
<page-range>2061-2070</page-range></nlm-citation>
</ref>
<ref id="B9">
<label>9</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Echebarría]]></surname>
<given-names><![CDATA[B.]]></given-names>
</name>
<name>
<surname><![CDATA[Karma]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Instability and spatiotemporal dynamics of alternants in paced cardiac tissue]]></article-title>
<source><![CDATA[Phys. Rev. Lett]]></source>
<year>2002</year>
<volume>88</volume>
<numero>20</numero>
<issue>20</issue>
</nlm-citation>
</ref>
<ref id="B10">
<label>10</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Hodgkin]]></surname>
<given-names><![CDATA[A.L.]]></given-names>
</name>
<name>
<surname><![CDATA[Huxley]]></surname>
<given-names><![CDATA[A.F.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A quantitative description of membrane current and its application to conduction and excitation in nerve]]></article-title>
<source><![CDATA[Journal of Physiology]]></source>
<year>1952</year>
<volume>117</volume>
<page-range>500-544</page-range></nlm-citation>
</ref>
<ref id="B11">
<label>11</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Beeler]]></surname>
<given-names><![CDATA[G.W.]]></given-names>
</name>
<name>
<surname><![CDATA[Reuter]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Reconstruction of the action potential of ventricular myocardial fibres]]></article-title>
<source><![CDATA[J. Physiol]]></source>
<year>1975</year>
<volume>268</volume>
<page-range>177-210</page-range></nlm-citation>
</ref>
<ref id="B12">
<label>12</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Luo]]></surname>
<given-names><![CDATA[C.H.]]></given-names>
</name>
<name>
<surname><![CDATA[Rudy]]></surname>
<given-names><![CDATA[Y.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A dynamic model of the cardiac action potential. ii. Afterdepolarizations, triggered activity, and potentiation]]></article-title>
<source><![CDATA[Circ. Res]]></source>
<year>1994</year>
<volume>74</volume>
<page-range>1097-113</page-range></nlm-citation>
</ref>
<ref id="B13">
<label>13</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Rogers]]></surname>
<given-names><![CDATA[J.M.]]></given-names>
</name>
<name>
<surname><![CDATA[McCullock]]></surname>
<given-names><![CDATA[A.D.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A collocation-galerkin fe of cardiac action potential propagation]]></article-title>
<source><![CDATA[IEEE Trans. on Biomedical Engineering]]></source>
<year>1994</year>
<volume>41</volume>
<page-range>743-757</page-range></nlm-citation>
</ref>
<ref id="B14">
<label>14</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Noble]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A modification of the hodgkin-huxley equations applicable to Purkinje fibre action and pace-maker potentials]]></article-title>
<source><![CDATA[J. Physiol]]></source>
<year>1962</year>
<volume>160</volume>
<page-range>317-52</page-range></nlm-citation>
</ref>
<ref id="B15">
<label>15</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[McAllister]]></surname>
<given-names><![CDATA[R.E.]]></given-names>
</name>
<name>
<surname><![CDATA[Noble]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
<name>
<surname><![CDATA[Tsien]]></surname>
<given-names><![CDATA[R.W.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Reconstruction of the electrical activity of cardiac Purkinje fibres]]></article-title>
<source><![CDATA[J. Physiol]]></source>
<year>1975</year>
<volume>251</volume>
<page-range>1-59</page-range></nlm-citation>
</ref>
<ref id="B16">
<label>16</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Luo]]></surname>
<given-names><![CDATA[C.H.]]></given-names>
</name>
<name>
<surname><![CDATA[Rudy]]></surname>
<given-names><![CDATA[Y.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A dynamic model of the cardiac ventricular action potential. i. Simulations of ionic currents and concentration changes]]></article-title>
<source><![CDATA[Circ. Res]]></source>
<year>1994</year>
<volume>74</volume>
<page-range>1071-96</page-range></nlm-citation>
</ref>
<ref id="B17">
<label>17</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Nygren]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Mathematical model of an adult human atrial cell: the role of k+ cu- rrents in repolarization]]></article-title>
<source><![CDATA[Circ. Res]]></source>
<year>1998</year>
<volume>82</volume>
<page-range>63-81</page-range></nlm-citation>
</ref>
<ref id="B18">
<label>18</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Courtemanche]]></surname>
<given-names><![CDATA[M.]]></given-names>
</name>
<name>
<surname><![CDATA[Ramírez]]></surname>
<given-names><![CDATA[R.J.]]></given-names>
</name>
<name>
<surname><![CDATA[Nattel]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Ionic mechanisms underlying human atrial action potential properties: insights from a mathematical model]]></article-title>
<source><![CDATA[Am. J. Physiol]]></source>
<year>1998</year>
<volume>275</volume>
<page-range>301-321</page-range></nlm-citation>
</ref>
<ref id="B19">
<label>19</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Courtemanche]]></surname>
<given-names><![CDATA[M.]]></given-names>
</name>
<name>
<surname><![CDATA[Ramírez]]></surname>
<given-names><![CDATA[R.J.]]></given-names>
</name>
<name>
<surname><![CDATA[Nattel]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Ionic targets for drug therapy and atrial fibrillation-induced electrical remodeling: insights from a mathematical model]]></article-title>
<source><![CDATA[Cardiovas. Res]]></source>
<year>1999</year>
<volume>42</volume>
<page-range>477-489</page-range></nlm-citation>
</ref>
<ref id="B20">
<label>20</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Turing]]></surname>
<given-names><![CDATA[A.M.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The chemical basis of morphogenesis]]></article-title>
<source><![CDATA[Phil.Trans. R. Soc]]></source>
<year>1952</year>
<volume>237</volume>
<numero>641</numero>
<issue>641</issue>
<page-range>37-72</page-range><publisher-loc><![CDATA[London ]]></publisher-loc>
</nlm-citation>
</ref>
<ref id="B21">
<label>21</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Murray]]></surname>
<given-names><![CDATA[J.D.]]></given-names>
</name>
</person-group>
<source><![CDATA[Mathematical Biology II: Spatial Models and Biomedical Applications]]></source>
<year>2003</year>
<volume>2</volume>
<edition>3</edition>
<publisher-name><![CDATA[Springer]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B22">
<label>22</label><nlm-citation citation-type="">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lepannen]]></surname>
<given-names><![CDATA[T.]]></given-names>
</name>
</person-group>
<source><![CDATA[Computational Studies of Pattern Formation in Turing Systems]]></source>
<year></year>
</nlm-citation>
</ref>
<ref id="B23">
<label>23</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Wolley]]></surname>
<given-names><![CDATA[T.E.]]></given-names>
</name>
</person-group>
<source><![CDATA[Phys. Rev. EAnalysis of stationary droplets in a generic turing reaction-diffusion system]]></source>
<year>2010</year>
<volume>82</volume>
</nlm-citation>
</ref>
<ref id="B24">
<label>24</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Varea]]></surname>
<given-names><![CDATA[C.]]></given-names>
</name>
<name>
<surname><![CDATA[Barrio]]></surname>
<given-names><![CDATA[R.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Hernández]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Soliton behaviour in reaction-diffusion model]]></article-title>
<source><![CDATA[J. Math. Biol]]></source>
<year>2007</year>
<volume>54</volume>
<page-range>797-813</page-range></nlm-citation>
</ref>
<ref id="B25">
<label>25</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Aragón]]></surname>
<given-names><![CDATA[J.L.]]></given-names>
</name>
<name>
<surname><![CDATA[Barrio]]></surname>
<given-names><![CDATA[R.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Woolley]]></surname>
<given-names><![CDATA[T.E.]]></given-names>
</name>
<name>
<surname><![CDATA[Baker]]></surname>
<given-names><![CDATA[R.E.]]></given-names>
</name>
<name>
<surname><![CDATA[Maini]]></surname>
<given-names><![CDATA[P.K.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Non-linear effects on turing patterns: Time oscillations and chaos]]></article-title>
<source><![CDATA[Phys. Rev. E.]]></source>
<year>2012</year>
<volume>86</volume>
</nlm-citation>
</ref>
<ref id="B26">
<label>26</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Strogatz]]></surname>
<given-names><![CDATA[S.H.]]></given-names>
</name>
</person-group>
<source><![CDATA[Nonlinear Dynamics And Chaos: With Applications To Physics, Biology, Chemistry, And Engineering]]></source>
<year>2008</year>
<publisher-loc><![CDATA[Cambridge^eMA MA]]></publisher-loc>
<publisher-name><![CDATA[Westview Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B27">
<label>27</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Newhouse]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
<name>
<surname><![CDATA[Ruelle]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
<name>
<surname><![CDATA[Takens]]></surname>
<given-names><![CDATA[F.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Occurrence of strange axiom a attractors near quasi periodic flows on tm, m > 3]]></article-title>
<source><![CDATA[Commun. Math. Phys]]></source>
<year>1978</year>
<volume>64</volume>
</nlm-citation>
</ref>
<ref id="B28">
<label>28</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Aragón]]></surname>
<given-names><![CDATA[J.L.]]></given-names>
</name>
<name>
<surname><![CDATA[Torres]]></surname>
<given-names><![CDATA[M.]]></given-names>
</name>
<name>
<surname><![CDATA[Gil]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
<name>
<surname><![CDATA[Barrio]]></surname>
<given-names><![CDATA[R.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Maini]]></surname>
<given-names><![CDATA[P.K.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Turing patterns with pentagonal symmetry]]></article-title>
<source><![CDATA[Phys. Rev. E]]></source>
<year>2002</year>
<volume>65</volume>
</nlm-citation>
</ref>
<ref id="B29">
<label>29</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Herlin]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
<name>
<surname><![CDATA[Jacquemet]]></surname>
<given-names><![CDATA[V.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Eikonal-base initiation of fribillatory activity in thin walled cardiac propagation models]]></article-title>
<source><![CDATA[Chaos]]></source>
<year>2011</year>
<volume>21</volume>
</nlm-citation>
</ref>
<ref id="B30">
<label>30</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Kuramoto]]></surname>
<given-names><![CDATA[Y.]]></given-names>
</name>
</person-group>
<source><![CDATA[Chemical Oscillations, Waves, and Turbulence]]></source>
<year>1984</year>
<publisher-loc><![CDATA[BerlinNewYork ]]></publisher-loc>
<publisher-name><![CDATA[Springer]]></publisher-name>
</nlm-citation>
</ref>
</ref-list>
</back>
</article>
