<?xml version="1.0" encoding="ISO-8859-1"?><article xmlns:mml="http://www.w3.org/1998/Math/MathML" xmlns:xlink="http://www.w3.org/1999/xlink" xmlns:xsi="http://www.w3.org/2001/XMLSchema-instance">
<front>
<journal-meta>
<journal-id>0187-7380</journal-id>
<journal-title><![CDATA[Revista fitotecnia mexicana]]></journal-title>
<abbrev-journal-title><![CDATA[Rev. fitotec. mex]]></abbrev-journal-title>
<issn>0187-7380</issn>
<publisher>
<publisher-name><![CDATA[Sociedad Mexicana de Fitogenética A.C.]]></publisher-name>
</publisher>
</journal-meta>
<article-meta>
<article-id>S0187-73802012000300007</article-id>
<title-group>
<article-title xml:lang="es"><![CDATA[Efecto del AG4/7 y del anillado en el tronco sobre el crecimiento del brote en Pseudotsuga menziesii (Mirb.) Franco]]></article-title>
<article-title xml:lang="en"><![CDATA[Effect of GA4/7 and stem girdling on shoot growth in Pseudotsuga menziesii (Mirb.) Franco]]></article-title>
</title-group>
<contrib-group>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Muñoz Gutiérrez]]></surname>
<given-names><![CDATA[Liliana]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Vargas Hernández]]></surname>
<given-names><![CDATA[J. Jésus]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Santos Posadas]]></surname>
<given-names><![CDATA[Héctor M. de los]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[López Upton]]></surname>
<given-names><![CDATA[Javier]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
</contrib-group>
<aff id="A01">
<institution><![CDATA[,Colegio de Postgraduados-Campus Montecillo Programa Forestal ]]></institution>
<addr-line><![CDATA[Texcoco Edo. de México]]></addr-line>
</aff>
<pub-date pub-type="pub">
<day>00</day>
<month>09</month>
<year>2012</year>
</pub-date>
<pub-date pub-type="epub">
<day>00</day>
<month>09</month>
<year>2012</year>
</pub-date>
<volume>35</volume>
<numero>3</numero>
<fpage>239</fpage>
<lpage>249</lpage>
<copyright-statement/>
<copyright-year/>
<self-uri xlink:href="http://www.scielo.org.mx/scielo.php?script=sci_arttext&amp;pid=S0187-73802012000300007&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://www.scielo.org.mx/scielo.php?script=sci_abstract&amp;pid=S0187-73802012000300007&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://www.scielo.org.mx/scielo.php?script=sci_pdf&amp;pid=S0187-73802012000300007&amp;lng=en&amp;nrm=iso"></self-uri><abstract abstract-type="short" xml:lang="es"><p><![CDATA[Para evaluar posibles efectos colaterales negativos de los tratamientos de inducción floral en individuos juveniles de Pseudotsuga menziesii sobre el desarrollo de la copa de los árboles, aquí se analizó el efecto del AG4/7 y del anillado en el tronco, así como el impacto de la formación de estróbilos femeninos, en el crecimiento de los brotes. Los tratamientos se aplicaron en dos ensayos con árboles de 10 a 13 años de edad establecidos en terreno a cielo abierto (Ensayos 1 y 2) y uno en árboles de cuatro años crecidos en maceta y vivero (Ensayo 3). Se utilizaron cuatro dosis de AG4/7 (0, 1.27, 2.55 y 5.10 mg cm-2 de área basal) inyectadas en el tronco del árbol, en combinación con el anillado del tronco (con y sin anillado). Durante el periodo de crecimiento se midió la longitud total de los brotes y se ajustó la curva de crecimiento promedio con el modelo de Schumacher. Se encontraron diferencias (P < 0.05) entre ensayos, así como entre los niveles de anillado y las dosis de AG4/7, en la longitud del brote, pero no se encontró un efecto significativo de las interacciones entre factores. En el Ensayo 1 el brote creció 30 % más que en los otros ensayos, pero en el Ensayo 2 inició primero el crecimiento y alcanzó una mayor tasa máxima de crecimiento; los árboles de menor edad del Ensayo 3 presentaron la menor longitud del brote. El anillado redujo en 9 % el crecimiento del brote y lo retrasó en 6 d con respecto a los árboles no anillados; en cambio, el AG4/7 aumentó en 12 % la longitud total del brote y aceleró su crecimiento. La formación de estróbilos femeninos ocasionó un retraso en el crecimiento del brote, pero no redujo su longitud total. El uso de AG4/7 en dosis de 1.27 mg cm-2 para inducir floración en árboles juveniles de P. menziesii no tiene efectos negativos sobre el crecimiento de los brotes; pero el uso repetido del anillado podría afectar negativamente el desarrollo y vigor de los árboles.]]></p></abstract>
<abstract abstract-type="short" xml:lang="en"><p><![CDATA[To evaluate potential negative collateral effects of flower induction treatments applied to juvenile Pseudotsuga menziesii trees on crown development (GA4/7 application, stem girdling on shoot elongation, and the impact of female cones (strobili) induction on shoot elongation), were evaluated. Induction treatments were applied in two field trials with 10 to 13-years-old trees (Trials 1 and 2) and one pot trial in the nursery with 4-years-old trees (Trial 3). Four doses of GA4/7 (0, 1.27, 2.55 and 5.10 mg cm-2 basal area), applied by injection into the tree trunk, combined with stem girdling (with or without girdling) were evaluated. During the growing period the total length of shoots was measured and the average growth curve was adjusted using the Schumacher model. Differences in shoot length were found across trials as well as among GA4/7 doses and girdling levels, but no significant interactions between factors were detected. In Trial 1, shoots grew 30 % more than in the others, but in Trial 2 shoot growth started first and reached highest maximum growth rate; the youngest trees in Trial 3 showed the shortest shoot length. Stem girdling reduced shoot growth by 9 % and slowed it by 6 d, whereas GA4/7 increased 12 % the final shoot length and accelerated its growth. The induction of female cones caused a slight delay in the shoot growth curve, but final shoot length was not reduced. Use of GA4/7 in doses of 1.27 mg cm-2 to induce flowering in juvenile trees of P. menziesii did not have negative effects on shoot growth; however, repeated use of stem girdling could negatively affect tree growth and vigor.]]></p></abstract>
<kwd-group>
<kwd lng="es"><![CDATA[Pseudotsuga menziesii]]></kwd>
<kwd lng="es"><![CDATA[ácido giberélico (AG4/7)]]></kwd>
<kwd lng="es"><![CDATA[anillado]]></kwd>
<kwd lng="es"><![CDATA[inducción floral]]></kwd>
<kwd lng="es"><![CDATA[longitud de brote]]></kwd>
<kwd lng="es"><![CDATA[tasa de crecimiento]]></kwd>
<kwd lng="en"><![CDATA[Pseudotsuga menziesii]]></kwd>
<kwd lng="en"><![CDATA[gibberellic acid (GA4/7)]]></kwd>
<kwd lng="en"><![CDATA[stem girdling]]></kwd>
<kwd lng="en"><![CDATA[flower induction]]></kwd>
<kwd lng="en"><![CDATA[shoot length]]></kwd>
<kwd lng="en"><![CDATA[growth rate]]></kwd>
</kwd-group>
</article-meta>
</front><body><![CDATA[  	    <p align="justify"><font face="verdana" size="4">Art&iacute;culos cient&iacute;ficos</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="center"><font face="verdana" size="4"><b>Efecto del AG<sub>4/7</sub> y del anillado en el tronco sobre el crecimiento del brote en</b> <b><i>Pseudotsuga menziesii</i> (Mirb.) Franco</b></font></p>  	    <p align="center"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="center"><font face="verdana" size="3"><b>Effect of GA<sub>4/7</sub> and stem girdling on shoot growth in</b> <b><i>Pseudotsuga menziesii</i> (Mirb.) Franco</b></font></p>  	    <p align="center"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="center"><font face="verdana" size="2"><b>Liliana Mu&ntilde;oz Guti&eacute;rrez<sup>1,2</sup>, J. J&eacute;sus Vargas Hern&aacute;ndez<sup>1</sup>*, H&eacute;ctor M. de los Santos</b> <b>Posadas<sup>1</sup> y Javier L&oacute;pez Upton<sup>1</sup></b></font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><sup><i>1</i></sup> <i>Programa Forestal. Colegio de Postgraduados&#45;Campus Montecillo. Km. 36.5 Carretera Federal M&eacute;xico&#45;Texcoco. 56230, Montecillo, Texcoco, Edo. de M&eacute;xico. * Autor para correspondencia</i> (<a href="mailto:vargashj@colpos.mx">vargashj@colpos.mx</a>)</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2"><i><sup>2</sup> Campo Experimental San Luis, Centro de Investigaci&oacute;n Regional del Noreste, Instituto Nacional de Investigaciones Forestales, Agr&iacute;colas y Pecuarias. Km. 14.5 Carretera San Luis&#45;Matehuala. 78430, Soledad de Graciano S&aacute;nchez, San Luis Potos&iacute;, SLP, M&eacute;xico.</i></font>	</p>     <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2">Recibido: 8 de Junio del 2011    <br> 	Aceptado: 6 de Junio del 2012</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Resumen</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Para evaluar posibles efectos colaterales negativos de los tratamientos de inducci&oacute;n floral en individuos juveniles de <i>Pseudotsuga menziesii</i> sobre el desarrollo de la copa de los &aacute;rboles, aqu&iacute; se analiz&oacute; el efecto del AG<sub>4/7</sub> y del anillado en el tronco, as&iacute; como el impacto de la formaci&oacute;n de estr&oacute;bilos femeninos, en el crecimiento de los brotes. Los tratamientos se aplicaron en dos ensayos con &aacute;rboles de 10 a 13 a&ntilde;os de edad establecidos en terreno a cielo abierto (Ensayos 1 y 2) y uno en &aacute;rboles de cuatro a&ntilde;os crecidos en maceta y vivero (Ensayo 3). Se utilizaron cuatro dosis de AG<sub>4/7</sub> (0, 1.27, 2.55 y 5.10 mg cm<sup>&#45;2</sup> de &aacute;rea basal) inyectadas en el tronco del &aacute;rbol, en combinaci&oacute;n con el anillado del tronco (con y sin anillado). Durante el periodo de crecimiento se midi&oacute; la longitud total de los brotes y se ajust&oacute; la curva de crecimiento promedio con el modelo de Schumacher. Se encontraron diferencias (P &lt; 0.05) entre ensayos, as&iacute; como entre los niveles de anillado y las dosis de AG<sub>4/7,</sub> en la longitud del brote, pero no se encontr&oacute; un efecto significativo de las interacciones entre factores. En el Ensayo 1 el brote creci&oacute; 30 % m&aacute;s que en los otros ensayos, pero en el Ensayo 2 inici&oacute; primero el crecimiento y alcanz&oacute; una mayor tasa m&aacute;xima de crecimiento; los &aacute;rboles de menor edad del Ensayo 3 presentaron la menor longitud del brote. El anillado redujo en 9 % el crecimiento del brote y lo retras&oacute; en 6 d con respecto a los &aacute;rboles no anillados; en cambio, el AG<sub>4/7</sub> aument&oacute; en 12 % la longitud total del brote y aceler&oacute; su crecimiento. La formaci&oacute;n de estr&oacute;bilos femeninos ocasion&oacute; un retraso en el crecimiento del brote, pero no redujo su longitud total. El uso de AG<sub>4/7</sub> en dosis de 1.27 mg cm<sup>&#45;2</sup> para inducir floraci&oacute;n en &aacute;rboles juveniles de <i>P. menziesii</i> no tiene efectos negativos sobre el crecimiento de los brotes; pero el uso repetido del anillado podr&iacute;a afectar negativamente el desarrollo y vigor de los &aacute;rboles.</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Palabras clave:</b> <i>Pseudotsuga menziesii</i>, &aacute;cido giber&eacute;lico (AG<sub>4/7</sub>), anillado, inducci&oacute;n floral, longitud de brote, tasa de crecimiento.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Abstract</b></font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">To evaluate potential negative collateral effects of flower induction treatments applied to juvenile <i>Pseudotsuga menziesii</i> trees on crown development (GA<sub>4/7</sub> application, stem girdling on shoot elongation, and the impact of female cones (strobili) induction on shoot elongation), were evaluated. Induction treatments were applied in two field trials with 10 to 13&#45;years&#45;old trees (Trials 1 and 2) and one pot trial in the nursery with 4&#45;years&#45;old trees (Trial 3). Four doses of GA<sub>4/7</sub> (0, 1.27, 2.55 and 5.10 mg cm<sup>&#45;2</sup> basal area), applied by injection into the tree trunk, combined with stem girdling (with or without girdling) were evaluated. During the growing period the total length of shoots was measured and the average growth curve was adjusted using the Schumacher model. Differences in shoot length were found across trials as well as among GA<sub>4/7</sub> doses and girdling levels, but no significant interactions between factors were detected. In Trial 1, shoots grew 30 % more than in the others, but in Trial 2 shoot growth started first and reached highest maximum growth rate; the youngest trees in Trial 3 showed the shortest shoot length. Stem girdling reduced shoot growth by 9 % and slowed it by 6 d, whereas GA<sub>4/7</sub> increased 12 % the final shoot length and accelerated its growth. The induction of female cones caused a slight delay in the shoot growth curve, but final shoot length was not reduced. Use of GA<sub>4/7</sub> in doses of 1.27 mg cm<sup>&#45;2</sup> to induce flowering in juvenile trees of <i>P. menziesii</i> did not have negative effects on shoot growth; however, repeated use of stem girdling could negatively affect tree growth and vigor.</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Key words:</b> <i>Pseudotsuga menziesii</i>, gibberellic acid (GA<sub>4/7</sub>), stem girdling, flower induction, shoot length, growth rate.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>INTRODUCCI&Oacute;N</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Las especies forestales le&ntilde;osas, especialmente las con&iacute;feras de clima templado fr&iacute;o, requieren de un periodo prolongado para alcanzar la madurez sexual (Philipson, 1990; Aderkas <i>et al.</i>, 2004), lo cual limita en gran medida la producci&oacute;n de semilla en los programas de mejoramiento gen&eacute;tico. Una alternativa para acelerar la producci&oacute;n de semilla en estas especies es la inducci&oacute;n de estructuras reproductivas en &aacute;rboles juveniles. Existen diferentes t&eacute;cnicas y tratamientos de cultivo utilizados con &eacute;xito para inducir floraci&oacute;n precoz en especies de con&iacute;feras, como la aplicaci&oacute;n de reguladores del crecimiento, combinada con tratamientos culturales de anillado en el tronco, poda, tratamientos de calor, sequ&iacute;a y fertilizaci&oacute;n, entre otros (Pharis <i>et al.</i>, 1980; Ross, 1983; Webber <i>et al.</i>, 1985; Bonnet, 1987a; Philipson, 1990).</font></p>  	    <p align="justify"><font face="verdana" size="2">Los tratamientos de inducci&oacute;n floral utilizados en las especies de con&iacute;feras estimulan el desarrollo de yemas laterales, seguido de la diferenciaci&oacute;n y crecimiento de las estructuras reproductivas (Greenwood, 1981); sin embargo, algunos de estos tratamientos tambi&eacute;n producen diversos tipos de estr&eacute;s o inducen competici&oacute;n por recursos entre &oacute;rganos (Ross y Bower, 1991), efectos que pueden retardar o reducir el crecimiento vegetativo de las ramillas (Pharis y Kuo, 1977) y ocasionar efectos negativos sobre el desarrollo y vigor del &aacute;rbol en a&ntilde;os posteriores. Tal efecto puede ser mayor en &aacute;rboles juveniles en los que el crecimiento vegetativo requiere mayor cantidad de recursos, mientras que en &aacute;rboles maduros los &oacute;rganos vegetativos tienen menor prioridad, por su menor tasa de crecimiento, lo que permite una mayor disponibilidad de giberelinas para los procesos reproductivos (Ross, 1983).</font></p>  	    <p align="justify"><font face="verdana" size="2">En un estudio con <i>Pseudotsuga menziesii</i> (Mirb.) Franco, la aplicaci&oacute;n de AG<sub>4/7</sub> (una mezcla de AG<sub>4</sub> y AG<sub>7</sub>) estimul&oacute; la floraci&oacute;n pero redujo la tasa relativa de crecimiento de los brotes (Cherry <i>et al.</i>, 2007) durante el periodo de desarrollo de los conos; los tratamientos que estimularon una mayor producci&oacute;n de estructuras reproductivas (AG<sub>4/7</sub> solo y AG<sub>4/7</sub> + anillado) ocasionaron menor longitud total o menor tasa de crecimiento del brote. Adem&aacute;s, la &eacute;poca de aplicaci&oacute;n del AG<sub>4/7</sub> puede influir en la respuesta del crecimiento del brote (Owens <i>et al.</i>, 1985); as&iacute;, las aplicaciones hechas al inicio del periodo de crecimiento de los brotes promueven una mayor longitud de &eacute;stos, mientras que las aplicaciones tard&iacute;as tienen muy poco efecto o ninguno. Por ejemplo, en <i>Tsuga heterophylla</i> (Raf.) Sarg., aplicaciones foliares de AG<sub>4/7</sub> a 200 mg L<sup>&#45;1</sup> durante el crecimiento del brote ocasionaron un aumento promedio de 80 % en su longitud final, pero la respuesta difiri&oacute; entre clones lo que evidencia que tambi&eacute;n influye el genotipo (Harrison y Owens, 1994).</font></p>  	    <p align="justify"><font face="verdana" size="2">Ross (1983) demostr&oacute; en <i>P. menziesii</i> que la aplicaci&oacute;n de AG<sub>4/7</sub> antes del inicio del crecimiento de las yemas vegetativas aumenta la longitud del brote pero no la floraci&oacute;n, mientras que al aplicarlo durante el periodo de r&aacute;pido crecimiento se incrementa la floraci&oacute;n pero no la longitud del brote. Consistente con lo anterior, Webber <i>et al.</i> (1985) encontraron que aplicaciones de AG<sub>4/7</sub> en <i>P. menziesii</i> estimulan preferentemente el crecimiento vegetativo y que la floraci&oacute;n ocurre s&oacute;lo cuando se aplica una dosis suficiente para satisfacer la demanda de ambos procesos.</font></p>  	    <p align="justify"><font face="verdana" size="2">En un trabajo previo (Mu&ntilde;oz&#45;Guti&eacute;rrez <i>et al.</i>, 2010) se describi&oacute; el efecto del anillado y de la aplicaci&oacute;n de diferentes dosis de AG<sub>4/7</sub> sobre la inducci&oacute;n floral en &aacute;rboles j&oacute;venes de <i>Pseudotsuga menziesii</i> originados por semilla. En este trabajo se analiza el efecto de esos mismos tratamientos sobre el crecimiento de los brotes, as&iacute; como la posible interacci&oacute;n de este proceso con la inducci&oacute;n de estructuras reproductivas, con el prop&oacute;sito de evaluar si estas t&eacute;cnicas de inducci&oacute;n reproductiva en &aacute;rboles j&oacute;venes tienen alg&uacute;n impacto colateral negativo sobre el desarrollo de la copa del &aacute;rbol.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2"><b>MATERIALES Y M&Eacute;TODOS</b></font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Localizaci&oacute;n de los ensayos de campo</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Se llevaron acabo tres ensayos independientes en el Conjunto Predial Forestal, en el municipio de Aquixtla, Puebla (19&deg; 43' 13'' LN y 97&deg; 59' 20'' LO), dos de ellos con &aacute;rboles j&oacute;venes de <i>P. menziesii</i> establecidos en el bosque y el tercero con plantas en maceta. El Ensayo 1 se efectu&oacute; en el paraje El Manantial a 2900 m de altitud, en una plantaci&oacute;n de &aacute;rboles de navidad de 10 a&ntilde;os de edad (plantados en este paraje en el 2000, a la edad de 2 a&ntilde;os; la semilla para producir estos &aacute;rboles se recolect&oacute; en Mineral del Chico, Estado de Hidalgo, 20&deg; 10' 18'' LN, 98&deg; 44' 00'' LO, 3130 m de altitud), y las plantas crecieron con luz solar plena y podas recurrentes de la copa. El Ensayo 2 se estableci&oacute; en el &Aacute;rea semillera a 2800 msnm, en una plantaci&oacute;n con &aacute;rboles de 11 a 13 a&ntilde;os de edad (plantados en 1996 y 1997, a la edad de un a&ntilde;o, originados con semilla recolectada en Terrenates, Estado de Tlaxcala, sitio ubicado a 19&deg; 31' 11'' LN, 97&deg; 53' 52'' LO, 2750 msnm; y en Huayacocotla, Estado de Veracruz, a 20&deg; 24' 16'' LN, 98&deg; 28' 06'' LO, 2510 msnm); estas plantas crecieron bajo el dosel de &aacute;rboles adultos de <i>Pinus patula</i>, sin poda de ramas durante los cuatro a&ntilde;os previos al estudio (2004&#45;2007). El Ensayo 3 se estableci&oacute; en el vivero del paraje El Manantial, a 2900 msnm, en condiciones de luz solar plena, con plantas de cuatro a&ntilde;os de edad en maceta (originados con semilla recolectada en Mineral del Chico, Estado de Hidalgo).</font></p>  	    <p align="justify"><font face="verdana" size="2">En cada paraje se instal&oacute; una micro estaci&oacute;n meteorol&oacute;gica automatizada para registrar temperatura y precipitaci&oacute;n. En cada ensayo se seleccionaron los 32 &aacute;rboles m&aacute;s homog&eacute;neos en cuanto a altura (Ensayo 1: 1.77 &plusmn; 0.10 m; Ensayo 2: 2.80 &plusmn; 0.18 m; Ensayo 3: 0.80 &plusmn; 0.13 m), di&aacute;metro (Ensayo 1: 5.4 &plusmn; 0.3 cm; Ensayo 2: 6.1 &plusmn; 0.5 cm; Ensayo 3: 2.8 &plusmn; 0.3 cm), y de condiciones de la copa. En cada &aacute;rbol se midi&oacute; el di&aacute;metro del tronco a 50 cm (Ensayos 1 y 2) o 10 cm (Ensayo 3) del suelo, para calcular el &aacute;rea transversal del mismo.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Definici&oacute;n y aplicaci&oacute;n de los tratamientos</b></font></p>  	    <p align="justify"><font face="verdana" size="2">En cada ensayo se evalu&oacute; el anillado (con y sin) en combinaci&oacute;n con cuatro dosis de AG<sub>4/7</sub> (0, 1.27, 2.55 y 5.10 mg cm<sup>&#45;2</sup> del &aacute;rea transversal del tronco, equivalentes a 0, 100, 200 y 400 mg de AG<sub>4/7</sub> en un &aacute;rbol de 10 cm de di&aacute;metro del tronco), en un arreglo factorial y dise&ntilde;o experimental completamente al azar con cuatro repeticiones. Estas concentraciones de AG son similares a las que se han utilizado en otras especies de con&iacute;feras para estimular floraci&oacute;n, pero ajustadas por las diferencias en tama&ntilde;o (&aacute;rea transversal del tronco) de los &aacute;rboles. El anillado consisti&oacute; en hacer dos cortes transversales al tronco con un serrucho, en forma de media luna, de manera que cada corte abarcara aproximadamente 60 % de la circunferencia del tronco; el primer corte se hizo a 50 cm (Ensayos 1 y 2) o a 10 cm (Ensayo 3) del suelo, y el segundo corte a una distancia del primero igual a 1.5 veces el di&aacute;metro de tronco (Mu&ntilde;oz&#45;Guti&eacute;rrez <i>et al.</i>, 2010). Los tratamientos se aplicaron al inicio del crecimiento del brote terminal y en cada &aacute;rbol se determin&oacute; el estado fenol&oacute;gico de la copa (porcentaje de brotaci&oacute;n de las yemas vegetativas en la copa del &aacute;rbol).</font></p>  	    <p align="justify"><font face="verdana" size="2">El AG<sub>4/7</sub> se aplic&oacute; en una soluci&oacute;n de alcohol et&iacute;lico a 95 % (v/v), con una concentraci&oacute;n base de 30 mg mL<sup>&#45;1</sup>, en un solo evento en los tres ensayos. En el tronco se hicieron orificios inclinados a 10 cm por arriba del anillado superior y a una altura similar en los &aacute;rboles no anillados. La cantidad requerida (mL) de soluci&oacute;n, en funci&oacute;n de la dosis y &aacute;rea transversal del tronco, se aplic&oacute; con micro pipeta; en el testigo se aplic&oacute; un volumen equivalente de alcohol et&iacute;lico a 95 %; los orificios se taparon con cera para evitar p&eacute;rdida de la soluci&oacute;n (Mu&ntilde;oz&#45;Guti&eacute;rrez <i>et al.</i>, 2010).</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Variables medidas y an&aacute;lisis de los datos</b></font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">En los 32 &aacute;rboles incluidos en cada ensayo se seleccionaron y marcaron siete (Ensayos 1 y 2) o cinco (Ensayo 3) ramillas terminales por &aacute;rbol distribuidas a lo largo de la copa y contadas a partir del &aacute;pice; cada ramilla se identific&oacute; con un list&oacute;n de color espec&iacute;fico en funci&oacute;n de su posici&oacute;n en la copa. Al momento de aplicar los tratamientos se determin&oacute; el estado fenol&oacute;gico de la yema terminal de cada ramilla y la longitud inicial del brote (en caso de que la yema ya hubiera iniciado el alargamiento del brote). Posteriormente, cada dos semanas se midi&oacute; la longitud total del brote en cada ramilla, a partir de la base de la yema terminal, con una regla graduada en mm; la toma de datos continu&oacute; durante un periodo de siete meses (del 21 de marzo hasta el 4 de octubre), para cubrir todo el periodo de crecimiento de los brotes. Cuando alguna ramilla marcada muri&oacute; o se da&ntilde;&oacute;, se elimin&oacute; de la base de datos. Con los datos de crecimiento obtenidos se gener&oacute; una curva de crecimiento para cada brote marcado.</font></p>  	    <p align="justify"><font face="verdana" size="2">Con los promedios de longitud de brote por &aacute;rbol se hizo un an&aacute;lisis de varianza para determinar el efecto de los factores ensayo, anillado y dosis de AG<sub>4/7</sub>, con el procedimiento GLM (SAS Institute, 1998); en los factores que mostraron efectos significativos se hizo una comparaci&oacute;n de medias mediante la prueba de Tukey y la prueba de contrastes (P &le; 0.05). Para evaluar el efecto de los tratamientos sobre el patr&oacute;n de crecimiento del brote, con el procedimiento MODEL (SAS Institute, 1998) se estimaron los par&aacute;metros del siguiente modelo de regresi&oacute;n no lineal: Longitud = f (dosis, anillado). Posteriormente, con los par&aacute;metros estimados se ajust&oacute; el modelo de tipo Schumacher, por medio del m&eacute;todo de m&iacute;nimos cuadrados, con el paquete estad&iacute;stico S&#45;Plus&reg; (S&#45;Plus, 2005). El modelo de Schumacher utilizado fue el siguiente:</font></p>  	    <p align="center"><font face="verdana" size="2"><img src="/img/revistas/rfm/v35n3/a7e1.jpg"></font></p>  	    <p align="justify"><font face="verdana" size="2">donde <i>Y</i> = longitud del brote (cm); <i>d</i> = n&uacute;mero de d&iacute;as; <i>e</i> = base del logaritmo natural; <i>&#946;</i><sub><i>0</i></sub> y <i>&#946;</i><sub><i>1</i></sub> = par&aacute;metros de regresi&oacute;n del modelo.</font></p>  	    <p align="justify"><font face="verdana" size="2">Este modelo permite separar los par&aacute;metros espec&iacute;ficos <i>&#946;</i><sub><i>0</i></sub> y <i>&#946;</i><sub><i>1</i></sub> que representan la as&iacute;ntota o valor m&aacute;ximo que puede alcanzar la curva de crecimiento, y la fecha en que ocurre la tasa m&aacute;xima de crecimiento acumulado, respectivamente. Para comparar el efecto de los factores ensayo, dosis de AG<sub>4/7</sub> y anillado del tronco sobre la curva de crecimiento y longitud total del brote, se tom&oacute; como base la Ec. 1, de la que se deriv&oacute; la siguiente ecuaci&oacute;n:</font></p>  	    <p align="center"><font face="verdana" size="2"><img src="/img/revistas/rfm/v35n3/a7e2.jpg"></font></p>  	    <p align="justify"><font face="verdana" size="2">donde: <i>D</i><sub><i>i</i></sub> = variable indicadora del <i>i&#45;&eacute;simo</i> nivel de dosis; <i>A</i><sub><i>j</i></sub> = variable indicadora del <i>j&#45;&eacute;simo</i> nivel de anillado; y <i>E</i><sub><i>k</i></sub> = variable indicadora del <i>k&#45;&eacute;simo</i> ensayo; las dem&aacute;s variables fueron definidas anteriormente.</font></p>  	    <p align="justify"><font face="verdana" size="2">Para evaluar la relaci&oacute;n entre la inducci&oacute;n de estructuras reproductivas y el crecimiento del brote, se hizo un an&aacute;lisis de varianza de la longitud total del brote en los &aacute;rboles del Ensayo 2, en el que se obtuvo la mayor proporci&oacute;n de &aacute;rboles con estructuras reproductivas; los &aacute;rboles de este ensayo que recibieron dosis de 1.27 y 5.10 mg cm<sup>&#45;2</sup> de AG<sub>4/7</sub> se separaron en dos grupos (&aacute;rboles con y sin estr&oacute;bilos), y se compar&oacute; la longitud promedio del brote entre ellos. Adem&aacute;s, se compar&oacute; la curva de crecimiento del brote de los dos grupos de &aacute;rboles mediante el procedimiento de ajuste del modelo de Schumacher (Ec. 1) descrito anteriormente:</font></p>  	    <p align="center"><font face="verdana" size="2"><img src="/img/revistas/rfm/v35n3/a7e3.jpg"></font></p>  	    <p align="justify"><font face="verdana" size="2">donde <i>F</i> = variable indicadora de la formaci&oacute;n de estr&oacute;bilos femeninos; las dem&aacute;s variables fueron definidas anteriormente.</font></p>  	    ]]></body>
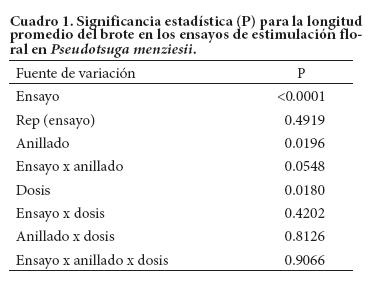
<body><![CDATA[<p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>RESULTADOS</b></font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Crecimiento promedio del brote en los tres ensayos</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Los an&aacute;lisis de varianza mostraron diferencias significativas entre ensayos (P &lt; 0.001), entre niveles de anillado y entre dosis de AG<sub>4/7</sub> (P &lt; 0.05), en la longitud del brote al final del periodo de crecimiento, pero no se encontr&oacute; efecto significativo de las interacciones entre los factores evaluados (<a href="#c1">Cuadro 1</a>).</font></p>  	    <p align="center"><font face="verdana" size="2"><a name="c1"></a></font></p>  	    <p align="center"><font face="verdana" size="2"><img src="/img/revistas/rfm/v35n3/a7c1.jpg"></font></p>  	    <p align="justify"><font face="verdana" size="2">El crecimiento total del brote en el Ensayo 1 fue 30 % mayor que en el Ensayo 2 (28.2 <i>vs.</i> 21.6 cm), en &aacute;rboles de edad similar; en los &aacute;rboles m&aacute;s j&oacute;venes del Ensayo 3 el crecimiento del brote fue menor (<a href="/img/revistas/rfm/v35n3/a7f1.jpg" target="_blank">Figura 1a</a>). Por otro lado, el anillado en el tronco redujo en 9 % la longitud promedio del brote (21.3 <i>vs.</i> 23.3 cm; <a href="/img/revistas/rfm/v35n3/a7f1.jpg" target="_blank">Figura 1b</a>) mientras que la aplicaci&oacute;n de AG<sub>4/7</sub> aument&oacute; 12 % en promedio la longitud del brote con respecto a los &aacute;rboles que no recibieron este regulador del crecimiento (<a href="/img/revistas/rfm/v35n3/a7f1.jpg" target="_blank">Figura 1c</a>); la prueba de contrastes indic&oacute; que el testigo (sin AG<sub>4/7</sub>) fue menor (P &le; 0.01) al promedio de los &aacute;rboles que recibieron AG<sub>4/7</sub>.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Par&aacute;metros estimados del modelo de</b> <b>crecimiento del brote</b></font></p>  	    <p align="justify"><font face="verdana" size="2">La mayor&iacute;a de los factores evaluados tuvieron un efecto significativo en el patr&oacute;n de crecimiento del brote (<a href="/img/revistas/rfm/v35n3/a7c2.jpg" target="_blank">Cuadro 2</a>). El modelo b&aacute;sico (<i>&#946;</i><sub><i>00</i></sub> y <i>&#946;</i><sub><i>10</i></sub>) representa la curva de crecimiento del brote en los &aacute;rboles testigo del Ensayo 3 (sin anillado y sin AG<sub>4/7</sub> ); los otros par&aacute;metros muestran el efecto aditivo de la dosis de AG<sub>4/7</sub>, del anillado y del ensayo, que influyeron tanto en el crecimiento total del brote (<i>&#946;</i><sub><i>0</i></sub>) como en el momento en que ocurri&oacute; la tasa m&aacute;xima de crecimiento acumulado (<i>&#946;</i><sub><i>1</i></sub>); los valores positivos o negativos de los par&aacute;metros indican si el efecto espec&iacute;fico de cada factor fue aumentar o reducir los valores respectivos (<i>&#946;</i><sub><i>00</i></sub> y <i>&#946;</i><sub><i>10</i></sub>) en el modelo b&aacute;sico. Por ejemplo, en la <a href="/img/revistas/rfm/v35n3/a7f2.jpg" target="_blank">Figura 2</a> se observa que los &aacute;rboles del Ensayo 1 alcanzaron una mayor longitud del brote (<i>&#946;</i><sub><i>0E1</i></sub> =13.13) que en los otros ensayos, pero los &aacute;rboles del Ensayo 2 iniciaron primero el alargamiento del brote y alcanzaron la tasa m&aacute;xima de crecimiento acumulado casi un mes antes (<i>&#946;</i><sub><i>1E2</i></sub> = &#45;37.05) que en los otros dos ensayos. En el Ensayo 3, con &aacute;rboles en un estado fenol&oacute;gico menos avanzado que en los otros dos ensayos, el alargamiento del brote se retras&oacute; y tuvo menor tasa de crecimiento y menor crecimiento potencial (<a href="/img/revistas/rfm/v35n3/a7f2.jpg" target="_blank">Figura 2b</a>).</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Efecto del anillado y de la dosis de AG<sub>4/7</sub></b> <b>sobre el crecimiento del brote</b></font></p>  	    <p align="justify"><font face="verdana" size="2">El anillado redujo y retras&oacute; el crecimiento del brote en los tres ensayos (<a href="/img/revistas/rfm/v35n3/a7f3.jpg" target="_blank">Figura 3</a>); en promedio, el crecimiento potencial estimado en los &aacute;rboles no anillados fue 18 % mayor (38.6 <i>vs.</i> 35.4 cm en el Ensayo 1), y la tasa m&aacute;xima de crecimiento se alcanz&oacute; casi 6 d antes que en los &aacute;rboles anillados (<i>&#946;</i><sub><i>1A1</i></sub> = 5.86). De la misma manera, la tasa m&aacute;xima de crecimiento acumulado fue 22 % mayor en los arboles no anillados.</font></p>  	    <p align="justify"><font face="verdana" size="2">Consistentemente, la dosis de 2.55 mg cm<sup>&#45;2</sup> de AG<sub>4/7</sub> ocasion&oacute; el mayor alargamiento del brote en los tres ensayos, 12 % mayor que en los &aacute;rboles testigo (<a href="/img/revistas/rfm/v35n3/a7f4.jpg" target="_blank">Figura 4</a>); sin embargo, tambi&eacute;n ocasion&oacute; un retraso de 11 d para alcanzar la tasa m&aacute;xima de crecimiento acumulado (<i>&#946;</i><sub><i>1D2</i></sub> = 11.80). En contraste, la dosis de 1.27 mg cm<sup>&#45;2</sup> tuvo un efecto menor sobre el crecimiento total del brote, pero aceler&oacute; en casi 6 d la fecha (<i>&#946;</i><sub><i>1D1</i></sub> = &#45;5.66) de la tasa m&aacute;xima de crecimiento (<a href="/img/revistas/rfm/v35n3/a7c2.jpg" target="_blank">Cuadro 2</a>) con respecto al testigo. Las mayores tasas de crecimiento en los tres ensayos se alcanzaron con la dosis baja (1.27 mg cm<sup>&#45;2</sup>) de AG<sub>4/7</sub>.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Relaci&oacute;n entre inducci&oacute;n floral</b> <b>y crecimiento del brote</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Los an&aacute;lisis de varianza no indicaron diferencias significativas en el crecimiento total del brote en los &aacute;rboles del Ensayo 2 por efecto de la formaci&oacute;n de estr&oacute;bilos femeninos o por la dosis de AG<sub>4/7</sub> (1.27 <i>vs.</i> 5.10 mg cm<sup>&#45;2</sup>). Sin embargo, el an&aacute;lisis de regresi&oacute;n de las curvas de crecimiento del brote mostr&oacute; que la floraci&oacute;n influy&oacute; sobre la fecha de la tasa m&aacute;xima (<i>&#946;</i><sub><i>1F</i></sub>) de crecimiento, y que la dosis de AG<sub>4/7</sub> afect&oacute; su valor m&aacute;ximo (<i>&#946;</i><sub><i>0D3</i></sub>) o crecimiento potencial (<a href="/img/revistas/rfm/v35n3/a7c3.jpg" target="_blank">Cuadro 3</a>). Aunque la formaci&oacute;n de estr&oacute;bilos femeninos no redujo el crecimiento potencial del brote, caus&oacute; un retraso de 10 d (<i>&#946;</i><sub><i>1F</i></sub> = 9.62) en la fecha en que ocurri&oacute; la tasa m&aacute;xima de crecimiento, as&iacute; como una reducci&oacute;n en &eacute;sta (<a href="/img/revistas/rfm/v35n3/a7f5.jpg" target="_blank">Figura 5</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>DISCUSI&Oacute;N</b></font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Diferencias entre ensayos</b></font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">Las diferencias observadas entre ensayos en la longitud total del brote se pueden deber a diversos factores, que incluyen la edad y las condiciones de crecimiento y manejo de los &aacute;rboles. Las plantas del Ensayo 3 eran m&aacute;s j&oacute;venes que las de los otros dos ensayos y en las especies de con&iacute;feras el crecimiento anual del brote aumenta gradualmente con la edad en los primeros a&ntilde;os de vida (Borchert, 1976). Los &aacute;rboles del Ensayo 1 fueron podados el a&ntilde;o previo y se encontraban creciendo a plena luz solar, a diferencia de los &aacute;rboles del Ensayo 2 que crecieron bajo sombra y no fueron podados en los &uacute;ltimos a&ntilde;os. Tambi&eacute;n pueden deberse al estado fenol&oacute;gico del brote al momento de la aplicaci&oacute;n de los tratamientos, ya que los &aacute;rboles del Ensayo 2 se encontraban m&aacute;s avanzados fenol&oacute;gicamente que los del Ensayo 1 (Mu&ntilde;oz&#45;Guti&eacute;rrez <i>et al.</i>, 2010); por tanto, el efecto de los tratamientos en el Ensayo 2 pudo haber sido menor.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Efecto de la aplicaci&oacute;n de AG<sub>4/7</sub></b></font></p>  	    <p align="justify"><font face="verdana" size="2">Los tratamientos con AG<sub>4/7</sub> para inducir floraci&oacute;n influyeron en el crecimiento de los brotes, consistente con el estudio de Pharis y Kuo (1977), quienes reportaron que en especies de con&iacute;feras la inducci&oacute;n de estructuras reproductivas por medio de AG<sub>4/7</sub> a menudo est&aacute; acompa&ntilde;ada por un incremento en el crecimiento del brote, mientras que otras t&eacute;cnicas de inducci&oacute;n pueden retrasar y reducir el crecimiento (Bonnet <i>et al.</i>, 1982).</font></p>  	    <p align="justify"><font face="verdana" size="2">En el presente trabajo se encontr&oacute; que en los &aacute;rboles que recibieron AG<sub>4/7</sub> los brotes crecieron en promedio 12 % m&aacute;s que en los &aacute;rboles testigo. Sin embargo, en otros estudios se ha encontrado que el AG<sub>4/7</sub> no tiene efecto sobre la longitud final del brote, como en <i>Tsuga</i> <i>heterophylla</i> (Harrison y Owens, 1994), <i>Picea mariana</i> (P. Mill.) B. S. P. (Smith y Greenwood, 1997) y <i>P. menziesii</i> (Ross y Pharis, 1976), pero s&iacute; en la tasa m&aacute;xima de crecimiento. Ho y Eng (1995), por ejemplo, determinaron que el AG<sub>4/7</sub> acelera el crecimiento de los brotes en <i>Pinus strobus</i> L. aunque no haya tenido efecto sobre la longitud final. En el presente estudio, las mayores tasas de crecimiento acumulado se alcanzaron cuando se utiliz&oacute; una dosis baja de AG<sub>4/7</sub>.</font></p>  	    <p align="justify"><font face="verdana" size="2">Seg&uacute;n Ross (1983), el AG<sub>4/7</sub> no afecta el patr&oacute;n de crecimiento del brote, sino s&oacute;lo la tasa de crecimiento y la longitud final. En cambio, la tasa de crecimiento de los brotes depende de la fenolog&iacute;a del &aacute;rbol; por su parte, Owens e<i>t</i> <i>al.</i> (1985) se&ntilde;alaron que al momento de reactivaci&oacute;n de las yemas en <i>P. menziesii</i> la divisi&oacute;n celular es frecuente, pero no el alargamiento de las c&eacute;lulas; despu&eacute;s de la brotaci&oacute;n la divisi&oacute;n celular disminuye y el alargamiento de las c&eacute;lulas incrementa r&aacute;pidamente y contin&uacute;a hasta que el brote alcanza 90 % de su longitud final. La acci&oacute;n de las giberelinas depende de varios factores, como la posici&oacute;n del brote en la copa, la disponibilidad de luz, y el momento y m&eacute;todo de aplicaci&oacute;n (Chalupka, 1980), entre otros.</font></p>  	    <p align="justify"><font face="verdana" size="2">Owens <i>et al.</i> (1985) demostraron la importancia de la &eacute;poca de aplicaci&oacute;n del AG<sub>4/7</sub> debido a su efecto diferencial sobre la divisi&oacute;n y el alargamiento de las c&eacute;lulas. Ross (1983) obtuvo el m&aacute;ximo crecimiento del brote cuando el AG<sub>4/7</sub> se aplic&oacute; antes de la reactivaci&oacute;n de las yemas, pero s&oacute;lo hubo un leve incremento cuando se aplic&oacute; 4.5 semanas despu&eacute;s de la reactivaci&oacute;n; esto sugiere que el AG<sub>4/7</sub> afecta principalmente el alargamiento de las c&eacute;lulas. Adem&aacute;s, el nivel y distribuci&oacute;n de carbohidratos var&iacute;a durante el crecimiento del brote, por lo que la competici&oacute;n entre &oacute;rganos por estos recursos tambi&eacute;n influye sobre la longitud total del brote en &aacute;rboles con diferentes condiciones fisiol&oacute;gicas y ambientales (Owens <i>et al.</i>, 1985; Ross y Bower, 1991).</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Efecto del anillado en el tronco</b></font></p>  	    <p align="justify"><font face="verdana" size="2">En otras especies se han encontrado resultados similares en el efecto colateral del anillado sobre el crecimiento del brote; en &aacute;rboles injertados de <i>Picea sitchensis</i> el anillado redujo en 15 % la longitud anual del brote con respecto a los &aacute;rboles no anillados (Longman <i>et al.</i>, 1986); sin embargo, en <i>P. menziesii</i> se observ&oacute; un aumento en la longitud promedio del brote (0.98 <i>vs</i>. 1.27 m a&ntilde;o<sup>&#45;1</sup>) por efecto del anillado, y en <i>Pinus contorta</i> Dougl. y <i>P. rigida</i> (Mill.) la longitud de brote no se afect&oacute; (Wilson y Gartner, 2002). Las diferencias entre estudios pueden deberse a diferencias en el momento de realizar el anillado, ya que en las especies de <i>Pinus</i> se hizo antes de que iniciara el crecimiento del brote, mientras que en <i>P. menziesii</i> fue durante la reactivaci&oacute;n de las yemas.</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">Cuando se anilla el tronco se afecta parcialmente el floema, lo que ocasiona un bloqueo en el transporte de carbohidratos y de las hormonas de crecimiento; adem&aacute;s, el anillado reduce la conductividad hidr&aacute;ulica del xilema, y ocasiona un estr&eacute;s que afecta el crecimiento del &aacute;rbol (Zwieniecki <i>et</i> <i>al.</i>, 2004). El anillado en el tronco tambi&eacute;n puede estimular el flujo de carbohidratos (Ebell, 1971), o reducir la disponibilidad de carbohidratos a la ra&iacute;z y provocar un estr&eacute;s. Los tratamientos culturales que provocan estr&eacute;s pueden alterar el metabolismo de las giberelinas, ya sea para incrementar o reducir su disponibilidad (Philipson, 1985).</font></p>  	    <p align="justify"><font face="verdana" size="2">En el efecto del anillado influyen muchos factores, como especie, edad del &aacute;rbol, tipo de herida, severidad de la herida, regulaci&oacute;n de la herida y la interacci&oacute;n con otros tratamientos o condiciones como la fertilizaci&oacute;n, estr&eacute;s por humedad, factores clim&aacute;ticos (Puritch, 1972; Bonnet 1987a; Ross y Bower, 1991), entre otros. Al respecto, Ross <i>et al.</i> (1984) se&ntilde;alaron que los factores que inducen estr&eacute;s, combinados con aplicaciones de AG, tienen un efecto sin&eacute;rgico sobre la floraci&oacute;n. Esto apoya la hip&oacute;tesis de que las giberelinas causan una redistribuci&oacute;n de nutrientes dentro de los brotes, lo que puede retrasar su desarrollo. No obstante, en este trabajo no se encontr&oacute; una interacci&oacute;n significativa de los factores evaluados (<a href="#c1">Cuadro 1</a>).</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Efecto de la inducci&oacute;n floral sobre el</b> <b>crecimiento del brote</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Contrario a lo esperado, no se detect&oacute; un efecto negativo de la formaci&oacute;n de estr&oacute;bilos femeninos sobre el crecimiento total del brote en los &aacute;rboles que recibieron AG<sub>4/7</sub>. Aunque se observ&oacute; un retraso en la velocidad de crecimiento del brote y una reducci&oacute;n en la tasa m&aacute;xima de crecimiento en los &aacute;rboles con estr&oacute;bilos femeninos (<a href="/img/revistas/rfm/v35n3/a7f5.jpg" target="_blank">Figura 5</a>), la longitud promedio del brote fue similar en los dos grupos de &aacute;rboles. Estos resultados muestran una posible competici&oacute;n temporal por recursos entre el crecimiento reproductivo y el vegetativo en los &aacute;rboles que fueron estimulados con AG<sub>4/7</sub>, pero tal efecto no fue suficiente para afectar negativamente el crecimiento total del brote.</font></p>  	    <p align="justify"><font face="verdana" size="2">En un estudio con &aacute;rboles de 9 a 10 a&ntilde;os de edad de <i>P.</i> <i>menziesii</i>, en familias con un historial de floraci&oacute;n conocido, se encontr&oacute; que las giberelinas aumentaron en mayor grado la longitud del brote en las familias con menor producci&oacute;n de conos (Webber <i>et al.</i>, 1985). En otro estudio, los &aacute;rboles con estr&oacute;bilos mostraron menor crecimiento del brote que los que no formaron estr&oacute;bilos (Bonnet, 1987b). Los estr&oacute;bilos femeninos pueden competir con el crecimiento del brote por recursos, especialmente en el segundo a&ntilde;o cuando est&aacute;n en pleno desarrollo, aunque no siempre limitan su crecimiento (Dick <i>et al.</i>, 1990).</font></p>  	    <p align="justify"><font face="verdana" size="2">Otros autores han indicado que la producci&oacute;n de estr&oacute;bilos de ambos sexos aumenta con la edad del &aacute;rbol, mientras que el crecimiento de los brotes se reduce (Greenwood, 1981). En <i>P. menziesii</i>, la respuesta de los brotes al AG<sub>4/7</sub> disminuye con la edad, mientras que la floraci&oacute;n (en particular masculina) aumenta (Ross, 1983). Sin embargo, determinar el grado de competici&oacute;n entre los estr&oacute;bilos femeninos y el crecimiento de los brotes es muy complejo, ya que es dif&iacute;cil comparar adecuadamente los estados reproductivos y vegetativos de &aacute;rboles con diferencias gen&eacute;ticas entre ellos, por el estado fisiol&oacute;gico y por otros factores asociados con la producci&oacute;n de estr&oacute;bilos (Dick <i>et al.</i>, 1990; Ross y Bower, 1991).</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>Implicaciones para el manejo</b></font></p>  	    <p align="justify"><font face="verdana" size="2">El uso de t&eacute;cnicas para estimular la diferenciaci&oacute;n de estructuras reproductoras en individuos juveniles de <i>Pseudotsuga menziesii</i> y de otras especies de con&iacute;feras que requieren de muchos a&ntilde;os para alcanzar la madurez sexual, es cada vez m&aacute;s importante en la producci&oacute;n de semilla de calidad requerida para abastecer los programas de plantaciones forestales en M&eacute;xico o para asegurar la conservaci&oacute;n de las especies forestales amenazadas.</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">Los resultados del estudio mostraron que algunos tratamientos tienen efectos colaterales sobre el crecimiento de las ramillas y el desarrollo de la copa. Sin embargo, a diferencia de otros estudios en donde se han encontrado reducciones importantes en el desarrollo de la copa y vigor de los &aacute;rboles por el uso de AG<sub>4/7</sub> o del anillado para estimular floraci&oacute;n (Ross y Bower, 1991; Cherry <i>et al.</i>, 2007), el principal efecto negativo en este caso fue una ligera reducci&oacute;n en la longitud total del brote y un retraso en su curva decrecimiento, ocasionados por el anillado del tronco y por la competici&oacute;n con los estr&oacute;bilos. La magnitud del efecto colateral podr&iacute;a aumentar con el uso recurrente de tratamientos de inducci&oacute;n floral, especialmente del anillado en los &aacute;rboles de menor edad o tama&ntilde;o.</font></p>  	    <p align="justify"><font face="verdana" size="2">Para reducir los riesgos de una p&eacute;rdida de vigor en los &aacute;rboles por el uso recurrente del anillado es importante considerar otras pr&aacute;cticas de manejo complementarias, como el riego y la fertilizaci&oacute;n, que reduzcan el nivel y duraci&oacute;n del estr&eacute;s fisiol&oacute;gico o permitan un mayor periodo de recuperaci&oacute;n antes de anillar nuevamente el tronco. En el caso del AG<sub>4/7</sub> no se encontraron efectos negativos sobre el crecimiento del brote, por lo que se podr&iacute;an hacer aplicaciones cada a&ntilde;o; en este caso se sugiere utilizar la dosis baja (1.27 mg cm<sup>&#45;2</sup>), ya que a mediano plazo esta dosis ocasionar&iacute;a menor da&ntilde;o por heridas en el tronco y menor riesgo de efectos t&oacute;xicos en los &aacute;rboles, adem&aacute;s del menor costo de aplicaci&oacute;n.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>CONCLUSIONES</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Los tratamientos de AG<sub>4/7</sub> y anillado en el tronco que promovieron la formaci&oacute;n de estructuras reproductivas tambi&eacute;n afectaron el crecimiento de los brotes; el anillado redujo la longitud final del brote y la tasa m&aacute;xima de crecimiento, y retras&oacute; la velocidad de crecimiento. La aplicaci&oacute;n de giberelinas, en cambio, aument&oacute; la longitud total y la tasa m&aacute;xima de crecimiento del brote en los tres ensayos, y aceler&oacute; la velocidad de crecimiento, especialmente con dosis bajas de AG<sub>4/7</sub>. El efecto de los tratamientos fue consistente en los tres ensayos realizados con &aacute;rboles de diferente edad, a pesar de las diferencias en el crecimiento del brote asociadas con la edad y con las condiciones ambientales de cada ensayo.</font></p>  	    <p align="justify"><font face="verdana" size="2">En los &aacute;rboles que recibieron AG<sub>4/7</sub> no se encontr&oacute; un efecto negativo de la formaci&oacute;n de estr&oacute;bilos sobre el crecimiento total del brote, pero s&iacute; un retraso en la curva de crecimiento, evidencia de una posible competici&oacute;n temporal por recursos entre ambos procesos durante el primer a&ntilde;o de los tratamientos. Debido a lo anterior, el uso repetido del anillado para inducir floraci&oacute;n en &aacute;rboles juveniles de <i>Pseudotsuga menziesii</i> podr&iacute;a afectar negativamente el desarrollo de la copa, pero la aplicaci&oacute;n de AG<sub>4/7</sub> en dosis bajas no tiene estos efectos colaterales negativos.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    <p align="justify"><font face="verdana" size="2"><b>AGRADECIMIENTOS</b></font></p>  	    <p align="justify"><font face="verdana" size="2">Al Ing. Le&oacute;n Jorge Casta&ntilde;os Mart&iacute;nez y al Ing. Salvador Castro Zavala, propietarios del Conjunto Predial Forestal, por todas las facilidades y apoyo log&iacute;stico proporcionado durante la realizaci&oacute;n del estudio.</font></p>  	    <p align="justify"><font face="verdana" size="2">&nbsp;</font></p>  	    ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2"><b>BIBLIOGRAF&Iacute;A</b></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Aderkas P, L Kong, S Abrams, I Zaharia, S Owens, B Porter (2004)</b> Flower Induction Methods for Lodgepole Pine and Douglas&#45;fir. Centre for Forest Biology, University of Victoria. 59 p.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212619&pid=S0187-7380201200030000700001&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Bonnet M M (1987a)</b> Floral induction in conifers: a review of available techniques. For. Ecol. Manage. 19:135&#45;146.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212621&pid=S0187-7380201200030000700002&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Bonnet M M (1987b)</b> Preliminary results on gibberellins induction of flowering of seedlings and cuttings of Norway spruce indicate some carry&#45;over effects. For. Ecol. Manage. 19:163&#45;171.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212623&pid=S0187-7380201200030000700003&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Bonnet M M, P Delanzy, G Chanteloup, J Coupaye (1982)</b> Influence de I'&eacute;tat d'activit&eacute; des raciness sur la floraison induite par des gibberellines 4 et 7 chez <i>Pseudotsuga mensiesii</i> (Mirb.) Franco. Silvae Genet. 31:178&#45;183.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212625&pid=S0187-7380201200030000700004&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Borchert R (1976)</b> Differences in shoot growth patterns between juvenile and adult trees and their interpretation based on systems analysis of trees. Acta Hort. 56:123&#45;130.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212627&pid=S0187-7380201200030000700005&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Chalupka W (1980)</b> Regulation of flowering in Scots pine (<i>Pinus sylvestris</i> L.) grafts by gibberellins. Silvae Genet. 29:118&#45;121.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212629&pid=S0187-7380201200030000700006&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Cherry M L, T S Anekonda, M J Albrecht, G T Howe (2007)</b> Flower stimulation in young miniaturized seed orchards of Douglas&#45;fir (<i>Pseudotsuga menziesii</i>). Can. J. For. Res. 37:1&#45;10.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212631&pid=S0187-7380201200030000700007&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Dick J McP, R R B Leakey, P G Jarvis (1990)</b> Influence of female cones on the vegetative growth of <i>Pinus contorta</i> trees. Tree Physiol. 6:151&#45;163.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212633&pid=S0187-7380201200030000700008&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Ebell L F (1971)</b> Girdling: its effect on carbohydrate status and on reproductive bud and cone development of Douglas&#45;fir. Can. J. Bot. 45:453&#45;466.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212635&pid=S0187-7380201200030000700009&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Greenwood M S (1981)</b> Reproductive development in loblolly pine. II. The effect of age, gibberellins plus water stress and out&#45;of&#45;phase dormancy on long shoot growth behavior. Amer. J. Bot. 68:1184&#45;1190.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212637&pid=S0187-7380201200030000700010&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Harrison D L S, J N Owens (1994)</b> Gibberellins A<sub>4/7</sub> enhanced flowering in <i>Tsuga heterophylla</i>. II. Apical development and shoot formation. Int. J. Plant Sci. 155:302&#45;312.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212639&pid=S0187-7380201200030000700011&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Ho R H, K Eng (1995)</b> Promotion of cone production on field&#45;grown eastern white pine grafts by gibberellin A<sub>4/7</sub> application. For. Ecol. Manage. 75:11&#45;16.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212641&pid=S0187-7380201200030000700012&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Longman K A, J McP Dick, M Mugglestone, R I Smith (1986)</b> Effects of gibberellins A4+7 and bark&#45;ringing on cone initiation in mature <i>Picea sitchensis</i> grafts. Tree Physiol. 1:101&#45;113.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212643&pid=S0187-7380201200030000700013&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Mu&ntilde;oz&#45;Guti&eacute;rrez L, J J Vargas&#45;Hern&aacute;ndez, J L&oacute;pez&#45;Upton, N Guti&eacute;rrez&#45;Rangel (2010)</b> Inducci&oacute;n de estructuras reproductivas en <i>Pseudotsuga menziesii.</i> Agrociencia 44:835&#45;847.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212645&pid=S0187-7380201200030000700014&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Owens J N, J E Webber, S D Ross, R P Pharis (1985)</b> Interaction between gibberellins A<sub>4/7</sub> and root&#45;pruning on the reproductive and vegetative processes in Douglas&#45;fir. III. Effects on anatomy of shoot elongation and terminal bud development. Can. J. For. Res. 15:354&#45;364.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212647&pid=S0187-7380201200030000700015&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Pharis R P, C G Kuo (1977)</b> Physiology of gibberellins in conifers. Can. J. For. Res. 7:299&#45;325.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212649&pid=S0187-7380201200030000700016&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Pharis R P, S D Ross, E E McMullan (1980)</b> Promotion of flowering in the Pinaceae by gibberellins. III. Seedlings of Douglas&#45;fir. Physiol. Plant. 50:119&#45;126.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212651&pid=S0187-7380201200030000700017&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Philipson J J (1985)</b> The promotion of flowering in large field&#45;grown Sitka spruce by girdling and stem injections of gibberellins A<sub>4/7</sub>. Can. J. For. Res. 15:166&#45;170.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212653&pid=S0187-7380201200030000700018&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Philipson J J (1990)</b> Prospects for enhancing flowering of conifers and broadleaves of potential silvicultural importance in Britain. Forestry 63:223&#45;240.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212655&pid=S0187-7380201200030000700019&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Puritch G S (1972)</b> Cone Production in Conifers. Pacific Forest Research Centre, Canadian Forest Service Inf. Rep. BC&#45;X&#45;65, Victoria BC. 94 p.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212657&pid=S0187-7380201200030000700020&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Ross S D (1983)</b> Enhancement of shoot elongation in Douglas&#45;fir by gibberellins A<sub>4/7</sub> and its relation to the hormonal promotion of flowering. Can. J. For. Res. 13:986&#45;994.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212659&pid=S0187-7380201200030000700021&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Ross S D, R C Bower (1991)</b> Promotion of seed production in Douglas&#45;fir grafts by girdling + gibberellin A<sub>4/7</sub> stem injection, and effect of retreatment. New For. 5:23&#45;34.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212661&pid=S0187-7380201200030000700022&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Ross S D, R P Pharis (1976)</b> Promotion of flowering in the Pinaceae by gibberellins. I. Sexually mature, non&#45;flowering grafts of Douglas&#45;fir. Physiol. Plant. 36:182&#45;186.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212663&pid=S0187-7380201200030000700023&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Ross S D, M P Bollmann, R P Pharis, G B Sweet (1984)</b> Gibberellin A<sub>4/7</sub> and the promotion of flowering in <i>Pinus radiata</i>. Effects on partitioning of photoassimilate within the bud during primordial differentiation. Plant Physiol. 76:326&#45;330.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212665&pid=S0187-7380201200030000700024&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>SAS Institute (1998)</b> SAS User's Guide: Statistics. Release 6.03 Ed. SAS Institute, Inc. Cary, NC. 1028 p.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212667&pid=S0187-7380201200030000700025&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Smith R F, M S Greenwood (1997)</b> Effects of cone&#45;induction treatments on black spruce (<i>Picea mariana</i>) current&#45;year needle development and gas exchange properties. Tree Physiol. 17:407&#45;414.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212669&pid=S0187-7380201200030000700026&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>S&#45;Plus (2005)</b> S&#45;Plus 7.0 Guide to Statistics Vol. 1. Insightful Corporation. Seattle, Washigton.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212671&pid=S0187-7380201200030000700027&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Webber J E, S D Ross, R P Pharis, J N Owens (1985)</b> Interaction between gibberellin A<sub>4/7</sub> and root&#45;pruning on the reproductive and vegetative process in Douglas&#45;fir. II. Effects on shoot elongation and its relationship to flowering. Can. J. For. Res. 15:348&#45;353.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212673&pid=S0187-7380201200030000700028&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Wilson B F, B L Gartner (2002)</b> Effects of phloem girdling in conifers on apical control of branches, growth allocation and air in wood. Tree Physiol. 22:347&#45;353.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212675&pid=S0187-7380201200030000700029&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>  	    <!-- ref --><p align="justify"><font face="verdana" size="2"><b>Zwieniecki M A, P J Melcher, T S Field, N M Holbrook (2004)</b> A potential role for xylem&#45;phloem interactions in the hydraulic architecture of trees: effects of phloem girdling on xylem hydraulic conductance. Tree Physiol. 24:911&#45;917.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=7212677&pid=S0187-7380201200030000700030&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>      ]]></body>
<back>
<ref-list>
<ref id="B1">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Aderkas]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Kong]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
<name>
<surname><![CDATA[Abrams]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Zaharia]]></surname>
<given-names><![CDATA[I]]></given-names>
</name>
<name>
<surname><![CDATA[Owens]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Porter]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
</person-group>
<source><![CDATA[Flower Induction Methods for Lodgepole Pine and Douglas-fir]]></source>
<year>2004</year>
<page-range>59</page-range><publisher-name><![CDATA[Centre for Forest Biology, University of Victoria]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B2">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bonnet]]></surname>
<given-names><![CDATA[M M]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Floral induction in conifers: a review of available techniques]]></article-title>
<source><![CDATA[For. Ecol. Manage.]]></source>
<year>1987</year>
<numero>19</numero>
<issue>19</issue>
<page-range>135-146</page-range></nlm-citation>
</ref>
<ref id="B3">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bonnet]]></surname>
<given-names><![CDATA[M M]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Preliminary results on gibberellins induction of flowering of seedlings and cuttings of Norway spruce indicate some carry-over effects]]></article-title>
<source><![CDATA[For. Ecol. Manage.]]></source>
<year>1987</year>
<numero>19</numero>
<issue>19</issue>
<page-range>163-171</page-range></nlm-citation>
</ref>
<ref id="B4">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bonnet]]></surname>
<given-names><![CDATA[M M]]></given-names>
</name>
<name>
<surname><![CDATA[Delanzy]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Chanteloup]]></surname>
<given-names><![CDATA[G]]></given-names>
</name>
<name>
<surname><![CDATA[Coupaye]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
</person-group>
<article-title xml:lang="fr"><![CDATA[Influence de I'état d'activité des raciness sur la floraison induite par des gibberellines 4 et 7 chez Pseudotsuga mensiesii (Mirb.) Franco.]]></article-title>
<source><![CDATA[Silvae Genet.]]></source>
<year></year>
<numero>31</numero>
<issue>31</issue>
<page-range>178-183</page-range></nlm-citation>
</ref>
<ref id="B5">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Borchert]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Differences in shoot growth patterns between juvenile and adult trees and their interpretation based on systems analysis of trees]]></article-title>
<source><![CDATA[Acta Hort.]]></source>
<year>1976</year>
<numero>56</numero>
<issue>56</issue>
<page-range>123-130</page-range></nlm-citation>
</ref>
<ref id="B6">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Chalupka]]></surname>
<given-names><![CDATA[W]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Regulation of flowering in Scots pine (Pinus sylvestris L.) grafts by gibberellins]]></article-title>
<source><![CDATA[Silvae Genet.]]></source>
<year>1980</year>
<numero>29</numero>
<issue>29</issue>
<page-range>118-121</page-range></nlm-citation>
</ref>
<ref id="B7">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Cherry]]></surname>
<given-names><![CDATA[M L]]></given-names>
</name>
<name>
<surname><![CDATA[Anekonda]]></surname>
<given-names><![CDATA[T S]]></given-names>
</name>
<name>
<surname><![CDATA[Albrecht]]></surname>
<given-names><![CDATA[M J]]></given-names>
</name>
<name>
<surname><![CDATA[Howe]]></surname>
<given-names><![CDATA[G T]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Flower stimulation in young miniaturized seed orchards of Douglas-fir (Pseudotsuga menziesii)]]></article-title>
<source><![CDATA[Can. J. For. Res.]]></source>
<year>2007</year>
<numero>37</numero>
<issue>37</issue>
<page-range>1-10</page-range></nlm-citation>
</ref>
<ref id="B8">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Dick]]></surname>
<given-names><![CDATA[J McP]]></given-names>
</name>
<name>
<surname><![CDATA[Leakey]]></surname>
<given-names><![CDATA[R R B]]></given-names>
</name>
<name>
<surname><![CDATA[Jarvis]]></surname>
<given-names><![CDATA[P G]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Influence of female cones on the vegetative growth of Pinus contorta trees]]></article-title>
<source><![CDATA[Tree Physiol.]]></source>
<year>1990</year>
<numero>6</numero>
<issue>6</issue>
<page-range>151-163</page-range></nlm-citation>
</ref>
<ref id="B9">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ebell]]></surname>
<given-names><![CDATA[L F]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Girdling: its effect on carbohydrate status and on reproductive bud and cone development of Douglas-fir]]></article-title>
<source><![CDATA[Can. J. Bot.]]></source>
<year>1971</year>
<numero>45</numero>
<issue>45</issue>
<page-range>453-466</page-range></nlm-citation>
</ref>
<ref id="B10">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Greenwood]]></surname>
<given-names><![CDATA[M S]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Reproductive development in loblolly pine. II. The effect of age, gibberellins plus water stress and out-of-phase dormancy on long shoot growth behavior]]></article-title>
<source><![CDATA[Amer. J. Bot.]]></source>
<year>1981</year>
<numero>68</numero>
<issue>68</issue>
<page-range>1184-1190</page-range></nlm-citation>
</ref>
<ref id="B11">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Harrison]]></surname>
<given-names><![CDATA[D L S]]></given-names>
</name>
<name>
<surname><![CDATA[Owens]]></surname>
<given-names><![CDATA[J N]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Gibberellins A4/7 enhanced flowering in Tsuga heterophylla. II. Apical development and shoot formation]]></article-title>
<source><![CDATA[Int. J. Plant Sci.]]></source>
<year>1994</year>
<numero>155</numero>
<issue>155</issue>
<page-range>302-312</page-range></nlm-citation>
</ref>
<ref id="B12">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ho]]></surname>
<given-names><![CDATA[R H]]></given-names>
</name>
<name>
<surname><![CDATA[Eng]]></surname>
<given-names><![CDATA[K]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Promotion of cone production on field-grown eastern white pine grafts by gibberellin A4/7 application]]></article-title>
<source><![CDATA[For. Ecol. Manage.]]></source>
<year>1995</year>
<numero>75</numero>
<issue>75</issue>
<page-range>11-16</page-range></nlm-citation>
</ref>
<ref id="B13">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Longman]]></surname>
<given-names><![CDATA[K A]]></given-names>
</name>
<name>
<surname><![CDATA[Dick]]></surname>
<given-names><![CDATA[J McP]]></given-names>
</name>
<name>
<surname><![CDATA[Mugglestone]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Smith]]></surname>
<given-names><![CDATA[R I]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Effects of gibberellins A4+7 and bark-ringing on cone initiation in mature Picea sitchensis grafts]]></article-title>
<source><![CDATA[Tree Physiol.]]></source>
<year>1986</year>
<numero>1</numero>
<issue>1</issue>
<page-range>101-113</page-range></nlm-citation>
</ref>
<ref id="B14">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Muñoz-Gutiérrez]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
<name>
<surname><![CDATA[Vargas-Hernández]]></surname>
<given-names><![CDATA[J J]]></given-names>
</name>
<name>
<surname><![CDATA[López-Upton]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Gutiérrez-Rangel]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Inducción de estructuras reproductivas en Pseudotsuga menziesii]]></article-title>
<source><![CDATA[Agrociencia]]></source>
<year>2010</year>
<numero>44</numero>
<issue>44</issue>
<page-range>835-847</page-range></nlm-citation>
</ref>
<ref id="B15">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Owens]]></surname>
<given-names><![CDATA[J N]]></given-names>
</name>
<name>
<surname><![CDATA[Webber]]></surname>
<given-names><![CDATA[J E]]></given-names>
</name>
<name>
<surname><![CDATA[Ross]]></surname>
<given-names><![CDATA[S D]]></given-names>
</name>
<name>
<surname><![CDATA[Pharis]]></surname>
<given-names><![CDATA[R P]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Interaction between gibberellins A4/7 and root-pruning on the reproductive and vegetative processes in Douglas-fir. III. Effects on anatomy of shoot elongation and terminal bud development]]></article-title>
<source><![CDATA[Can. J. For. Res.]]></source>
<year>1985</year>
<numero>15</numero>
<issue>15</issue>
<page-range>354-364</page-range></nlm-citation>
</ref>
<ref id="B16">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Pharis]]></surname>
<given-names><![CDATA[R P]]></given-names>
</name>
<name>
<surname><![CDATA[Kuo]]></surname>
<given-names><![CDATA[C G]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Physiology of gibberellins in conifers]]></article-title>
<source><![CDATA[Can. J. For. Res.]]></source>
<year></year>
<numero>7</numero>
<issue>7</issue>
<page-range>299-325</page-range></nlm-citation>
</ref>
<ref id="B17">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Pharis]]></surname>
<given-names><![CDATA[R P]]></given-names>
</name>
<name>
<surname><![CDATA[Ross]]></surname>
<given-names><![CDATA[S D]]></given-names>
</name>
<name>
<surname><![CDATA[McMullan]]></surname>
<given-names><![CDATA[E E]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Promotion of flowering in the Pinaceae by gibberellins. III. Seedlings of Douglas-fir]]></article-title>
<source><![CDATA[Physiol. Plant.]]></source>
<year>1980</year>
<numero>50</numero>
<issue>50</issue>
<page-range>119-126</page-range></nlm-citation>
</ref>
<ref id="B18">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Philipson]]></surname>
<given-names><![CDATA[J J]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The promotion of flowering in large field-grown Sitka spruce by girdling and stem injections of gibberellins A4/7]]></article-title>
<source><![CDATA[Can. J. For. Res.]]></source>
<year>1985</year>
<numero>15</numero>
<issue>15</issue>
<page-range>166-170</page-range></nlm-citation>
</ref>
<ref id="B19">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Philipson]]></surname>
<given-names><![CDATA[J J]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Prospects for enhancing flowering of conifers and broadleaves of potential silvicultural importance in Britain]]></article-title>
<source><![CDATA[Forestry]]></source>
<year>1990</year>
<numero>63</numero>
<issue>63</issue>
<page-range>223-240</page-range></nlm-citation>
</ref>
<ref id="B20">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Puritch]]></surname>
<given-names><![CDATA[G S]]></given-names>
</name>
</person-group>
<source><![CDATA[Cone Production in Conifers]]></source>
<year>1972</year>
<page-range>94</page-range><publisher-loc><![CDATA[Victoria^eBC BC]]></publisher-loc>
<publisher-name><![CDATA[Pacific Forest Research CentreCanadian Forest Service]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B21">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ross]]></surname>
<given-names><![CDATA[S D]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Enhancement of shoot elongation in Douglas-fir by gibberellins A4/7 and its relation to the hormonal promotion of flowering]]></article-title>
<source><![CDATA[Can. J. For. Res.]]></source>
<year>1983</year>
<numero>13</numero>
<issue>13</issue>
<page-range>986-994</page-range></nlm-citation>
</ref>
<ref id="B22">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ross]]></surname>
<given-names><![CDATA[S D]]></given-names>
</name>
<name>
<surname><![CDATA[Bower]]></surname>
<given-names><![CDATA[R C]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Promotion of seed production in Douglas-fir grafts by girdling + gibberellin A4/7 stem injection, and effect of retreatment]]></article-title>
<source><![CDATA[New For.]]></source>
<year>1991</year>
<numero>5</numero>
<issue>5</issue>
<page-range>23-34</page-range></nlm-citation>
</ref>
<ref id="B23">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ross]]></surname>
<given-names><![CDATA[S D]]></given-names>
</name>
<name>
<surname><![CDATA[Pharis]]></surname>
<given-names><![CDATA[R P]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Promotion of flowering in the Pinaceae by gibberellins. I. Sexually mature, non-flowering grafts of Douglas-fir]]></article-title>
<source><![CDATA[Physiol. Plant.]]></source>
<year>1976</year>
<numero>36</numero>
<issue>36</issue>
<page-range>182-186</page-range></nlm-citation>
</ref>
<ref id="B24">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ross]]></surname>
<given-names><![CDATA[S D]]></given-names>
</name>
<name>
<surname><![CDATA[Bollmann]]></surname>
<given-names><![CDATA[M P]]></given-names>
</name>
<name>
<surname><![CDATA[Pharis]]></surname>
<given-names><![CDATA[R P]]></given-names>
</name>
<name>
<surname><![CDATA[Sweet]]></surname>
<given-names><![CDATA[G B]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Gibberellin A4/7 and the promotion of flowering in Pinus radiata. Effects on partitioning of photoassimilate within the bud during primordial differentiation]]></article-title>
<source><![CDATA[Plant Physiol.]]></source>
<year>1984</year>
<numero>76</numero>
<issue>76</issue>
<page-range>326-330</page-range></nlm-citation>
</ref>
<ref id="B25">
<nlm-citation citation-type="book">
<collab>SAS Institute</collab>
<source><![CDATA[SAS User's Guide: Statistics]]></source>
<year>1998</year>
<page-range>1028</page-range><publisher-loc><![CDATA[Cary^eNC. NC.]]></publisher-loc>
<publisher-name><![CDATA[SAS Institute, Inc.]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B26">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Smith]]></surname>
<given-names><![CDATA[R F]]></given-names>
</name>
<name>
<surname><![CDATA[Greenwood]]></surname>
<given-names><![CDATA[M S]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Effects of cone-induction treatments on black spruce (Picea mariana) current-year needle development and gas exchange properties]]></article-title>
<source><![CDATA[Tree Physiol.]]></source>
<year>1997</year>
<numero>17</numero>
<issue>17</issue>
<page-range>407-414</page-range></nlm-citation>
</ref>
<ref id="B27">
<nlm-citation citation-type="book">
<collab>S-Plus</collab>
<source><![CDATA[S-Plus 7.0 Guide to Statistics]]></source>
<year>2005</year>
<volume>1</volume>
<publisher-loc><![CDATA[Seattle^eWashigton Washigton]]></publisher-loc>
<publisher-name><![CDATA[Insightful Corporation]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B28">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Webber]]></surname>
<given-names><![CDATA[J E]]></given-names>
</name>
<name>
<surname><![CDATA[Ross]]></surname>
<given-names><![CDATA[S D]]></given-names>
</name>
<name>
<surname><![CDATA[Pharis]]></surname>
<given-names><![CDATA[R P]]></given-names>
</name>
<name>
<surname><![CDATA[Owens]]></surname>
<given-names><![CDATA[J N]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Interaction between gibberellin A4/7 and root-pruning on the reproductive and vegetative process in Douglas-fir. II. Effects on shoot elongation and its relationship to flowering]]></article-title>
<source><![CDATA[Can. J. For. Res.]]></source>
<year>1985</year>
<numero>15</numero>
<issue>15</issue>
<page-range>348-353</page-range></nlm-citation>
</ref>
<ref id="B29">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Wilson]]></surname>
<given-names><![CDATA[B F]]></given-names>
</name>
<name>
<surname><![CDATA[Gartner]]></surname>
<given-names><![CDATA[B L]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Effects of phloem girdling in conifers on apical control of branches, growth allocation and air in wood]]></article-title>
<source><![CDATA[Tree Physiol.]]></source>
<year>2002</year>
<numero>22</numero>
<issue>22</issue>
<page-range>347-353</page-range></nlm-citation>
</ref>
<ref id="B30">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Zwieniecki]]></surname>
<given-names><![CDATA[M A]]></given-names>
</name>
<name>
<surname><![CDATA[Melcher]]></surname>
<given-names><![CDATA[P J]]></given-names>
</name>
<name>
<surname><![CDATA[Field]]></surname>
<given-names><![CDATA[T S]]></given-names>
</name>
<name>
<surname><![CDATA[Holbrook]]></surname>
<given-names><![CDATA[N M]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A potential role for xylem-phloem interactions in the hydraulic architecture of trees: effects of phloem girdling on xylem hydraulic conductance]]></article-title>
<source><![CDATA[Tree Physiol.]]></source>
<year>2004</year>
<numero>24</numero>
<issue>24</issue>
<page-range>911-917</page-range></nlm-citation>
</ref>
</ref-list>
</back>
</article>