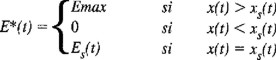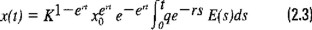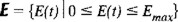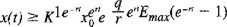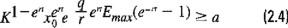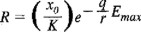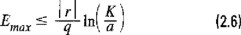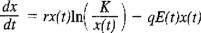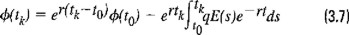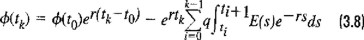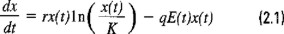
<?xml version="1.0" encoding="ISO-8859-1"?><article xmlns:mml="http://www.w3.org/1998/Math/MathML" xmlns:xlink="http://www.w3.org/1999/xlink" xmlns:xsi="http://www.w3.org/2001/XMLSchema-instance">
<front>
<journal-meta>
<journal-id>0188-8897</journal-id>
<journal-title><![CDATA[Hidrobiológica]]></journal-title>
<abbrev-journal-title><![CDATA[Hidrobiológica]]></abbrev-journal-title>
<issn>0188-8897</issn>
<publisher>
<publisher-name><![CDATA[Universidad Autónoma Metropolitana, División de Ciencias Biológicas y de la Salud]]></publisher-name>
</publisher>
</journal-meta>
<article-meta>
<article-id>S0188-88972001000200002</article-id>
<title-group>
<article-title xml:lang="es"><![CDATA[Control óptimo y manejo de pesquerías II: Procedimientos de identificación y aplicaciones]]></article-title>
<article-title xml:lang="en"><![CDATA[Optimal control and fisheries management II: identification processes and aplications]]></article-title>
</title-group>
<contrib-group>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Borbón González]]></surname>
<given-names><![CDATA[Dora Julia]]></given-names>
</name>
<xref ref-type="aff" rid="A02"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Echavarría Heras]]></surname>
<given-names><![CDATA[Héctor]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Cota V.]]></surname>
<given-names><![CDATA[Alfredo]]></given-names>
</name>
<xref ref-type="aff" rid="A03"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Leal Ramírez]]></surname>
<given-names><![CDATA[Cecilia]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
</contrib-group>
<aff id="A01">
<institution><![CDATA[,Centro de Investigación Científica y de Educación Superior de Ensenada  ]]></institution>
<addr-line><![CDATA[Ensenada Baja California]]></addr-line>
<country>México</country>
</aff>
<aff id="A02">
<institution><![CDATA[,Universidad de Sonora  ]]></institution>
<addr-line><![CDATA[Hermosillo Sonora]]></addr-line>
<country>México</country>
</aff>
<aff id="A03">
<institution><![CDATA[,Centro Regional de Investigaciones Pesqueras del Sauzal  ]]></institution>
<addr-line><![CDATA[ B.C.]]></addr-line>
<country>México</country>
</aff>
<pub-date pub-type="pub">
<day>00</day>
<month>00</month>
<year>2001</year>
</pub-date>
<pub-date pub-type="epub">
<day>00</day>
<month>00</month>
<year>2001</year>
</pub-date>
<volume>11</volume>
<numero>2</numero>
<fpage>105</fpage>
<lpage>115</lpage>
<copyright-statement/>
<copyright-year/>
<self-uri xlink:href="http://www.scielo.org.mx/scielo.php?script=sci_arttext&amp;pid=S0188-88972001000200002&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://www.scielo.org.mx/scielo.php?script=sci_abstract&amp;pid=S0188-88972001000200002&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://www.scielo.org.mx/scielo.php?script=sci_pdf&amp;pid=S0188-88972001000200002&amp;lng=en&amp;nrm=iso"></self-uri><abstract abstract-type="short" xml:lang="es"><p><![CDATA[En el contexto de la metodología introducida en la primera parte de este trabajo y considerando como variable de control el esfuerzo pesquero se introduce un procedimiento directo para caracterizar su conjunto de admisibilidad de modo que el proceso de control induzca una condición de viabilidad para la biomasa. Utilizando el modelo de producción de Gompertz-Fox se desarrollaron métodos de identificación adaptados a datos de captura por unidad de esfuerzo. La aplicación de dichos resultados permite realizar el análisis retrospectivo de la optimalidad del esfuerzo en dos pesquerías en las cuales la participación del esfuerzo de la flota mexicana ha sido dominante; la de la Anchoveta Norteña y la de la Sardina en el Golfo de California.]]></p></abstract>
<abstract abstract-type="short" xml:lang="en"><p><![CDATA[In the framework of the methods introduced in the first part of this work and considering the fishing effort as the control variable, we introduce a direct procedure to estimate an upper bound for its admisibility set that ensures a viability condition for the exploited biomass. Using the catch per unit effort as an abundance index we develop dynamic regression schemes for the Gompertz-Fox production model. Our theoretical results were applied to the study of the optimality of the fishing effort in two fisheries were Mexican vessels performed the dominant catch; the northen anchovy, and the Pacific sardine in the Gulf of Galifornia.]]></p></abstract>
<kwd-group>
<kwd lng="es"><![CDATA[Optimalidad]]></kwd>
<kwd lng="es"><![CDATA[viabilidad]]></kwd>
<kwd lng="es"><![CDATA[pesquerías]]></kwd>
<kwd lng="en"><![CDATA[Optimality]]></kwd>
<kwd lng="en"><![CDATA[viability]]></kwd>
<kwd lng="en"><![CDATA[fisheries]]></kwd>
</kwd-group>
</article-meta>
</front><body><![CDATA[ <p align="justify"><font face="Verdana" size="4">Art&iacute;culos</font></p>     <p align="justify"><font face="Verdana" size="2">&nbsp;</font></p>     <p align="center"><font face="verdana" size="4"><b>Control &oacute;ptimo y manejo de pesquer&iacute;as II: Procedimientos de identificaci&oacute;n y aplicaciones</b></font></p>     <p align="center">&nbsp;</p>     <p align="center"><font face="verdana" size="3"><b>Optimal control and fisheries management II: identification processes and aplications</b></font></p>     <p align="justify"><font face="Verdana" size="2">&nbsp;</font></p>     <p align="center"><font face="verdana" size="2"><b>Dora Julia Borb&oacute;n Gonz&aacute;lez<sup>1,2</sup>, H&eacute;ctor Echavarr&iacute;a Heras<sup>1</sup>, Alfredo Cota V.<sup>3</sup> y Cecilia Leal Ram&iacute;rez<sup>1</sup></b></font></p>     <p align="center">&nbsp;</p>     <p align="justify"><font face="verdana" size="2"><i><sup>1 </sup>Grupo de Modelaci&oacute;n y An&aacute;lisis Te&oacute;rico. CICESE Departamento de Ecolog&iacute;a. Apdo. Postal 2732 Ensenada B.C. M&eacute;xico.</i> email: <a href="mailto:hechavar@cicese.mx">hechavar@cicese.mx</a>.</font></p>     <p align="justify"><font face="verdana" size="2"><i><sup>2 </sup>Universidad de Sonora, Departamento de Matem&aacute;ticas. Hermosillo, Sonora, M&eacute;xico.</i> email: <a href="mailto:dborbon@cicese.mx">dborbon@cicese.mx</a></font></p>     ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2"><i><sup>3 </sup>Centro Regional de Investigaciones Pesqueras del Sauzal B.C. M&eacute;xico.</i></font></p>     <p align="justify"><font face="Verdana" size="2">&nbsp;</font></p>     <p align="justify"><font face="verdana" size="2">Recibido: 7 de julio de 1999    <br>Aceptado: 16 de enero de 2001</font></p>     <p align="justify"><font face="Verdana" size="2">&nbsp;</font></p>     <p align="justify"><font face="verdana" size="2"><b>Resumen</b></font></p>     <p align="justify"><font face="verdana" size="2">En el contexto de la metodolog&iacute;a introducida en la primera parte de este trabajo y considerando como variable de control el esfuerzo pesquero se introduce un procedimiento directo para caracterizar su conjunto de admisibilidad de modo que el proceso de control induzca una condici&oacute;n de viabilidad para la biomasa. Utilizando el modelo de producci&oacute;n de Gompertz&#45;Fox se desarrollaron m&eacute;todos de identificaci&oacute;n adaptados a datos de captura por unidad de esfuerzo. La aplicaci&oacute;n de dichos resultados permite realizar el an&aacute;lisis retrospectivo de la optimalidad del esfuerzo en dos pesquer&iacute;as en las cuales la participaci&oacute;n del esfuerzo de la flota mexicana ha sido dominante; la de la Anchoveta Norte&ntilde;a y la de la Sardina en el Golfo de California.</font></p>     <p align="justify"><font face="verdana" size="2"><b>Palabras clave:</b> Optimalidad, viabilidad, pesquer&iacute;as.</font></p>     <p align="justify"><font face="Verdana" size="2">&nbsp;</font></p>     <p align="justify"><font face="verdana" size="2"><b>Abstract</b></font></p>     ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">In the framework of the methods introduced in the first part of this work and considering the fishing effort as the control variable, we introduce a direct procedure to estimate an upper bound for its admisibility set that ensures a viability condition for the exploited biomass. Using the catch per unit effort as an abundance index we develop dynamic regression schemes for the Gompertz&#45;Fox production model. Our theoretical results were applied to the study of the optimality of the fishing effort in two fisheries were Mexican vessels performed the dominant catch; the northen anchovy, and the Pacific sardine in the Gulf of Galifornia.</font></p>     <p align="justify"><font face="verdana" size="2"><b>Key words:</b> Optimality, viability, fisheries.</font></p>     <p align="justify"><font face="Verdana" size="2">&nbsp;</font></p>     <p align="justify"><font face="verdana" size="2"><b>Introducci&oacute;n</b></font></p>     <p align="justify"><font face="verdana" size="2">En la primera parte de este trabajo se presenta el marco conceptual y los m&eacute;todos formales que definen e instrumentan la aplicaci&oacute;n de metodolog&iacute;as de teor&iacute;a de control &oacute;ptimo al manejo racional de recursos pesqueros. En la cuarta secci&oacute;n de dicha primera parte se presenta una derivaci&oacute;n heur&iacute;stica de la ecuaci&oacute;n de Bellman&#45;Hamilton&#45;Jacobi, y en la quinta una similar para el principio del M&aacute;ximo de Pontryagin. Usando dichos resultados es posible caracterizar de modo general la estrategia de control que maximiza el beneficio social derivado de la explotaci&oacute;n de una poblaci&oacute;n de peces. Para ejemplificar la aplicaci&oacute;n de los resultados antes se&ntilde;alados en sistemas de explotaci&oacute;n reales, en esta segunda parte se lleva a cabo el estudio retrospectivo de la optimalidad del esfuerzo pesquero en dos pesquerias con participaci&oacute;n dominante de la flota mexicana: la de la Anchoveta Norte&ntilde;a (<i>Engraulis mordax</i>) frente a las costas de Baja California y la de la Sardina Monterrey (<i>Sardinops sagax caeruleus</i>) en el Golfo de California. Para tales prop&oacute;sitos, y en el contexto de las secciones 3 y 6 de la primera parte, sin p&eacute;rdida de generalidad nos circunscribimos a la utilizaci&oacute;n del modelo de producci&oacute;n de Gompertz&#45;Fox puesto que posee grandes ventajas desde el punto de vista anal&iacute;tico. Con el prop&oacute;sito de hacer expedita la necesaria referencia al contenido de la primera parte, en lo sucesivo nos referiremos a &eacute;sta mediante la utilizaci&oacute;n de la letra I. As&iacute; por ejemplo 4I denotar&aacute; la cuarta secci&oacute;n de la primera parte y 4.3I se referir&aacute; a la ecuaci&oacute;n 4.3 de la misma.</font></p>     <p align="justify"><font face="verdana" size="2">La soluci&oacute;n obtenida al problema de control en 6I no considera restricciones sobre la variaci&oacute;n de estado (v&eacute;ase ecuaci&oacute;n 2.5I)). Sin embargo, &eacute;stas pueden ser consideradas introduciendo una extensi&oacute;n adecuada del principio del m&aacute;ximo. Un tratamiento general para tales problemas aparece en Knowles (1981). Uno de los objetivos fundamentales de esta segunda parte consiste en la introducci&oacute;n de un criterio alternativo. La idea central se basa en la suposici&oacute;n de que debido al efecto de Allee (Allee, 1931), la biomasa poblacional debiera permanecer por encima de un tama&ntilde;o cr&iacute;tico <i>a</i> si se quiere garantizar la permanencia del recurso. En ese contexto, en la segunda secci&oacute;n del presente trabajo usamos un procedimiento directo para obtener una cota superior para el conjunto de admisibilidad del esfuerzo pesquero en t&eacute;rminos del umbral de colapso <i>a</i> y de otros par&aacute;metros relevantes. La determinaci&oacute;n del conjunto de admisibilidad en esa forma, provee de condiciones suficientes para garantizar la mencionada condici&oacute;n de viabilidad para la biomasa bajo explotaci&oacute;n. Cabe se&ntilde;alar que este procedimiento se logra f&aacute;cilmente si la biomasa poblacional tiene la forma asociada con la soluci&oacute;n del modelo de crecimiento de Gompertz, independientemente de perturbar &eacute;sta mediante un t&eacute;rmino de remoci&oacute;n de biomasa por efectos de la aplicaci&oacute;n del esfuerzo pesquero. En virtud de lo anterior, en la tercera secci&oacute;n se establece la ecuaci&oacute;n de regresi&oacute;n para el modelo de producci&oacute;n de Gompertz&#45;Fox. Dicha ecuaci&oacute;n permite la identificaci&oacute;n param&eacute;trica inherente utilizando datos de captura por unidad de esfuerzo. En la cuarta secci&oacute;n se presentan los estudios de optimalidad antes mencionados para las dos pesquer&iacute;as seleccionadas. En la &uacute;ltima secci&oacute;n se presentan las conclusiones derivadas de estos estudios.</font></p>     <p align="justify"><font face="Verdana" size="2">&nbsp;</font></p>     <p align="justify"><font face="verdana" size="2"><b>2. El problema de control bajo condiciones de viabilidad</b></font></p>     <p align="justify"><font face="verdana" size="2">El problema de control en su forma general ha sido introducido mediante las ecuaciones (2.1I)&#45;(2.8I). El que corresponde al caso de la explotaci&oacute;n de una poblaci&oacute;n uniespec&iacute;fica aparece en la secci&oacute;n 6I. El caso que abordamos considera que la variable de estado <i>x(t)</i> satisface</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e1.jpg"></font></p>     ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">donde <i>r</i>&lt;0, <i>K</i>&gt;0 y <i>q</i>&gt;0 son constantes, <i>E(t)</i> la tasa de esfuerzo pesquero. El modelo dado por la ecuaci&oacute;n 2.1) utiliza la ecuaci&oacute;n de crecimiento de Gompertz, por esa raz&oacute;n nos hemos referido al mismo como modelo de producci&oacute;n de Gompertz&#45;Fox (Fox, 1970).</font></p>     <p align="justify"><font face="verdana" size="2">El problema de control mantendr&aacute; vigente la forma del conjunto de admisibilidad dada por la ecuaci&oacute;n (6.2I)</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e2.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Entonces los resultados de la secci&oacute;n 6I indican que la caracterizaci&oacute;n del esfuerzo &oacute;ptimo <i>E*(t)</i> vendr&aacute; dada por la ecuaci&oacute;n (6.18I)</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e3.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">donde la correspondiente trayectoria singular <i>x<sub>s</sub>(t)</i> es definida impl&iacute;citamente por las ecuaciones (6.14I) y (6.15I) y el esfuerzo <i>E<sub>s</sub>(t)</i> necesario para mantener la variaci&oacute;n de la respuesta sobre <i>x<sub>s</sub>(t)</i> es dado expl&iacute;citamente por la ecuaci&oacute;n (6.17I). Cabe recordar que para la senda singular <i>x<sub>s</sub>(t)</i> se cumplen los criterios de optimizaci&oacute;n establecidos, expresados como la maximizaci&oacute;n del valor presente del flujo de ganancias provenientes de la pesquer&iacute;a para el horizonte temporal considerado, de tal forma que la trayectoria &oacute;ptima consiste en llevar a cabo la explotaci&oacute;n del recurso de manera tal que la biomasa <i>x(t)</i> se mantenga tan cercana como sea posible a <i>x<sub>s</sub>(t)</i>.</font></p>     <p align="justify"><font face="verdana" size="2">Sin p&eacute;rdida de generalidad abordaremos el caso aut&oacute;nomo suponiendo que el precio de cada unidad de biomasa capturada y similarmente el costo de una unidad de esfuerzo son aproximados adecuadamente por sus valores medios, para el horizonte de tiempo considerado. Esta suposici&oacute;n es aceptable si el an&aacute;lisis bioecon&oacute;mico se realiza utilizando cotizaciones en el mercado internacional. La misma hip&oacute;tesis se aplica al caso de la variaci&oacute;n de la tasa de descuento <i>&#948;(t)</i> De este modo los resultados del ap&eacute;ndice AI indican que la trayectoria singular <i>x<sub>s</sub>(t)</i> es constante para cada valor fijo de la tasa de descuento <i>&#948;</i>. Habiendo fijado todos los otros par&aacute;metros, denotemos el valor de la trayectoria singular que a cada valor fijo de la tasa de descuento mediante el s&iacute;mbolo <i>s<sub>x</sub>(&#948;)</i>. Entonces &eacute;ste se obtiene de la ecuaci&oacute;n (6.16I), la ecuaci&oacute;n de la regla aurea de Clark, tomando en cuenta la forma de <i>F</i>(<i>x(t)</i>) definida por la ecuaci&oacute;n (2.1) en conjunci&oacute;n con las aproximaciones <i>&#948;(t)</i> = <i>&#948;</i>, <i>&#956;</i>(<i>x(t)</i>) = <i>c</i> y <i>p(t)</i> = <i>p</i>. De este modo, el nivel de biomasa &oacute;ptima <i>x<sub>s</sub>(&#948;)</i> se define impl&iacute;citamente mediante la ecuaci&oacute;n</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e4.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Con el fin de realizar el an&aacute;lisis de la optimalidad del r&eacute;gimen de explotaci&oacute;n de un recurso pesquero bajo condiciones de viabilidad para la biomasa debemos considerar la restricci&oacute;n de variaci&oacute;n de estado (2.5I). Esto puede lograrse tambi&eacute;n escogiendo adecuadamente el valor de la cota superior del conjunto de admisibilidad del esfuerzo pesquero, <i>E<sub>max</sub></i>, (ecuaci&oacute;n 6.2I). Para ello introduciremos el siguiente criterio (Borb&oacute;n&#45;Gonz&aacute;lez, 1999):</font></p>     <p align="justify"><font face="verdana" size="2">La respuesta asociada con el problema de control (2.1I&#45;2.8I) viene dada por la soluci&oacute;n de la ecuaci&oacute;n diferencial (2.1); la soluci&oacute;n tiene la forma</font></p>     ]]></body>
<body><![CDATA[<p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e5.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Partiendo de la desigualdad de admisibilidad (6.2I)</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e6.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">y considerando que <i>q</i> es positivo tendremos que</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e7.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Puesto que <i>K</i> y <i>x</i><sub>0</sub> son no&#45;negativos, <i>x(t)</i> satisface la desigualdad</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e8.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Por lo tanto una condici&oacute;n suficiente para que la restricci&oacute;n de viabilidad, <i>x(t)</i> &ge; <i>a</i>, se cumpla resulta ser</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e9.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">o de forma equivalente</font></p>     ]]></body>
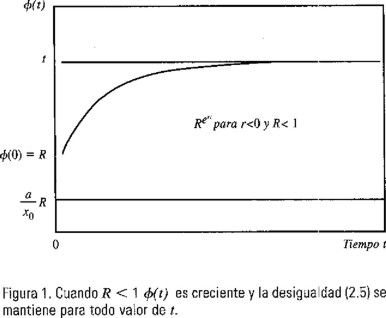
<body><![CDATA[<p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e10.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">donde <i>a</i> es el umbral de colapso especificado y</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e11.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Definiendo ahora la funci&oacute;n <i>&#981;(t)</i> mediante</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e12.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">veremos que</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e13.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Siendo <i>r</i> negativa y <i>&#981;(t)</i> positiva, <i>&#981;(t)</i> ser&aacute; creciente si <i>R</i> &lt; 1 y decreciente si <i>R</i> &gt; 1. En el caso en el cual <i>&#981;(t)</i> es creciente vemos que a partir del valor <i>&#981;</i>(0) = <i>R</i>, dicha funci&oacute;n tender&aacute; mon&oacute;tonamente a uno cuando <i>t</i> tiende a infinito. Como deseamos mantener la poblaci&oacute;n <i>x(t)</i> sobre el umbral de colapso <i>a</i>, necesariamente se requiere que <i>x</i><sub>0</sub> sea mayor que <i>a</i>. Consecuentemente (<i>a</i>/<i>x</i><sub>0</sub>)<i>R</i> &lt; <i>R</i> &lt; 1 y la desigualdad (2.4) tendr&aacute; vigencia para todo <i>t</i> (<a href="#f1">Figura 1</a>).</font></p>     <p align="center"><font face="verdana" size="2"><a name="f1"></a></font></p>     <p align="center"><font face="verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2f1.jpg"></font></p>     ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">Si mantenemos <i>r</i> negativa, cuando <i>R</i> &gt; 1, <i>&#981;(t)</i> decrecer&aacute; a partir de <i>R</i> tendiendo a uno cuando <i>t</i> tiende a infinito. En el caso en el que el producto (<i>a</i>/<i>x</i><sub>0</sub>)<i>R</i> toma un valor superior al l&iacute;mite asint&oacute;tico de <i>&#981;(t)</i> existir&aacute; un valor <i>t<sub>c</sub></i> a partir del cual la desigualdad (2.4) dejar&aacute; de cumplirse. Esta situaci&oacute;n se ilustra en la <a href="#f2">Figura 2</a>, utilizando la l&iacute;nea punteada para representar el valor de (<i>a</i>/<i>x</i><sub>0</sub>)<i>R</i>. Sin embargo si escogemos <i>R</i> de modo tal que el producto (<i>a</i>/<i>x</i><sub>0</sub>)<i>R</i> permanezca por abajo del l&iacute;mite asint&oacute;tico de <i>&#981;(t)</i> tendremos que la desigualdad (2.4) se cumplir&aacute; para todo valor de <i>t</i>. Esta situaci&oacute;n se ilustra en la <a href="#f2">Figura 2</a> mediante la l&iacute;nea continua para el valor (<i>a</i>/<i>x</i><sub>0</sub>)<i>R</i>.</font></p>     <p align="center"><font face="verdana" size="2"><a name="f2"></a></font></p>     <p align="center"><font face="verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2f2.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Como resultado del an&aacute;lisis anterior podemos establecer que siempre que <i>x</i><sub>0</sub><i>R</i> toma un valor mayor que <i>a</i>, la condici&oacute;n</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e14.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">garantiza la vigencia de la desigualdad (2.4) para todo valor del tiempo. Utilizando la ecuaci&oacute;n (2.5) vemos que esta condici&oacute;n se puede expresar equivalentemente en t&eacute;rminos de la cota superior del esfuerzo <i>E<sub>max</sub></i> si hacemos</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e15.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Supongamos que <i>E<sub>max</sub></i> toma un valor constante igual al de su cota superior, dada por la desigualdad (2.6), y que <i>E(t)</i> toma el valor constante</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e16.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">entonces, considerando que <i>r</i> &lt; 0 tenemos que la ecuaci&oacute;n (2.1) toma la forma</font></p>     ]]></body>
<body><![CDATA[<p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e17.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Esto significa que cuando mantenemos el esfuerzo <i>E(t)</i> en el nivel constante dado por la cota superior <i>E<sub>max</sub></i>, la biomasa poblacional <i>x(t)</i> tiende asint&oacute;ticamente al umbral de colapso <i>a</i>. Si <i>x</i><sub>0</sub> es mayor que <i>a</i> la poblaci&oacute;n se mantiene fuera de la regi&oacute;n de extinci&oacute;n. Si <i>x</i><sub>0</sub> es menor que la poblaci&oacute;n permanece todo el tiempo bajo el umbral de extinci&oacute;n. Esto equivale a decir que en el contexto de la ecuaci&oacute;n (2.1) el valor constante para <i>E(t)</i> dado por la ecuaci&oacute;n (2.7) genera la soluci&oacute;n de equilibrio estable <i>x(t)</i> = <i>a</i>.</font></p>     <p align="justify"><font face="verdana" size="2">En algunas aplicaciones el modelo de Gompertz&#45;Fox toma la forma equivalente</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e18.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">donde <i>r</i> &gt; 0, <i>q</i> &gt; 0 y <i>K</i> &gt; 0. En este caso <i>x(t)</i> se expresa como</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e19.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">y la desigualdad (2.4) tendr&aacute; la forma equivalente</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e20.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Un procedimiento como el utilizado para establecer la desigualdad (2.5) permitir&aacute; concluir que en este caso tambi&eacute;n tiene vigencia.</font></p>     <p align="justify"><font face="verdana" size="2">De la ecuaci&oacute;n (2.1) resulta claro que el nivel de esfuerzo <i>E<sub>s</sub></i> (v&eacute;ase la ecuaci&oacute;n 6.17I) que mantiene la respuesta <i>x(t)</i> sobre la senda singular <i>x<sub>s</sub>(t)</i> en el caso aut&oacute;nomo analizado tiene la forma</font></p>     ]]></body>
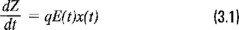
<body><![CDATA[<p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e21.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Adicionalmente, si se cumple la desigualdad <i>a</i> &le; <i>x<sub>s</sub></i> y si consideramos que la funci&oacute;n logaritmo natural es mon&oacute;tona, las ecuaciones (2.7) y (2.9) implican la vigencia de la desigualdad <i>E<sub>s</sub></i> &le; <i>E<sub>max</sub></i>. En este caso, se cumplir&aacute; la condici&oacute;n de viabilidad que hemos invocado. La observaci&oacute;n anterior nos permite conectar la soluci&oacute;n al problema de control de la secci&oacute;n 6I con los resultados de la presente secci&oacute;n.</font></p>     <p align="justify"><font face="Verdana" size="2">&nbsp;</font></p>     <p align="justify"><font face="verdana" size="2"><b>3. M&eacute;todos de identificaci&oacute;n param&eacute;trica</b></font></p>     <p align="justify"><font face="verdana" size="2">En el contexto de la ecuaci&oacute;n (2.1) supondremos que la funci&oacute;n de captura agregada al tiempo <i>t</i>, denotada por <i>Z(t)</i>, se relaciona con la tasa instant&aacute;nea de captura mediante la ecuaci&oacute;n</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e22.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Para los prop&oacute;sitos del ajuste de par&aacute;metros, usando la ecuaci&oacute;n (3.1), se define la tasa de captura por unidad de esfuerzo <i>U(t)</i>, mediante la ecuaci&oacute;n (Schnute, 1977)</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e23.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">En el caso de inter&eacute;s, cuando <i>E(t)</i> es diferente de 0, tenemos</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e24.jpg"></font></p>     ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2">En t&eacute;rminos de <i>U(t)</i> la ecuaci&oacute;n (2.1) se transforma en</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e25.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">donde <i>U<sub>e</sub></i> = <i>qK</i>. Introduciendo la variable</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e26.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">la ecuaci&oacute;n (3.4) se expresa como</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e27.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Usando el factor <i>e</i><sup>&#45;<i>rt</i></sup> e integrando de <i>t</i><sub>0</sub> a <i>t<sub>k</sub></i>, se sigue que</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e28.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Tomando en cuenta el car&aacute;cter discreto de los datos que caracterizan la variaci&oacute;n de <i>Z(t)</i> y <i>E(t)</i> es conveniente introducir una partici&oacute;n del intervalo de explotaci&oacute;n &#91;<i>t</i><sub>0</sub>, <i>T</i>&#93;, en intervalos de la forma &#91;<i>t<sub>k</sub></i>, <i>t</i><sub><i>k</i>+1</sub>&#93; con <i>k</i> = 0, 1, 2,..., <i>N</i>. Supondremos que la norma &#916;<i>t</i> = (<i>t</i><sub><i>k</i>+1</sub> &#45; <i>t<sub>k</sub></i>) es constante. En ese contexto la ecuaci&oacute;n (3.7) toma la forma equivalente</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e29.jpg"></font></p>     ]]></body>
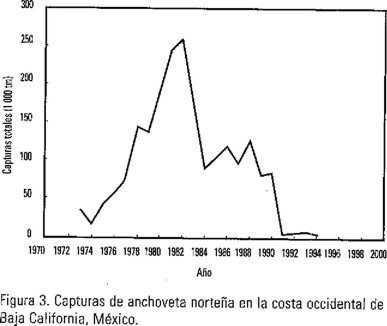
<body><![CDATA[<p align="justify"><font face="verdana" size="2">Recu&eacute;rdese que dada una funci&oacute;n <i>R(t)</i> definida en el intervalo &#91;<i>t<sub>k</sub></i>, <i>t</i><sub><i>k</i>+1</sub>&#93; su promedio <i>R</i><sub><i>k</i>+1</sub> es</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e30.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Bajo la suposici&oacute;n de que el esfuerzo <i>E(t)</i> toma un valor igual a su promedio <i>&#274;</i> <sub>i+1</sub> en el intervalo &#91;<i>t<sub>i</sub></i>, <i>t</i><sub><i>i</i>+1</sub>&#93; el resultado de la ecuaci&oacute;n (3.8) se expresa en la forma</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e32.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Utilizando la ecuaci&oacute;n (3.5) se establece la ecuaci&oacute;n equivalente</font></p>     <p align="center"><font face="Verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2e33.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Usualmente, <i>U(t<sub>k</sub>)</i> se aproxima mediante la media geom&eacute;trica o aritm&eacute;tica de los valores medios de las tasas de captura por unidad de esfuerzo asociados con los a&ntilde;os sucesivos centrados en <i>t<sub>k</sub></i> (Schnute, 1977). En este trabajo se utiliz&oacute; la aproximaci&oacute;n de <i>U(t<sub>k</sub>)</i> mediante la media geom&eacute;trica.</font></p>     <p align="justify">&nbsp;</p>     <p align="justify"><font face="verdana" size="2"><b>4. La pesquer&iacute;a mexicana de la anchoveta norte&ntilde;a <i>(Engraulis mordax)</i></b></font></p>     <p align="justify"><font face="verdana" size="2">La explotaci&oacute;n de la anchoveta norte&ntilde;a <i>(Engraulis mordax)</i> comienza en la d&eacute;cada de los cincuentas con peque&ntilde;os vol&uacute;menes de captura. El ritmo de explotaci&oacute;n permanece constante hasta 1964, a&ntilde;o en el que la captura se incrementa significativamente, destin&aacute;ndose la mayor parte de la producci&oacute;n a la industria reductora y enlatadora, siendo la primera la m&aacute;s importante. La pesquer&iacute;a mexicana de la anchoveta norte&ntilde;a se concentr&oacute; en el puerto de Ensenada, B. C. Varios puertos del sur de California fueron centro de operaciones de la flota anchovetera norteamericana.</font></p>     ]]></body>
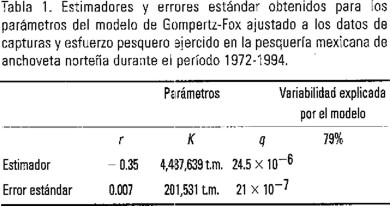
<body><![CDATA[<p align="justify"><font face="verdana" size="2">En 1981 se registr&oacute; una captura m&aacute;xima de 258,755 tm., observ&aacute;ndose a partir del a&ntilde;o siguiente un descenso notable en los vol&uacute;menes, registr&aacute;ndose menos de mil toneladas en 1991 (Garc&iacute;a <i>et al.</i>, 1990). Se ha conjeturado que el colapso se debi&oacute; a efectos asociados con la sobrepesca y por cambios clim&aacute;ticos que han dado origen al problema de r&eacute;gimen (Lluch <i>et al.</i>, 1989).</font></p>     <p align="justify"><font face="verdana" size="2">Echavarr&iacute;a <i>et al.</i> (1996) realizaron el ajuste del modelo de Gompertz&#45;Fox a los datos de la captura total asociada con las flotas mexicana y norteamericana. En dicho ensayo fue necesario introducir un factor de ponderaci&oacute;n sobre el esfuerzo pesquero mexicano. En el presente trabajo se usan los datos de capturas de anchoveta norte&ntilde;a efectuadas en el Pac&iacute;fico Oriental por la flota mexicana en el per&iacute;odo 1972&#45;1994 (<a href="#f3">Figura 3</a>).</font></p>     <p align="center"><font face="verdana" size="2"><a name="f3"></a></font></p>     <p align="center"><font face="verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2f3.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">En el presente trabajo se ajust&oacute; el modelo de Gompertz&#45;Fox a los datos de captura por unidad de esfuerzo; esta informaci&oacute;n fue proporcionada por el Centro Regional de Investigaciones Pesqueras del Sauzal, Baja California. El proceso de identificaci&oacute;n de par&aacute;metros del modelo se realiz&oacute; utilizando la ecuaci&oacute;n de regresi&oacute;n (3.11) considerando la aproximaci&oacute;n del factor exponencial de la tasa promedio de esfuerzo que fue capaz de inducir el mayor coeficiente de determinaci&oacute;n. La <a href="#f4">Figura 4</a> muestra los valores observados y los valores predichos generados por la regresi&oacute;n.</font></p>     <p align="center"><font face="verdana" size="2"><a name="f4"></a></font></p>     <p align="center"><font face="verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2f4.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">La <a href="#c1">Tabla 1</a> muestra los estimadores de los par&aacute;metros obtenidos del ajuste de la ecuaci&oacute;n (3.11) a los datos de captura y esfuerzo pesquero ejercido en la pesquer&iacute;a mexicana de anchoveta norte&ntilde;a. El coeficiente de determinaci&oacute;n obtenido en el ajuste, expresado como el porcentaje de la variabilidad explicada por el modelo, fue de un 79%. Se reportan adem&aacute;s los errores est&aacute;ndar de los par&aacute;metros obtenidos a partir de la aplicaci&oacute;n de la t&eacute;cnica Jacknife de remuestreo de los datos (Shao y Tu, 1995).</font></p>     <p align="center"><font face="verdana" size="2"><a name="c1"></a></font></p>     <p align="center"><font face="verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2c1.jpg"></font></p>     ]]></body>
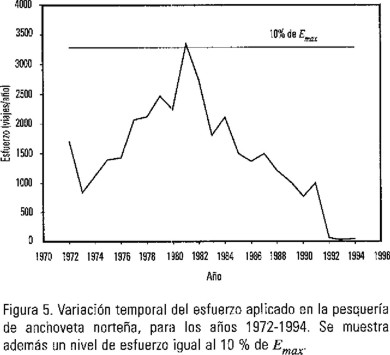
<body><![CDATA[<p align="justify"><font face="verdana" size="2">Tomando en cuenta un valor para el umbral de colapso <i>a</i> igual al diez por ciento de la capacidad de carga (Getz y Haight, 1989), la cota superior para el esfuerzo pesquero seg&uacute;n la desigualdad (2.6) es de 32,894 viajes/a&ntilde;o. En la <a href="#f5">Figura 5</a> podemos observar que el esfuerzo ejercido fue significativamente menor que la cota superior <i>E<sub>max</sub></i> determinada por la desigualdad (2.6).</font></p>     <p align="center"><font face="verdana" size="2"><a name="f5"></a></font></p>     <p align="center"><font face="verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2f5.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">En la <a href="#f6">Figura 6</a>, aparece el comportamiento de la biomasa predicha por el modelo de Gompertz&#45;Fox considerando un valor constante del esfuerzo dado por la ecuaci&oacute;n (2.7). Esta biomasa se calcul&oacute; a partir de la soluci&oacute;n de la ecuaci&oacute;n (2.8) usando un valor de <i>x</i><sub>0</sub> = 752,245 tm. estimado a partir de la captura por unidad de esfuerzo para el a&ntilde;o 1972, el valor del par&aacute;metro <i>q</i> estimado por la regresi&oacute;n y un valor para el umbral de colapso <i>a</i> igual al 10% de la capacidad de carga estimada para el sistema. Podemos observar que el nivel de biomasa te&oacute;ricamente esperado permanece siempre por encima del umbral cr&iacute;tico <i>a</i>, dado que se cumple la condici&oacute;n dada por la ecuaci&oacute;n (2.5a) la cual garantiza el cumplimiento de la condici&oacute;n suficiente (2.4) para la restricci&oacute;n de viabilidad <i>x(t)</i> &ge; <i>a</i>. Sin embargo la aplicaci&oacute;n de tal nivel de esfuerzo provocar&iacute;a un serio abatimiento de la biomasa en aproximadamente 12 a&ntilde;os a partir del inicio de la explotaci&oacute;n.</font></p>     <p align="center"><font face="verdana" size="2"><a name="f6"></a></font></p>     <p align="center"><font face="verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2f6.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Como hemos argumentado, y sin p&eacute;rdida de generalidad, consideremos que el precio en el mercado de cada unidad de biomasa capturada y el costo de cada unidad de esfuerzo coinciden con sus valores medios y recordemos que denotamos mediante <i>x<sub>s</sub>(&#948;)</i> el valor de la biomasa &oacute;ptima predicha por la ecuaci&oacute;n (2.2) para cada valor fijo de la tasa de descuento <i>&#948;</i>. Tomando la funci&oacute;n de costo en la forma <i>C(x)</i> = <i>c/qx</i> (cf. ecuaci&oacute;n 6.15I, haciendo <i>&#956;(x<sub>s</sub>(t))</i> = <i>c</i>) siendo <i>c</i> el costo de cada unidad de esfuerzo estandarizado a un nivel internacional y fijado en 2000 d&oacute;lares/viaje y el precio <i>p</i> de cada tonelada m&eacute;trica de anchoveta (como harina de pescado) en 300 d&oacute;lares, calculamos el valor de la biomasa &oacute;ptima <i>x<sub>s</sub>(&#948;)</i> a partir de la ecuaci&oacute;n (2.2) para distintos valores de la tasa de descuento. En la <a href="#f7">Figura 7</a> podemos observar que el valor de <i>x<sub>s</sub>(&#948;)</i> decrece al aumentar <i>&#948;</i>.</font></p>     <p align="center"><font face="verdana" size="2"><a name="f7"></a></font></p>     <p align="center"><font face="verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2f7.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">En los mercados financieros internacionales, una cota superior representativa para la variaci&oacute;n de la tasa de descuento es de <i>&#948;</i> = 0.10. La biomasa &oacute;ptima que se obtiene de la ecuaci&oacute;n (2.2) para este valor de <i>&#948;</i> resulta ser de 1,553,916 tm., lo que representa aproximadamente un 35% del nivel asint&oacute;tico de biomasa. Si consideramos, de acuerdo con Getz y Haight (1989), que una poblaci&oacute;n se ha colapsado si su biomasa desciende a niveles inferiores al diez por ciento de su capacidad de carga <i>K</i>, esperar&iacute;amos que en el caso de la anchoveta norte&ntilde;a a&uacute;n manteniendo la biomasa en la trayectoria singular <i>x<sub>s</sub></i>(0.10) &eacute;sta permanecer&iacute;a fuera de la regi&oacute;n de colapso.</font></p>     ]]></body>
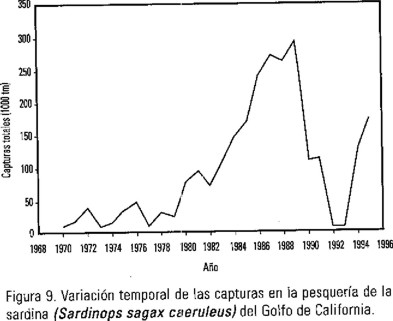
<body><![CDATA[<p align="justify"><font face="verdana" size="2">Lo anterior puede corroborarse utilizando como valor estimado para la biomasa <i>x(t<sub>k</sub>)</i> el valor que se obtiene dividiendo la captura por unidad de esfuerzo <i>U(t<sub>k</sub>)</i> entre el coeficiente de capturabilidad, seg&uacute;n la ecuaci&oacute;n (3.2). El valor del par&aacute;metro <i>q</i> se obtuvo del ajuste de la ecuaci&oacute;n (3.11) y <i>U(t<sub>k</sub>)</i> se aproxim&oacute; mediante la media geom&eacute;trica de valores sucesivos de las tasas promedio de capturas por unidad de esfuerzo centradas en <i>t<sub>k</sub></i>. La <a href="#f8">Figura 8</a> muestra el comportamiento de la biomasa as&iacute; estimada respecto al tiempo, se muestra adem&aacute;s el nivel de la biomasa &oacute;ptima estimada para una tasa de descuento de 0.05.</font></p>     <p align="center"><font face="verdana" size="2"><a name="f8"></a></font></p>     <p align="center"><font face="verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2f8.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">El valor promedio de la tasa de descuento en el per&iacute;odo de este an&aacute;lisis fue de 5%. Tomando como referencia dicho valor, en la <a href="#f8">Figura 8</a> podemos ver que <i>x<sub>s</sub></i>(0.05) toma un valor de 1,715,562 tm. Consecuentemente, la estrategia de control fue sub&#45;&oacute;ptima dado que el esfuerzo aplicado no mantuvo el nivel de biomasa sobre la senda &oacute;ptima <i>x<sub>s</sub></i>(0.05). Sin embargo para el prop&oacute;sito de evitar la ca&iacute;da de la biomasa poblacional por debajo del umbral cr&iacute;tico el esfuerzo aplicado fue muy favorable ya que los valores estimados indican que la biomasa se mantuvo siempre por encima del mencionado nivel de colapso. Esto nos permite suponer que si bien la explotaci&oacute;n de la anchoveta norte&ntilde;a no gener&oacute; el m&aacute;ximo beneficio social posible de acuerdo con la estrategia de control predicha te&oacute;ricamente, tampoco se present&oacute; un problema de sobrepesca. Consecuentemente, el colapso en los niveles de captura pudo haberse debido a un problema de disponibilidad del recurso en el &aacute;rea de pesca generada por la respuesta biol&oacute;gica de la poblaci&oacute;n a factores ambientales.</font></p>     <p align="justify">&nbsp;</p>     <p align="justify"><font face="verdana" size="2"><b>La pesqueria de la sardina (<i>Sardinops sagax caeruleus</i> Girard, 1856) en el Golfo de California</b></font></p>     <p align="justify"><font face="verdana" size="2">La explotaci&oacute;n de la Sardina <i>(Sardinops sagax caeruleus)</i> en el Golfo de California se inici&oacute; a finales de la d&eacute;cada de los sesentas luego del colapso de la pesquer&iacute;a frente a la costa de California y costa occidental de Baja California (Lluch&#45;Belda <i>et al.</i>, 1986). Al igual que en los casos de la anchoveta norte&ntilde;a y la pesquer&iacute;a de la sardina frente a la costa occidental de las Californias, la pesquer&iacute;a de la sardina en el Golfo de California sufri&oacute; tambi&eacute;n un colapso. Sus capturas descendieron de un valor m&aacute;ximo de 292,000 tm hasta aproximadamente 7,000 tm en las temporadas 1991&#45;1992, 1992&#45;93 (Cisneros&#45;Mata <i>et al.</i>, 1995). La <a href="#f9">Figura 9</a> muestra la variaci&oacute;n temporal de las capturas.</font></p>     <p align="center"><font face="verdana" size="2"><a name="f9"></a></font></p>     <p align="center"><font face="verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2f9.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Seg&uacute;n Cisneros&#45;Mata <i>et al.</i> (1990) la modificaci&oacute;n de la estructura de edades de la biomasa explotable, la excesiva captura de individuos en las primeras clases de edad y la intensa actividad pesquera global durante la ca&iacute;da explicar&iacute;an la sobreexplotaci&oacute;n del recurso.</font></p>     ]]></body>
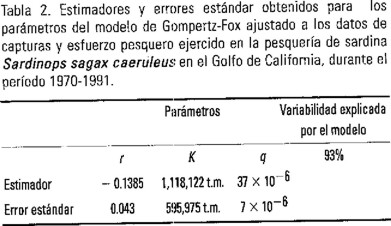
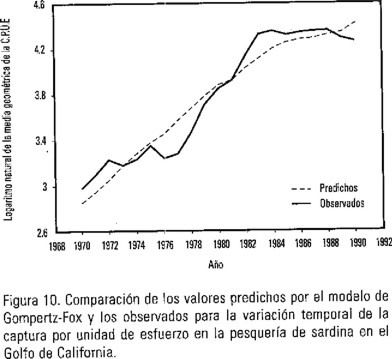
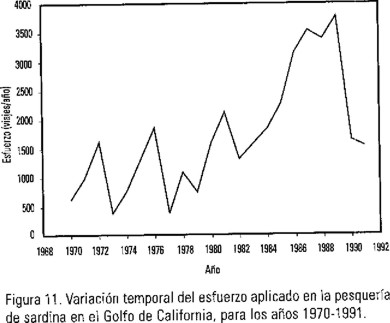
<body><![CDATA[<p align="justify"><font face="verdana" size="2">El ajuste del modelo de Gompertz&#45;Fox (cf. ecuaci&oacute;n 3.11) a los datos de captura por unidad de esfuerzo en esta pesquer&iacute;a se logr&oacute; con un coeficiente de determinaci&oacute;n de un 93%. Los datos se obtuvieron del Centro Regional de Investigaciones Pesqueras de Guaymas, Sonora.</font></p>     <p align="justify"><font face="verdana" size="2">En la <a href="#c2">Tabla 2</a> se reportan los de los estimadores de los par&aacute;metros obtenidos para el modelo, as&iacute; como sus errores est&aacute;ndar, obtenidos a partir de la aplicaci&oacute;n de la t&eacute;cnica Jacknife de remuestreo de los datos (Shao y Tu, 1995).</font></p>     <p align="center"><font face="verdana" size="2"><a name="c2"></a></font></p>     <p align="center"><font face="verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2c2.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">La <a href="#f10">Figura 10</a> muestra la comparaci&oacute;n de los valores observados y los valores predichos generados por al ajuste del modelo.</font></p>     <p align="center"><font face="verdana" size="2"><a name="f10"></a></font></p>     <p align="center"><font face="verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2f10.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Estableciendo nuevamente el umbral de colapso <i>a</i> en un diez por ciento de la capacidad de carga <i>K</i> (Getz y Haight, 1989), el valor de la cota superior para <i>E<sub>max</sub></i> seg&uacute;n la desigualdad (2.6) resulta ser de 8,619 viajes/a&ntilde;o. En la <a href="#f11">Figura 11</a> se muestra la variaci&oacute;n del esfuerzo pesquero aplicado durante el per&iacute;odo 1970&#45;1991; se observa que &eacute;ste se mantuvo siempre por abajo del nivel superior estimado para <i>E<sub>max</sub></i>.</font></p>     <p align="center"><font face="verdana" size="2"><a name="f11"></a></font></p>     <p align="center"><font face="verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2f11.jpg"></font></p>     ]]></body>
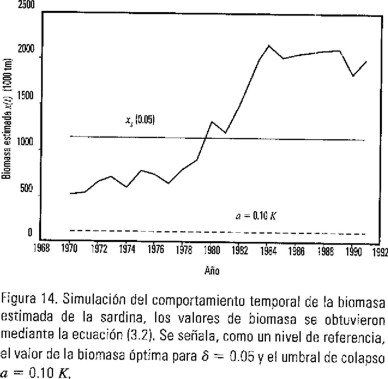
<body><![CDATA[<p align="justify"><font face="verdana" size="2">En la <a href="#f12">Figura 12</a> aparece el comportamiento de la biomasa predicha para la poblaci&oacute;n de sardina por el modelo de Gompertz&#45;Fox, calculada a partir de la soluci&oacute;n de la ecuaci&oacute;n (2.8), cuando se considera un valor constante del esfuerzo igual al <i>E<sub>max</sub></i>. Se muestra la permanencia de &eacute;sta por arriba del umbral de colapso, aunque tendiendo asint&oacute;ticamente hacia este &uacute;ltimo; lo anterior era de esperarse puesto que al cumplirse la condici&oacute;n (2.5a) se garantiza que la biomasa del recurso ser&aacute; mayor o igual al nivel de colapso especificado para el horizonte temporal considerado. Esto podr&iacute;a significar que el esfuerzo pesquero real, desde un punto de vista te&oacute;rico, no afect&oacute; significativamente el nivel de biomasa. Por lo tanto el colapso observado, en las capturas para las temporadas 1991&#45;92, 1992&#45;93 a niveles de aproximadamente 7000 tm, podr&iacute;a haber sido causado por otro tipo de factores y no necesariamente por la acci&oacute;n de la pesquer&iacute;a sobre el recurso; esta hip&oacute;tesis se apoya en la recuperaci&oacute;n sorprendente de la pesquer&iacute;a en los siguientes a&ntilde;os, tal como se observa en la <a href="#f9">Figura 9</a>.</font></p>     <p align="center"><font face="verdana" size="2"><a name="f12"></a></font></p>     <p align="center"><font face="verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2f12.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Para un precio <i>p</i> de cincuenta d&oacute;lares por tonelada y un costo por unidad de esfuerzo <i>c</i> de 2,000 d&oacute;lares por viaje y manteniendo la forma <i>C(x)</i> como <i>c/qx</i>, se calcularon los valores de biomasa correspondientes a distintos valores de <i>&#948;</i> mediante la ecuaci&oacute;n (2.2). La <a href="#f13">Figura 13</a> muestra la variaci&oacute;n decreciente de <i>x<sub>s</sub>(&#948;)</i> con respecto a <i>&#948;</i>, manteniendo fijos los par&aacute;metros restantes.</font></p>     <p align="center"><font face="verdana" size="2"><a name="f13"></a></font></p>     <p align="center"><font face="verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2f13.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Se hizo una simulaci&oacute;n de la variaci&oacute;n temporal de la biomasa de sardina mediante la ecuaci&oacute;n (3.2), utilizando el valor del par&aacute;metro <i>q</i> ajustado mediante la ecuaci&oacute;n (3.11) con <i>U(t<sub>k</sub>)</i> aproximado mediante la media geom&eacute;trica de valores sucesivos alrededor de <i>t<sub>k</sub></i> para la tasa media de captura por unidad de esfuerzo. La <a href="#f14">Figura 14</a> muestra la variaci&oacute;n respecto al tiempo de la biomasa estimada a partir de los datos de captura por unidad de esfuerzo (ecuaci&oacute;n 3.2), tambi&eacute;n se muestra el nivel de colapso estimado <i>a</i> = 0.10 <i>K</i>.</font></p>     <p align="center"><font face="verdana" size="2"><a name="f14"></a></font></p>     <p align="center"><font face="verdana" size="2"><img src="/img/revistas/hbio/v11n2/a2f14.jpg"></font></p>     <p align="justify"><font face="verdana" size="2">Tomando como referencia para el an&aacute;lisis de optimalidad en esta pesquer&iacute;a un valor de la tasa de descuento <i>&#948;</i> = 0.05 en la <a href="#f14">Figura 14</a> podemos observar que la biomasa &oacute;ptima correspondiente <i>x<sub>s</sub>(&#948;)</i> es de 1,096,682 tm. Se puede concluir que para ese valor de &#948; la explotaci&oacute;n si bien no se llev&oacute; a cabo de acuerdo con la estrategia de control &oacute;ptimo obtenida en la secci&oacute;n 6I, s&iacute; permiti&oacute; un crecimiento en la biomasa del recurso que la llev&oacute; a alcanzar y sobrepasar el nivel de biomasa &oacute;ptima <i>x<sub>s</sub></i>(0.05) (<a href="#f14">Figura 14</a>). En lo general el esfuerzo aplicado no fue capaz de mantener la biomasa sobre la senda singular pues la simulaci&oacute;n de la biomasa indica que esta aumenta continuamente, lo cual significa que el esfuerzo aplicada fue inferior al indicado por la ecuaci&oacute;n (6.17I) que corresponde con el caso de control singular. De acuerdo con este ensayo la explotaci&oacute;n fue sub&#45;&oacute;ptima, sin embargo para el umbral de colapso utilizado no podemos concluir que se present&oacute; un problema de sobrepesca ya que el nivel de biomasa estimada se mantuvo siempre por encima del nivel 0.10 <i>K</i>. Consecuentemente la ca&iacute;da en las capturas podr&iacute;a deberse a un problema de disponibilidad del recurso en el &aacute;rea de pesca.</font></p>     ]]></body>
<body><![CDATA[<p align="justify"><font face="Verdana" size="2">&nbsp;</font></p>     <p align="justify"><font face="verdana" size="2"><b>Conclusiones</b></font></p>     <p align="justify"><font face="verdana" size="2">El presente estudio ha sido orientado hacia algunos aspectos metodol&oacute;gicos del vasto universo de la modelaci&oacute;n aplicada al manejo de recursos. No es ocioso se&ntilde;alar que existen procedimientos para la estimaci&oacute;n de la din&aacute;mica poblacional del recurso explotado. Los que hemos utilizado tienen la limitante de considerar &iacute;ndices de abundancia basados en la biomasa agregada. Esto hace que nuestras conclusiones deban de estar sujetas a umbrales de incertidumbre que rebasan a aquellos asociados con los criterios de validaci&oacute;n estad&iacute;stica y que se derivan fundamentalmente del grado de idoneidad de la tasa de captura por unidad de esfuerzo como de abundancia. Sin embargo los m&eacute;todos alternativos adolecen de otros aspectos y dependen de supuestos que en la realidad son dif&iacute;cilmente observables. La pr&aacute;ctica ha demostrado que en muchas ocasiones los modelos de producci&oacute;n producen estimaciones con menor incertidumbre que aquellos que consideran la estructura de edades de la poblaci&oacute;n (Hilborn y Walters, 1992).</font></p>     <p align="justify"><font face="verdana" size="2">Cabe aclarar que los criterios de adopci&oacute;n del umbral de colapso demandan de un mayor sustento en consideraciones de car&aacute;cter biol&oacute;gico. Sin embargo la metodolog&iacute;a que hemos introducido es de car&aacute;cter general, de modo tal que ante la identificaci&oacute;n de un valor diferente para dicho umbral las consecuencias asociadas podr&iacute;an obtenerse f&aacute;cilmente.</font></p>     <p align="justify"><font face="verdana" size="2">En lo referente a los c&aacute;lculos num&eacute;ricos para la estimaci&oacute;n del nivel de biomasa &oacute;ptima hemos supuesto que los valores de los par&aacute;metros identificados con el costo de cada unidad de biomasa y de esfuerzo se mantuvieron constantes. El haber utilizado metodolog&iacute;as como el an&aacute;lisis de sensibilidad, u otras t&eacute;cnicas para la estimaci&oacute;n de los niveles de incertidumbre asociados habr&iacute;amos tenido que extender a&uacute;n m&aacute;s la presentaci&oacute;n. Independientemente de las omisiones, hemos por lo menos mostrado el inicio del sendero que conduce al entendimiento de los importantes procedimientos de control &oacute;ptimo aplicados al manejo de recursos pesqueros (v&eacute;ase Cohen, 1987). Sin duda la extensi&oacute;n de los resultados aqu&iacute; presentados a mayores dimensiones o bien hacia otros confines de validaci&oacute;n estad&iacute;stica no resultar&aacute; imposible para el lector. En ese sentido se puede considerar el contenido de esta contribuci&oacute;n como un puente entre los m&eacute;todos formales y el alcance de objetivos de manejo &oacute;ptimo de un recurso pesquero.</font></p>     <p align="justify"><font face="verdana" size="2">Resulta pertinente se&ntilde;alar que una extensi&oacute;n natural de la metodolog&iacute;a aqu&iacute; presentada ser&iacute;a la consideraci&oacute;n de ecuaciones diferenciales estoc&aacute;sticas y de los m&eacute;todos de control &oacute;ptimo que se asocian (Jetschke, 1992; Ludwig, 1979; Ludwig y Varah, 1979; Fleming y Rishel, 1975). Si bien es cierto que dicho enfoque tampoco nos permitir&iacute;a establecer conclusiones absolutas, s&iacute; estar&iacute;an &eacute;stas sujetas a un marco de incertidumbre m&aacute;s reducido. La realizaci&oacute;n de tal extensi&oacute;n ser&aacute; facilitada grandemente si se tiene familiaridad con las metodolog&iacute;as aqu&iacute; esbozadas.</font></p>     <p align="justify"><font face="Verdana" size="2">&nbsp;</font></p>     <p align="justify"><font face="verdana" size="2"><b>Agradecimientos</b></font></p>     <p align="justify"><font face="verdana" size="2">A Elena Solana quien contribuy&oacute; notablemente en la revisi&oacute;n del contenido del presente trabajo. Los trabajos de investigaci&oacute;n cuyos resultados aqu&iacute; presentamos fueron auspiciados por el proyecto CONACYT 28440&#45;A.</font></p>     <p align="justify"><font face="Verdana" size="2">&nbsp;</font></p>     ]]></body>
<body><![CDATA[<p align="justify"><font face="verdana" size="2"><b>Literatura citada</b></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">ALLEE, W. C., 1931. <i>Animal Aggregations</i>, University of Chicago Press.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103620&pid=S0188-8897200100020000200001&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">BORB&Oacute;N&#45;GONZ&Aacute;LEZ, D. J., 1999. Control &oacute;ptimo de una pesquer&iacute;a sujeta a un r&eacute;gimen de oscilaciones inducidas por colapsos y recuperaciones de los niveles de biomasa: el caso de la anchoveta norte&ntilde;a (<i>Engraulis mordax</i> Girard). Proyecto de Tesis Doctoral. CICESE, Departamento de Ecolog&iacute;a.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103622&pid=S0188-8897200100020000200002&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">BORB&Oacute;N&#45;GONZ&Aacute;LEZ, D. J. y A. COTA&#45;VILLAVICENCIO, 1999. Indicadores b&aacute;sicos de la pesquer&iacute;a de la anchoveta norte&ntilde;a <i>(Engralus mordax)</i> en la costa occidental de Baja California, M&eacute;xico. Informe T&eacute;cnico. <i>Comunicaciones Acad&eacute;micas, Serie Ecol&oacute;gica</i>, CICESE 17 p. CITECT9908.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103624&pid=S0188-8897200100020000200003&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">CISNEROS&#45;MATA, M. A., J. A. DE ANDA&#45;MONTA&Ntilde;EZ, J. J. ESTRADA&#45;GARC&Iacute;A y F. P&Aacute;EZ&#45; BARRERA, 1990. Evaluaci&oacute;n de las pesquer&iacute;as de Sardina Monterrey y Crinuda del Golfo de California. <i>Investigaciones Marinas CICIMAR 5</i>: 19&#45;26.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103626&pid=S0188-8897200100020000200004&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">CISNEROS&#45;MATA, M. A., M. O. NEVAREZ&#45;MART&Iacute;NEZ y M. G. HAMMANN, 1995. The rise and fall of the Pacific sardine, <i>Sadinops sagax caeruleus</i> Girard, in the Gulf of California, M&eacute;xico. <i>California Cooperative Oceanic Fisheries Investigations Reports 36</i>: 136&#45;143.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103628&pid=S0188-8897200100020000200005&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">COHEN, Y., 1987. A Review of Harvest Theory and Applications of Optimal Control Theory in Fisheries Management. <i>Canadian Journal of Fisheries Aquatic Science 44</i>: 75&#45;83.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103630&pid=S0188-8897200100020000200006&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">ECHAVVARR&Iacute;A, H. H., W. J. REED, A. E. SOLANA y V. A. COTA, 1996. An&aacute;lisis de optimalidad en la pesquer&iacute;a de anchoveta norte&ntilde;a <i>(Engraulis mordax). Aportaciones Matem&aacute;ticas. Serie Comunicaciones 18</i>: 67&#45;86.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103632&pid=S0188-8897200100020000200007&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">FLEMING, W. H. y R. W. RISHEL, 1975. <i>Deterministic and Stochastic Optimal Control</i>. Springer&#45;Verlag, New York Inc.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103634&pid=S0188-8897200100020000200008&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">FOX, W., 1970. An Exponential Surplus&#45;Yield Model for Optimizing Exploited Fish Populations, <i>Transactions of the American Fisheries Society 1</i>: 80&#45;88.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103636&pid=S0188-8897200100020000200009&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">GETZ, W. M. y R. G. HAIGHT, 1989. <i>Population Harvesting Demographic Models of Fish, Forest, and Animal Resources</i>. Princeton University Press.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103638&pid=S0188-8897200100020000200010&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">GARC&Iacute;A, F. W., V. A. COTA y A. BARRERA, 1990. Bolet&iacute;n anual de la pesquer&iacute;a de anchoveta, temporada de 1988. <i>Ciencia Pesquera 8</i>: 23&#45;34.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103640&pid=S0188-8897200100020000200011&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">HILBORN, R. y C. J. WALTERS, 1992. <i>Quantitative Fisheries Stock Assessment: Choice, Dynamics and Uncertainty</i>. Chapman and Hall, New York.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103642&pid=S0188-8897200100020000200012&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">JETSCHKE, G., 1992. Stochastic population models and their relevance for the conservation of species. <i>Ecological Modelling 63</i>: 71&#45;89.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103644&pid=S0188-8897200100020000200013&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">KNOWLES, G., 1981. <i>An Introduction to Applied Optimal Control</i>. Academic Press, New York.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103646&pid=S0188-8897200100020000200014&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">LLUCH&#45;BELDA, D., F. MAGALL&Oacute;N&#45;BARAJAS y R. A. SCHWARTZLOSE, 1986. Large fluctuations in the sardine fishery in the Gulf of California: Possible causes. <i>California Cooperative Oceanic Fisheries Investigations Reports 27</i>: 136&#45;140.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103648&pid=S0188-8897200100020000200015&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">LLUCH&#45;BELDA, D., R. J. M. CRAWFORD, T. KAWASAKI, A. D. MACCALL, R. H. PARRISH, R. A. SCHWARTZLOSE y P. E. SMITH, 1989. World&#45;wide fluctuations of sardine and anchovy stocks: The regime problem. <i>South African Journal of Marine Science 8</i>: 195&#45;205.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103650&pid=S0188-8897200100020000200016&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">LUDWING, D., 1979. Optimal harvesting of randomly fluctuating resource. I: Application of perturbation methods. <i>SIAM Journal of Applied Mathematics 37</i>: 166&#45;184.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103652&pid=S0188-8897200100020000200017&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">LUDWING, D. y J. M. VARAH, 1979. Optimal harvesting of randomly fluctuating resource. II: Numerical methods and results. <i>SIAM Journal of Applied Mathematics 37</i>: 185&#45;205.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103654&pid=S0188-8897200100020000200018&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">SHAO, J. y D. TU, 1995. <i>The Jacknife and Bootstrap</i>. Springer&#45;Verlag, New York Inc.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103656&pid=S0188-8897200100020000200019&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>     <!-- ref --><p align="justify"><font face="verdana" size="2">SCHNUTE, J., 1977. Improved estimates from the Schaefer production model: Theoretical considerations. <i>Journal of the Fisheries Research Board of Canada 34</i>: 583&#45;603.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=4103658&pid=S0188-8897200100020000200020&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></font></p>      ]]></body><back>
<ref-list>
<ref id="B1">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[ALLEE]]></surname>
<given-names><![CDATA[W. C.]]></given-names>
</name>
</person-group>
<source><![CDATA[Animal Aggregations]]></source>
<year>1931</year>
<publisher-name><![CDATA[University of Chicago Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B2">
<nlm-citation citation-type="">
<person-group person-group-type="author">
<name>
<surname><![CDATA[BORBÓN-GONZÁLEZ]]></surname>
<given-names><![CDATA[D. J.]]></given-names>
</name>
</person-group>
<source><![CDATA[Control óptimo de una pesquería sujeta a un régimen de oscilaciones inducidas por colapsos y recuperaciones de los niveles de biomasa: el caso de la anchoveta norteña (Engraulis mordax Girard)]]></source>
<year>1999</year>
</nlm-citation>
</ref>
<ref id="B3">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[BORBÓN-GONZÁLEZ]]></surname>
<given-names><![CDATA[D. J.]]></given-names>
</name>
<name>
<surname><![CDATA[COTA-VILLAVICENCIO]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
</person-group>
<source><![CDATA[Indicadores básicos de la pesquería de la anchoveta norteña (Engralus mordax) en la costa occidental de Baja California, México]]></source>
<year>1999</year>
<page-range>17</page-range><publisher-name><![CDATA[Informe TécnicoComunicaciones AcadémicasCICESE]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B4">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[CISNEROS-MATA]]></surname>
<given-names><![CDATA[M. A.]]></given-names>
</name>
<name>
<surname><![CDATA[DE ANDA-MONTAÑEZ]]></surname>
<given-names><![CDATA[J. A.]]></given-names>
</name>
<name>
<surname><![CDATA[ESTRADA-GARCÍA]]></surname>
<given-names><![CDATA[J. J.]]></given-names>
</name>
<name>
<surname><![CDATA[PÁEZ-BARRERA]]></surname>
<given-names><![CDATA[F.]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Evaluación de las pesquerías de Sardina Monterrey y Crinuda del Golfo de California]]></article-title>
<source><![CDATA[Investigaciones Marinas CICIMAR]]></source>
<year>1990</year>
<volume>5</volume>
<page-range>19-26</page-range></nlm-citation>
</ref>
<ref id="B5">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[CISNEROS-MATA]]></surname>
<given-names><![CDATA[M. A.]]></given-names>
</name>
<name>
<surname><![CDATA[NEVAREZ-MARTÍNEZ]]></surname>
<given-names><![CDATA[M. O.]]></given-names>
</name>
<name>
<surname><![CDATA[HAMMANN]]></surname>
<given-names><![CDATA[M. G.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The rise and fall of the Pacific sardine, Sadinops sagax caeruleus Girard, in the Gulf of California, México]]></article-title>
<source><![CDATA[California Cooperative Oceanic Fisheries Investigations Reports]]></source>
<year>1995</year>
<volume>36</volume>
<page-range>136-143</page-range></nlm-citation>
</ref>
<ref id="B6">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[COHEN]]></surname>
<given-names><![CDATA[Y.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A Review of Harvest Theory and Applications of Optimal Control Theory in Fisheries Management]]></article-title>
<source><![CDATA[Canadian Journal of Fisheries Aquatic Science]]></source>
<year>1987</year>
<volume>44</volume>
<page-range>75-83</page-range></nlm-citation>
</ref>
<ref id="B7">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[ECHAVVARRÍA]]></surname>
<given-names><![CDATA[H. H.]]></given-names>
</name>
<name>
<surname><![CDATA[REED]]></surname>
<given-names><![CDATA[W. J.]]></given-names>
</name>
<name>
<surname><![CDATA[SOLANA]]></surname>
<given-names><![CDATA[A. E.]]></given-names>
</name>
<name>
<surname><![CDATA[COTA]]></surname>
<given-names><![CDATA[V. A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Análisis de optimalidad en la pesquería de anchoveta norteña (Engraulis mordax)]]></article-title>
<source><![CDATA[Aportaciones Matemáticas. Serie Comunicaciones]]></source>
<year>1996</year>
<volume>18</volume>
<page-range>67-86</page-range></nlm-citation>
</ref>
<ref id="B8">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[FLEMING]]></surname>
<given-names><![CDATA[W. H.]]></given-names>
</name>
<name>
<surname><![CDATA[RISHEL]]></surname>
<given-names><![CDATA[R. W.]]></given-names>
</name>
</person-group>
<source><![CDATA[Deterministic and Stochastic Optimal Control]]></source>
<year>1975</year>
<publisher-name><![CDATA[Springer-VerlagNew York Inc]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B9">
<nlm-citation citation-type="">
<person-group person-group-type="author">
<name>
<surname><![CDATA[FOX]]></surname>
<given-names><![CDATA[W.]]></given-names>
</name>
</person-group>
<source><![CDATA[An Exponential Surplus-Yield Model for Optimizing Exploited Fish Populations, Transactions of the American Fisheries Society]]></source>
<year>1970</year>
<volume>1</volume>
<page-range>80-88</page-range></nlm-citation>
</ref>
<ref id="B10">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[GETZ]]></surname>
<given-names><![CDATA[W. M.]]></given-names>
</name>
<name>
<surname><![CDATA[HAIGHT]]></surname>
<given-names><![CDATA[R. G.]]></given-names>
</name>
</person-group>
<source><![CDATA[Population Harvesting Demographic Models of Fish, Forest, and Animal Resources]]></source>
<year>1989</year>
<publisher-name><![CDATA[Princeton University Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B11">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[GARCÍA]]></surname>
<given-names><![CDATA[F. W.]]></given-names>
</name>
<name>
<surname><![CDATA[COTA]]></surname>
<given-names><![CDATA[V. A.]]></given-names>
</name>
<name>
<surname><![CDATA[BARRERA]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Boletín anual de la pesquería de anchoveta, temporada de 1988]]></article-title>
<source><![CDATA[Ciencia Pesquera]]></source>
<year>1990</year>
<volume>8</volume>
<page-range>23-34</page-range></nlm-citation>
</ref>
<ref id="B12">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[HILBORN]]></surname>
<given-names><![CDATA[R.]]></given-names>
</name>
<name>
<surname><![CDATA[WALTERS]]></surname>
<given-names><![CDATA[C. J.]]></given-names>
</name>
</person-group>
<source><![CDATA[Quantitative Fisheries Stock Assessment: Choice, Dynamics and Uncertainty]]></source>
<year>1992</year>
<publisher-loc><![CDATA[New York ]]></publisher-loc>
<publisher-name><![CDATA[Chapman and Hall]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B13">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[JETSCHKE]]></surname>
<given-names><![CDATA[G.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Stochastic population models and their relevance for the conservation of species]]></article-title>
<source><![CDATA[Ecological Modelling]]></source>
<year>1992</year>
<volume>63</volume>
<page-range>71-89</page-range></nlm-citation>
</ref>
<ref id="B14">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[KNOWLES]]></surname>
<given-names><![CDATA[G.]]></given-names>
</name>
</person-group>
<source><![CDATA[An Introduction to Applied Optimal Control]]></source>
<year>1981</year>
<publisher-loc><![CDATA[New York ]]></publisher-loc>
<publisher-name><![CDATA[Academic Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B15">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[LLUCH-BELDA]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
<name>
<surname><![CDATA[MAGALLÓN-BARAJAS]]></surname>
<given-names><![CDATA[F.]]></given-names>
</name>
<name>
<surname><![CDATA[SCHWARTZLOSE]]></surname>
<given-names><![CDATA[R. A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Large fluctuations in the sardine fishery in the Gulf of California: Possible causes]]></article-title>
<source><![CDATA[California Cooperative Oceanic Fisheries Investigations Reports]]></source>
<year>1986</year>
<volume>27</volume>
<page-range>136-140</page-range></nlm-citation>
</ref>
<ref id="B16">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[LLUCH-BELDA]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
<name>
<surname><![CDATA[CRAWFORD]]></surname>
<given-names><![CDATA[R. J. M.]]></given-names>
</name>
<name>
<surname><![CDATA[KAWASAKI]]></surname>
<given-names><![CDATA[T.]]></given-names>
</name>
<name>
<surname><![CDATA[MACCALL]]></surname>
<given-names><![CDATA[A. D.]]></given-names>
</name>
<name>
<surname><![CDATA[PARRISH]]></surname>
<given-names><![CDATA[R. H.]]></given-names>
</name>
<name>
<surname><![CDATA[SCHWARTZLOSE]]></surname>
<given-names><![CDATA[R. A.]]></given-names>
</name>
<name>
<surname><![CDATA[SMITH]]></surname>
<given-names><![CDATA[P. E.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[World-wide fluctuations of sardine and anchovy stocks: The regime problem]]></article-title>
<source><![CDATA[South African Journal of Marine Science]]></source>
<year>1989</year>
<volume>8</volume>
<page-range>195-205</page-range></nlm-citation>
</ref>
<ref id="B17">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[LUDWING]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Optimal harvesting of randomly fluctuating resource. I: Application of perturbation methods]]></article-title>
<source><![CDATA[SIAM Journal of Applied Mathematics]]></source>
<year>1979</year>
<volume>37</volume>
<page-range>166-184</page-range></nlm-citation>
</ref>
<ref id="B18">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[LUDWING]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
<name>
<surname><![CDATA[VARAH]]></surname>
<given-names><![CDATA[J. M.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Optimal harvesting of randomly fluctuating resource. II: Numerical methods and results]]></article-title>
<source><![CDATA[SIAM Journal of Applied Mathematics]]></source>
<year>1979</year>
<volume>37</volume>
<page-range>185-205</page-range></nlm-citation>
</ref>
<ref id="B19">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[SHAO]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
<name>
<surname><![CDATA[TU]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
</person-group>
<source><![CDATA[The Jacknife and Bootstrap]]></source>
<year>1995</year>
<publisher-name><![CDATA[Springer-VerlagNew York Inc]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B20">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[SCHNUTE]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Improved estimates from the Schaefer production model: Theoretical considerations]]></article-title>
<source><![CDATA[Journal of the Fisheries Research Board of Canada]]></source>
<year>1977</year>
<volume>34</volume>
<page-range>583-603</page-range></nlm-citation>
</ref>
</ref-list>
</back>
</article>